
酶促反应动力学实验
酶促反应动力学实验 Document serial number【UU89WT-UU98YT-UU8CB-UUUT-UUT108】
实验 酶促反应动力学
————蔗糖酶米氏
常数的测 【目的要求】
1.了解酶促动力学研究的范围。
2.以蔗糖酶为例,掌握测定米氏常数(Km) 【实验原理】
在酶促反应中,当反应体系的温度、pH 和酶浓度恒定时,反应初速度(v)则随底物
浓度[S]的增加而加速,最后达到极限,称为最大反应速度(v)。
Michaelis 和Menten
根据反应速度与底物浓度的这种关系,推导出如下方程:
]
[]
[S k S V v m +=
此式称为米氏方程,式中Km 称为米氏常数,按此方程,可用作图法求出Km 。
方法有: 1.以v[S]作图
由米氏方程可知,v=V /2时,Km =[S]即米氏常数值等于反应速度达到最大反应速度一半时所需底物浓度。
因此,可测定一系列不同底物浓度的反应速度v,以v 对[S]作图。
当v =V /2时,其相应底物浓度即为Km 。
2.以1/v 对1/[S]作图
取米氏方程的倒数式:
V
S V k v m 1][11+•=
以1/v 对1/[S]作图可得一直线,其斜率为Km /V ,截距为1/V 。
若将直线延长与横轴相交,则该交点在数值上等于—l /Km 。
本实验以蔗糖为底物.利用一定量蔗糖酶水解不同浓度蔗糖所形成的产物(葡萄糖和果糖)的量来计算蔗糖酶的Km 值。
葡萄糖和果糖能与3,5—二硝基水杨酸试剂反应,生成桔红色化合物,可于520nm 处比色测定之。
【试验材料】 1.试剂
(1)标准葡萄糖溶液:准确称取100mg 葡萄糖溶于少量饱和的苯甲酸溶液%),再转移到100ml 容量瓶中,用饱和苯甲酸溶液稀释到刻度,混匀,即得浓度为1mg /m1的标准葡萄糖溶液。
冰箱贮藏可长期保存; (2)的L 醋酸缓冲液:取lmol/L 醋酸钠溶液43m1及lmol /L 醋酸溶液57m1,稀释至1000m1即得;
(3)的10%蔗糖溶液:准确取l0g蔗糖溶于少量的/L醋酸缓冲液,转移到100ml容量瓶中,用同样缓冲液稀释到刻度备用;
(4)3,5—二硝基水杨酸试剂:溶液I:%NaOH溶液300m1,1%3,5一二硝基水杨酸溶液880m1及酒石酸钾钠(KNaC4O6·4H20)255g三者一起混合均匀。
溶液Ⅱ:取结晶酚10g及lo%NaOH溶液22m1,加蒸馏水稀释成100ml,混匀。
溶液Ⅲ:取溶于64ml溶液n中。
将溶液皿和溶液I混合,激烈振摇混匀,即得3,5—二硝基水杨酸溶液,放置一周后备用。
(5)酵母蔗糖酶溶液:称取鲜酵母l0g于研钵中,加少量细砂及10一
15ml蒸馏水研磨。
磨细后置冰箱中,过滤,滤液加2—3倍体积冷丙酮,搅拌均匀后离心,沉淀用丙酮洗两次,真空干燥得固体粉末状酶,再溶于100ml蒸馏水,即得酶溶液。
若有不溶物可用离心法除去。
该酶液活力以6—12单位为佳。
蔗糖酶活力单位的定义为:在一定条件下反应5min,每产生lmg葡萄糖所需要的酶量。
备用。
2.器材
(1)100m1三角烧瓶2只;
(2)研钵1只;
(3)50m1及100m1容量瓶各1只;
(4)离心机1台(4000rpm);
(5)糖管8支;
(6)恒温水浴1台;
(7)吸量管:×2支;
(8)秒表1只;
(9)72l型分光光度计1台。
【实验方法】
1.标准曲线的绘制
取干净糖管6支,如下表所示添加试剂。
加毕混匀.于沸水中准确煮5min,取出用自来水冷却3min,稀释至
25ml,混匀后以零号管调零点,于520nm处测定吸光度。
以葡萄糖含量为横坐标,以吸光度为纵坐标作图。
2.根据活力选择酶浓度
将10%蔗糖溶液稀释成的%的溶液,取此溶液5m1于试管中,共加两管。
将两管同时置于25℃水浴中保温5min,然后向管中加入蔗糖酶溶液,立即混匀,
同时用秒表计时,准确反应5min后,立即加入LNaOH溶液终止酶反应。
另
一管先加入溶液,再加入蔗糖酶溶液(此为对照管)。
取干净糖管3支,第l、2管分别加入上述反应液各及水各,第3管加蒸馏水,然后各管均加二硝基水杨酸溶液。
置沸水浴中煮5min,取出后经自来水冷却3min,加水至25m1,混匀,以第3管调零点,于520nm 处测吸光度值。
以测定管的吸光度值减去对照管吸光度值,求得的差值从标准曲线上查得相应的葡萄糖含量,并乘以ll,即为每1ml酶溶液的活力。
测定管中因酶催化水解而产生的葡萄糖含量以在—之间为佳,过高或过低均应适当改变蔗糖酶溶液的浓度或反应液用量后再测。
3.底物浓度对酶促反应速度的影响——米氏常数购测定
取试管7支,按下表所示加入试剂。
当加完蔗糖溶液及醋酸缓冲液后,均放置室温或恒温水浴(20℃或25℃)保
温5min,再分别依次向各管加入蔗糖酶溶液,立即摇匀.记录时间。
准确反应
5min,再准时加入L的NaOH溶液,立即摇匀,以终止反应。
测定管反应完成后,取8支洁净糖管,前7支分别加入相应的上述反应液各及
蒸馏水各,第8支糖管加入蒸馏水作空白,然后各管均加入二硝基水
杨酸溶液,沸水浴5min。
取出用自来水冷却3min,稀释到25m1,混匀,于520nm处比色
测定并记录吸光度值。
对照管的测定与测定管的操作相同。
【结果处理】
根据各测定管的吸光度值(需减去相应对照管的吸光度值),从标准曲线上查出相应的还原糖毫克数(以在0.4一1.6mg范围内为佳,否则应调整反应液用量后重新测定),再乘以11,即得各管的产物量,然后分别计算各反应管相应的[S]、l/[S]、v及1/v,并作出v—[S]及1/v—1/[S]曲线。
再根据所作的两种动力学曲线,分别求出酵母蔗糖酶的Km 值,并加以比较。
上述数据可记录在下表中。
酵母蔗糖酶的提取
实验原理:
蔗糖酶主要存在于酵母中,但工业上通常从酵母中制取。
酵母蔗糖酶系胞内酶,提取时细胞破碎或菌体自溶。
常用的提纯方法有盐析、有机溶剂沉淀、离子交换和凝胶柱层析。
以此可得到较高纯度的酶。
细胞破壁的几种方法
1、高速组织捣碎:将材料配成稀糊状液,放置于筒内约1/3体积,盖紧筒盖,将调速器先拨至最慢处,开动开关后,逐步加速至所需速度。
2、玻璃匀浆器匀浆:先将剪碎的组织置于管中,再套入研杆来回研磨,上下移动,即可将细胞研碎,此法细胞破碎程度比高速组织捣碎机为高,适用于量少和动物脏器组织。
3、反复冻融法:将细胞在-20度以下冰冻,室温融解,反复几次,由于细胞内冰粒形成和剩余细胞液的盐浓度增高引起溶胀,使细胞结构破碎。
4、超声波处理法:用一定功率的超声波处理细胞悬液,使细胞急剧震荡破裂,此法多适用于微生物材料。
5、化学处理法:有些动物细胞,例如肿瘤细胞可采用十二烷基磺酸钠(SDS)、去氧胆酸钠等细胞膜破坏,细菌细胞壁较厚,可采用溶菌酶处理效果更好。
有机溶剂沉淀法即向水溶液中加入一定量的亲水性的有机溶剂可降低溶质的溶解度使其沉淀被析出。
三、试剂:
啤酒酵母、二氧化硅、甲苯(使用前预冷到0℃以下)、去离子水(使用前冷至4℃左右)、1mol / L 醋酸、95%乙醇
四、仪器:
研钵1个、离心管3个、 3. 滴管3个、量筒50ml 1个、水浴锅1个、恒温水浴、烧杯100ml 2个、广泛pH试纸、高速冷冻离心机
四、操作步骤:
1. 提取
(1)准备一个冰浴,将研钵稳妥放入冰浴中。
预先在冰箱中冷却20g干酵
母和10g二氧化硅。
(2)将20g干酵母粉和10g二氧化硅,放入研钵中。
量取预冷的甲苯30ml缓慢加入酵母中,边加边研磨成糊状,约需60分钟。
研磨时用显微镜检查研磨的效果,至酵母细胞大部分研碎。
(3)缓慢加入预冷的40ml去离子水,每次加2ml左右,边加边研磨,至少用30分钟。
以便将蔗糖酶充分转入水相。
(4)将混合物转入两个离心管中,平衡后,用高速冷离心机离心,4℃,10000rpm,10min。
如果中间白色的脂肪层厚,说明研磨效果良好。
用滴管吸出上层有机相。
(5)用滴管小心地取出脂肪层下面的水相,转入另一个清洁的离心管中,4℃,10000rpm,离心10min。
(6)将清液转入量筒,量出体积,留出测定酶活力及蛋白含量。
剩余部分转入清洁离心管中。
(7)用pH试纸检查清液pH,用1mol / L 醋酸将pH调至,称为“粗级分I”。
酶促反应动力学-精品医学课件
(3)酶与底物结合是通过一种称为诱导契 合模式进行的。
酶促反应动力学
概念:
• 研究酶促反应速率及其影响因素。 • 反应速率:单位时间内底物减少或产物
增加的速率,常用初速率来衡量。
初速率
产 酶促反应速率逐渐降低
物
0
时间
酶促反应的时间进展曲线
影响酶促反应速度的因素:
• 底物浓度[S] • 酶浓度[E] •T • pH 值 • 抑制剂 • 激活剂
• 加样量的准确性 • 温度与时间的准确性 • 分光光度计的校准和使用
➢ 开启电源,仪器预热20分钟。
➢ 波长调至测试用波长(510nm)。
➢ 将比色皿架处于空白管位置,打开试样室盖,选 择“T”档,调节“0”按钮,使数字显示为“0.00”。
盖上试样室盖,使光电管受光,调节透过率 “100%”按钮,使数字显示为“100.0”。
可逆性 非竞争性抑制
类型
反竞争性抑制 不可逆性
可逆性抑制作用的动力学比较
作用特点 无抑 竞争 非竞争 反竞争 制剂 性抑制 性抑制 性抑制
与I结合组分
E
E、ES ES
动力学参数
表观Km Km
Km
表观Vm Vm Vm
本次实验方案
底物:磷酸苯二钠 酶: 碱性磷酸酶AKP 抑制剂:磷酸氢二钠
v
v=Vm=K3[E]
V= Vmax [S]
Vm
Km + [S]
2
Km
[S]
底物浓度对酶促反应速度的影响
(二)米---曼氏方程 (Michaelis-Menten equation)
Vmax [S] V=
Km + [S]
1、米-曼氏方程解释: 当[S]Km时,v=(Vmax/Km) [S], 即v 正比于 [S] 当[S]Km时,v Vmax, 即[S]而v不变
酶促反应动力学实验报告

酶促反应动力学实验报告酶促反应动力学实验报告摘要:本实验旨在研究酶促反应的动力学过程。
通过测量不同底物浓度下酶催化反应速率的变化,分析酶的催化特性和底物浓度对反应速率的影响。
实验结果表明,酶促反应速率与底物浓度呈正相关关系,但随着底物浓度增加,反应速率逐渐趋于饱和。
1. 引言1.1 酶的作用1.2 酶促反应动力学2. 实验方法2.1 材料准备2.2 实验步骤3. 实验结果与分析3.1 反应速率与底物浓度关系曲线3.2 酶活性计算公式及计算结果4. 讨论与结论4.1 反应速率与底物浓度关系解释4.2 实验误差及改进方案1 引言1.1 酶的作用酶是一类生物催化剂,能够加速生物体内化学反应的进行。
它们通常是蛋白质或核酸分子,并具有高度特异性。
在细胞内,酶参与调节代谢途径、合成新物质以及降解废物等重要生物过程。
1.2 酶促反应动力学酶促反应动力学研究酶催化反应速率与底物浓度、温度和pH等因素之间的关系。
其中,底物浓度是影响酶催化速率的重要因素之一。
当底物浓度较低时,反应速率随着底物浓度的增加而迅速增加;当底物浓度较高时,反应速率逐渐趋于饱和。
2 实验方法2.1 材料准备- 酶溶液:根据实验要求选择合适的酶溶液。
- 底物溶液:根据实验要求配置不同浓度的底物溶液。
- 缓冲液:用于维持实验环境中恒定的pH值。
- 试管或微孔板:用于进行反应混合和观察。
- 分光光度计:用于测量反应混合液的吸光度变化。
2.2 实验步骤1. 准备一系列不同浓度的底物溶液,并标明其浓度。
2. 在试管或微孔板中分别加入相同体积的酶溶液和不同浓度的底物溶液,混合均匀。
3. 将反应混合物放入分光光度计中,设置适当的波长并记录吸光度值。
4. 在一定时间间隔内,测量吸光度值的变化,并记录下来。
5. 根据实验数据计算反应速率。
3 实验结果与分析3.1 反应速率与底物浓度关系曲线根据实验数据绘制反应速率与底物浓度关系曲线。
实验结果显示,随着底物浓度的增加,反应速率也增加。
酶催化反应动力学的测定实验报告
酶催化反应动力学的测定实验报告引言:酶是一类底物特异性高、效率高的蛋白质催化剂,对生命体的正常代谢过程具有重要的调控作用。
酶催化反应动力学是研究酶催化速率与底物浓度、温度等因素之间关系的实验方法。
本实验旨在通过测定过氧化氢酶催化过氧化氢分解反应速率随底物浓度变化的关系,探究酶催化反应的动力学特性。
实验材料与方法:1. 实验材料:- 过氧化氢酶储备液- 过氧化氢底物液- 磷酸盐缓冲液(pH 7.0)- 酶抑制剂:肼,对苯二酚2. 实验仪器:- 分光光度计- 温度控制设备- 酶解反应体系3. 实验步骤:1) 预先配制过氧化氢酶催化反应所需的底物液。
2) 准备一系列不同浓度的底物液,如0.2%、0.4%、0.6%、0.8%和1.0%。
3) 将每种底物液分别加入试管中,保持温度一致,加入过氧化氢酶储备液。
4) 使用分光光度计,以固定波长对反应过程进行连续测量,并记录反应速率随时间的变化。
5) 通过计算反应速率与底物浓度之间的关系,确定酶催化反应的动力学特性。
结果与讨论:本实验通过测定过氧化氢酶催化过氧化氢分解反应在不同底物浓度下的速率,得到了一组反应速率与底物浓度之间的数据。
根据实验数据,我们绘制出反应速率随底物浓度变化的曲线图。
实验数据表明,反应速率随底物浓度的增加而增加,但随着底物浓度继续增加,反应速率逐渐趋于饱和。
这反映了酶催化反应中的酶与底物结合能力饱和的特点。
为了进一步验证实验结果的可靠性,我们进行了反应速率对时间变化的监测。
结果显示,反应速率随时间的增加而逐渐减小,表明酶活性随着时间的推移会受到某种因素的限制,可能是酶活性的衰减或底物浓度的减少。
通过对实验数据的进一步分析,我们可以得到酶催化反应速率与底物浓度之间的动力学关系。
常见的动力学模型有米氏方程、麦克斯韦-伯尔赛方程等,它们可以描述酶催化反应速率与底物浓度之间的定量关系。
结论:通过本实验,我们成功测定了酶催化反应动力学特性。
实验结果显示反应速率与底物浓度之间存在一定关系,呈现出饱和曲线的特点。
酶促反应动力学实验报告
酶促反应动力学实验报告14301050154 杨恩原实验目的:1.观察底物浓度对酶促反应速度的影响2.观察抑制剂对酶促反应速度的影响3.掌握用双倒数作图法测定碱性磷酸酶的Km值实验原理:一、底物浓度对酶促反应速度的影响在温度、pH及酶浓度恒定的条件下,底物浓度对酶的催化作用有很大的影响。
在一般情况下,当底物浓度很低时,酶促反应的速度(v)随底物浓度[S]的增加而迅速增加,但当底物浓度继续增加时,反应速度的增加率就比较小,当底物浓度增加到某种程度时反应速度达到一个极限值(即最大速度Vmax)。
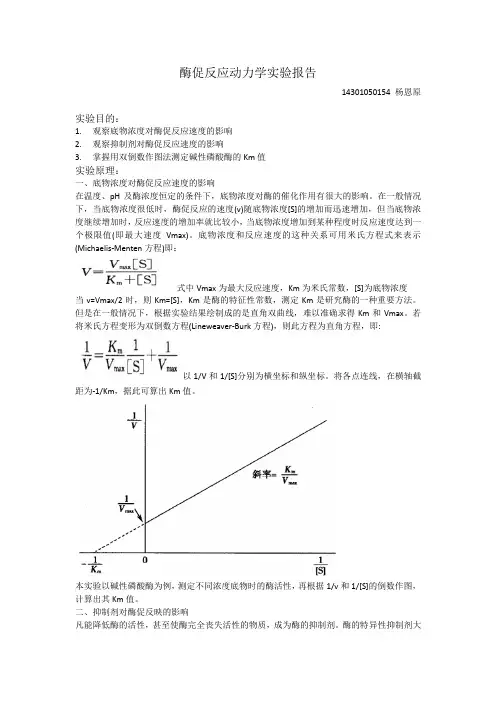
底物浓度和反应速度的这种关系可用米氏方程式来表示(Michaelis-Menten方程)即:式中Vmax为最大反应速度,Km为米氏常数,[S]为底物浓度当v=Vmax/2时,则Km=[S],Km是酶的特征性常数,测定Km是研究酶的一种重要方法。
但是在一般情况下,根据实验结果绘制成的是直角双曲线,难以准确求得Km和Vmax。
若将米氏方程变形为双倒数方程(Lineweaver-Burk方程),则此方程为直角方程,即:以1/V和1/[S]分别为横坐标和纵坐标。
将各点连线,在横轴截距为-1/Km,据此可算出Km值。
本实验以碱性磷酸酶为例,测定不同浓度底物时的酶活性,再根据1/v和1/[S]的倒数作图,计算出其Km值。
二、抑制剂对酶促反映的影响凡能降低酶的活性,甚至使酶完全丧失活性的物质,成为酶的抑制剂。
酶的特异性抑制剂大致上分为可逆性和不可逆性两类。
可逆性抑制又可分为竞争性抑制和非竞争性抑制等。
竞争性抑制剂的作用特点是使该酶的Km值增大,但对酶促反映的最大速度Vmax值无影响。
非竞争性抑制剂的作用特点是不影响[S]与酶的结合,故其Km值不变,然而却能降低其最大速度Vmax。
本实验选取Na2HPO4作为碱性磷酸酶的抑制物,确定其抑制作用属于哪种类型。
实验步骤:实验一:底物浓度对酶促反应速度的影响1.取试管9支,将0.01mol/L基质液稀释成下列不同浓度:管号试剂2.另取9支试管编号,做酶促反应:管号试剂3.混匀,37 ℃水浴保温5分钟左右。
酶促反应动力学实验
“蛋白酶凝乳特性研究”1.实验目的通过研究胃蛋白酶、木瓜蛋白酶作用于脱脂乳的最适凝乳温度、最适pH值、以及金属离子对酶凝乳效果的影响,使学生掌握酶学研究的基本方法,从而掌握生物化工研究的一些基本理论和主要思路,为科研开发打下必要的基础。
2.实验原理胃蛋白酶、木瓜蛋白酶等具有很强的蛋白质催化特性,又具有良好的凝乳特性。
因脱脂乳含大量酪蛋白,木瓜蛋白酶的凝乳特性主要表现为随机切割精氨酶-苯丙氨酸的肽键,达到破坏蛋白质稳定的效果,进而发生凝乳。
奶酪的生产以前主要利用牛凝乳酶达到凝乳效果,但牛凝乳酶主要是从小牛的第四胃中提取得来,其来源受到极大的限制,通过研究蛋白酶、木瓜蛋白酶的凝乳特性并对其进行优化,一定程度地缓解凝乳酶来源的紧缺状态。
3.实验材料、仪器和试剂3.1实验材料优质脱脂乳3.2实验药品和器皿3.3试剂(1)配制浓度为100g/L的脱脂乳1000ml,混匀后待用。
(5组)(2)配制浓度为10g/L的木瓜蛋白酶液和浓度为2g/L胃蛋白酶溶液各500ml,混匀后待用。
(5组)(3)配制0.1mol/L NaOH和0.1mol/L的HCl溶液各1000ml,用于调节溶液pH 值。
(5组)4.操作步骤4.1木瓜蛋白酶(胃蛋白酶)凝乳活力的测定取 5mL100g.L-1的脱脂乳,在65℃下保温5min,加入0.5mL10g.L-1的木瓜蛋白酶液(或胃蛋白酶液),迅速混合均匀,准确记录从加入酶液到乳液凝固的时间(s)。
把40min凝固1mL100g.L-1的脱脂乳的酶量定义为一个索氏单位(Soxhletunit),并以相对活性(RU)表示各因素的影响效果。
SU=(2400/T)×(5 / 0.5)。
式中:T为凝乳时间(s)RU(%)=(各因素下SU / 最大SU)×1004.2酶的最适凝乳温度的测定:分别在55,60,65,70, 75℃下测定酶凝乳活性。
4.3酶的热稳定性:酶液分别在55 ,60,65,70,75℃下处理10,30,60min后,测定酶的凝乳活性。
酶促反应动力学实验

酶促反应动⼒学实验酶动⼒学综合实验实验(⼀)——碱性磷酸酶值的测定【⽬的要求】1.了解底物浓度对酶促反应速度的影响2.了解⽶⽒⽅程、值的物理意义及双倒数作图求值的⽅法。
【实验原理】1、碱性磷酸酶:碱性磷酸酶是⼴泛分布于⼈体各脏器器官中,其中以肝脏为最多。
其次为肾脏、⾻骼、肠和胎盘等组织。
但它不是单⼀的酶,⽽是⼀组同功酶。
本实验⽤的碱性磷酸酶是从⼤肠杆菌中提取的。
2、⽶⽒⽅程:在研究底物浓度与酶促反应速度的定量关系时,导出了酶促反应动⼒学的基本公式,即:(1)式中:v表⽰酶促反应速度,表⽰酶促反应最⼤速度,[S]表⽰底物浓度,表⽰⽶⽒常数。
3、值的测定主要采⽤图解法,有以下四种:①双曲线作图法(图1-1,a)根据公式(1),以v对[s]作图,此时1/2时的底物浓度[s]值即为值,以克分⼦浓度(M)表⽰。
这种⽅法实际上很少采⽤,因为在实验条件下的底物浓度很难使酶达到饱和。
实测⼀个近似值,因⽽1/2不精确。
此外由于v对[S]的关系呈双曲线,实验数据要求较多,且不易绘制。
②作图法双倒数作图法(图1-1,b)实际⼯作中,常将⽶⽒⽅程(式(1))作数学变换,使之成为直线形式,测定要⽅便、精确得多。
其中之⼀即取(1)式的倒数,变换为⽅程式:(2)以对作图,即为形式。
此时斜率为,纵截距为。
把直线外推与横轴相交,其截距相交,其截距即为—。
③作图法(略)把(2)式等号两边乘以,得:(3)以v对作图,这时斜率为,纵截距为,横截距为。
④作图法(略)把(2)式等号两边乘以[S],得:(4)以对[s]作图,这时斜率为,纵截距为。
(a)(b)本实验主要以双倒数法,即作图法来测定碱性磷酸酶值。
具体原理如下:本实验以碱性磷酸酶为例,⽤磷酸苯⼆钠为其作⽤物,碱性磷酸酶能分解磷酸苯⼆钠产⽣酚和磷酸,在适宜条件下(10.0,和60℃),准确反应13分钟。
在碱性条件下酚可与酚试剂⽣成蓝⾊化合物,以波长620⽐⾊。
在⼀定条件下⾊泽深浅与光密度成正⽐。
酶促反应动力学(有方程推导过程)
2.专一性不可逆抑制
此属抑制剂专一地作用于酶的活性中心或其必需 基团,进行共价结合,从而抑制酶的活性。有机 磷杀虫剂能专一作用于胆碱酯酶活性中心的丝氨酸 残基,使其磷酰化而不可逆抑制酶的活性。当胆碱 酯酶被有机磷杀虫剂抑制后,乙酰胆碱不能及时分 解成乙酸和胆碱,引起乙酰胆碱的积累,使一些以 乙酰胆碱为传导介质的神经系统处于过度兴奋状态, 引起神经中毒症状。解磷定等药物可与有机磷杀虫 剂结合,使酶和有机磷杀虫剂分离而复活。
1. 温度影响反应体系中的活化分子数:温度增加,活 化分子数增加,反应速度增加。
2. 温度影响酶的活性:过高的温度使酶变性失活,反 应速度下降。
最适温度不是酶的特征常数,因为一种酶的最适温 度不是一成不变的,它要受到酶的纯度、底物、激活剂、 抑制剂、酶反应时间等因素的影响。因此,酶的最适温 度与其它反应条件有关。
〔I〕 + Ki
)+〔S〕
竞争性抑制剂双倒数曲线,如下图所示:
1
vi
=Km( Vmax
1
+
〔KI〕i )〔S1〕+
1 Vmax
有竞争性抑制剂存在的 曲线与无抑制剂的曲线相 交于纵坐标I/Vmax处,但 横坐标的截距,因竞争性 抑制存在变小,说明该抑 制作用,并不影响酶促反 应的最大速度Vmax,而使 Km值变大。
在底物浓度很低时,反应速度随底物浓度的增 加而急骤加快,两者呈正比关系,表现为一级反 应。随着底物浓度的升高,反应速度不再呈正比 例加快,反应速度增加的幅度不断下降。如果继 续加大底物浓度,反应速度不再增加,表现为零 级反应。此时,无论底物浓度增加多大,反应速 度也不再增加,说明酶已被底物所饱和。所有的 酶都有饱和现象,只是达到饱和时所需底物浓度 各不相同而已。
酶促反应动力学实验
A、B 、 管加好 后,置 于水浴 锅中预 温5min
预温后 将A、 、 B管混合 管混合 并开始 计时, 计时, 准 确反应 13min
显色 向每个试 管 中各加入 2ml
0.03175g /L碘液, 碘液, 碘液 观 察现象
(一) 操 实验器材 作 方 法
冰箱 试管架 管
恒温水浴锅 移液枪及枪头 胶头滴管 吸量管架
试管 吸量 烧杯
(一) 操 实验试剂 作 方 法
PH6.8的缓冲液 PH6.8的缓冲液 0.03175g/L碘液 03175g/L碘液
Na0.5%淀粉的0.5%氯化钠溶液 0.5%淀粉的0.5%氯化钠溶液 淀粉的0.5%
实验步骤
一、制管
管号 PH6.8的 缓冲液 (ml) A 含NaCl的 0.5%淀粉 液(ml) 稀释100 倍的唾液 (ml) 1(0℃) 2(室温) 3(37℃) 4(50℃) 5(70℃) 6(室温) 2 2 2 2 2 2 用2ml的 蒸馏水代 替
2
2
2
2
2
B
1
1
1
1
1
1
实验步骤
预温 混合反应并计时
酶促反应动力学实验
1 底物浓度对酶活性的影响 ——碱性磷酸酶Km值的测定 碱性磷酸酶Km ——碱性磷酸酶Km值的测定
酶促反应动力学实验
2.1 温度对酶活性的影响
实验原理
每种酶都有其最适温度, 每种酶都有其最适温度, 高于或低于此温度酶的活性都 降低。一般而言, 降低。一般而言,若酶处于过 高的温度环境中, 高的温度环境中,会使酶活性 永久丧失; 永久丧失;而若处于极低温度 的环境中只会使酶活性受到抑 一旦温度适宜, 制,一旦温度适宜,酶又会全 部或部分的恢复其活性。 部或部分的恢复其活性。
酶促反应动力学 酶促反应动力学
实验四实验四 酶促反应动力学酶促反应动力学————pH pH pH、、温度温度、、激活剂激活剂、、抑制剂对酶促反应速度的影响抑制剂对酶促反应速度的影响目的目的::1.了解pH、温度、激活剂和抑制剂对酶活力的影响。
2.学习测定酶最适pH 的方法。
(一) pH 对酶活力的影响对酶活力的影响1.1.实验原理实验原理实验原理对环境酸碱度敏感是酶的特点之一。
对每一种酶来说,只能在一定pH 范围内才表现其活力,否则酶即失活。
另外,在这个有限pH 范围内,酶的活力也随着环境pH 的改变有所不同。
酶通常在某一pH 时,才表现最大活力。
酶表现最大活力时的pH 称为酶的最适pH。
一般酶的最适pH 在4~8之间。
淀粉遇碘呈蓝色。
糊精按其分子大小,遇碘可呈蓝色、紫色、暗褐色或红色。
最简单的糊精和麦芽糖遇碘不呈色。
在不同条件下,淀粉被唾液淀粉酶水解的程度可由水解混合物是遇碘呈现的颜色来判断。
本实验观察pH 对唾液淀粉酶活力的影响,唾液淀粉酶的最适pH 约为6.8。
2实验器材实验器材恒温水浴锅、试管、试管架、锥形瓶(50ml 或100ml)、吸量管(1、2、5、10ml)、秒表、白瓷板、pH 试纸、稀释50倍的新鲜唾液(在漏斗内塞入少量脱脂棉,下接洁净试管,嗽口后含一小口蒸馏水,半分钟后收集过滤唾液。
取滤液2ml 放入锥形瓶内,加蒸馏水稀释至100ml,充分混匀)。
3实验试剂实验试剂(1)新配制的溶于0.3%NaCl 的0.5%淀粉溶液称取可溶性淀粉0.5g,先用少量0.3%NaCl 溶液加热调成糊状,再用热的0.3%NaCl 溶液稀释至100ml。
(2)0.2mol/L Na 2HPO 4溶液称取Na 2HPO 4·7H 2O 53.65g(或Na 2HPO 4·12H 2O 71.7g),溶于少量蒸馏水中,移入1000ml 容量瓶,加蒸馏水稀释到刻度。
(3)0.1mol/L 柠檬酸溶液称取含一个水分子的柠檬酸21.01g,溶于少量蒸馏水中,移入1000ml 容量瓶,加蒸馏水至刻度。
10 酶促反应动力学-王镜岩生物化学(全)
½ Vmax
Vmax
[S]
Km
(2) 双倒数作图法 •将米氏方程式两侧取双倒数,以1/v-1/[s]作图,得出一直线.
1 V = Km Km+[S] Vmax[S] 1 V
竞 争 性 非 竞 争 性 抑 制 作 用 机 理 示 意 图
底物与酶专一性结合
竞争性抑制作用
非竞争性抑制作用
2、可逆抑制作用的动力学(重点)
(1)竞争性抑制的动力学特征
Vmax不变,Km增大Fra bibliotek竞争性抑制(competitive inhibition)
抑制剂化学结构与底物相似,因而与底物竞争 性地与酶活性中心结合
2. 激活剂对酶作用的特点
• (1)激活剂对酶的作用具有一定的选择 性 ;即一种激活剂对某种酶起激活作用, 而对另一种酶可能起抑制作用 • (2)有时金属离子之间也可相互替代 • (3)激活离子对于同一种酶,可因浓度 不同而起不同的作用,低浓度激活,高 浓度抑制
六、抑制剂对酶促反应速度 的影响(重点)
酶的活力单位
国际单位(IU):在标准条件下,
一分钟内催化1umol底物转化的酶 量为一个酶活力单位 Kat单位:在一定条件下,每 秒钟转化1mol底物所需的酶量
酶的比活力 酶的转换数
(Kcat)
每毫克蛋白所含酶的活力单位数
(常常作为酶制剂纯度的指标)
每秒钟、每个酶分子转换底物的 umol数
影响酶反应速度的因素
竞争性抑制
可逆抑制作用
非竞争性抑制
反竞争性抑制