
第六章 胚乳
3
胚乳发育中珠心的自溶和被吸收,传递细胞的作用
• 在种子发育的一定阶段,禾本科植物的糊粉层的 特定部位的细胞,普遍具传递细胞的特点。 • 这种具壁内突的糊粉细胞位于母体维管束之上有 利于营养物质向种子的运输。
3
胚乳发育中珠心的自溶和被吸收,传递细胞的作用
• 豆科的一些植物例如豌豆、蚕豆、菜豆,在胚乳 游离核时期,包围胚乳的壁也具内突。(图8-23) • 这些例子表明胚乳表层具有从母体组织吸收营养 并转运给胚的作用。
第六章 植物胚和胚乳的发育
被子植物的双受精完成后,胚珠发育成
种子,子房发育成果实。花的其它部分脱 落或参与形成果实的一部分。 果实结构由果皮和种子组成,种子由种 皮、胚和胚乳组成,果皮和种皮结构简 单,因此主要了解胚和胚乳的发育。
胚乳
• 被子植物的胚和胚乳是双受精的产物。胚乳是一 种特殊的营养组织,其会随着胚的发育而被吸收 不存在。 • 裸子植物的种子中也具有胚乳,但其从来源上讲 是雌配子体的延续,是单倍体。被子植物的胚乳 是由一个精子和两个极核融合产生的,一般是三 倍体,也有一些特殊情况,如百合属和贝母属是 五倍的,另外有少数的科的植物在胚囊发育的过 程中几乎不形成胚乳。 • 胚乳的发育是从初生胚乳核分裂开始,而胚乳的 发育常常早于胚的发育。
一、胚乳发育的类型
• 根据初生胚乳核分裂后是否形成细胞壁,胚乳可 分为三种类型: – 核型 – 细胞型 – 沼生目型
1
核型胚乳
• 这是最普遍的形式,如单子叶植物中玉米、 小麦,双子叶植物中大豆、棉花等。 • 发育的最基本特点是经历一个多核体时期 再过渡到细胞化时期。 • 其发育前期的基本过程描述如下:
二、胚乳的吸器结构
• 豆科和葫芦科植物,存在胚乳吸器是十分普遍的。 在已研究的豆科20种植物中,均发现有合点吸器。 • 在胚发育至球形之前,珠孔端的胚乳就向心地形 成细胞,细胞的胚乳只局限在胚囊的上半部或三 分之二的部分,一般称之为胚乳本体,下部则维 持游离核的状态,成为多核的吸器。 • 吸器的大小形状多种多样
3
胚乳发育中珠心的自溶和被吸收,传递细胞的作用 • 受精后在胚乳和胚生长的同时,胚囊扩大,珠心 自溶。一般认为珠心自溶是被胚乳吸收作为自己 的发育。 • 有些植物在受精前中央细胞的珠孔端或合点端的 壁具传递细胞型壁内突的特点,受精以后壁内突 继续存在。此时,壁的内突侵入胚乳,由于质膜 表面积扩大,有利于营养物质从母体组织运输到 胚乳。 • 在种子发育中,吸器从母体组织获取营养无疑起 着重要的作用。 • 在种子发育的一定阶段,禾本科植物的糊粉层的 特定部位的细胞,普遍具传递细胞的特点。
3
沼生目型胚乳
• 在单子叶植物中,沼生目型胚乳最初的发育表现 一致的方式,后期的发育有变异,主要发生在合 点室。 • 在双子叶植物中具典型的沼生目型胚乳发育的, 在檀香科、虎耳草科和毛茛科曾有报道。毛茛科 的独叶草胚乳的发育属沼生目型,其过程为:
–初生胚乳核的第一次分裂形成一与中央细胞纵向偏斜 的壁,分隔成两个纵向排列的细胞。其后两个细胞的 核分裂形成多核体,然后细胞化。
1
胚乳组织的倍性及不正规的有丝分裂
• 在玉米、棉花、小麦中,都曾记载胚乳发育的游 离核时期,存在体积显著增大的多倍性核。这种 核被认为是由于核内有丝分裂或核的合并形成。 • 在游离核时期的胚乳,核通过有丝分裂迅速增殖。 在某些植物中曾报道有不正规的有丝分裂的现象, 如染色体桥、落后染色体、染色体断裂。在棉花 中,观察到胚乳的游离核有个别核进行无丝(直 接)分裂及核合并产生大的多倍体核。
1
核型胚乳
• 核型胚乳中游离核分裂的次数,依不同植 物而异。有的植物游离核达到数百个至数 千个巨大的数目(像苹果属,柑橘属等), 另一些植物只形成少量的游离核(咖啡属 在四核时期,还阳参属在8核或16核时期)。 • 游离核分裂的早期同步核后期不同步
2
细胞型胚乳
• 细胞型胚乳发育的特点是从初生胚乳核的第一次 分裂及其后的分裂都是紧跟着形成细胞板。 • 所以细胞型胚乳自始至终是细胞的形式。这种类 型的胚乳常常发生在狭长的胚囊中。 • 胚乳母细胞的第一次分裂形成的壁是横向的,即 分裂面与胚囊的纵轴垂直,在最初的横分裂结束 后,胞壁可在垂直面及不同的平面发生。有时, 胚乳母细胞的第一次分裂面是纵的方向,壁的形 成从一极到另一极,继续的分裂方向不定。 (图8-7) • 在珠孔端或合点端或在两端特化形成吸器。
3
沼生目型胚乳
• 沼生目型胚乳是核的与细胞的胚乳的中间发育类 型,由于这种类型最早被确定在沼生目中占优势 而得名。 • 通常初生胚乳核是处于胚囊靠合点端及与反足细 胞接近的位置,第一次分裂时形成细胞壁将胚囊 分隔成一大的珠孔室和一小的合点室。 • 在珠孔室进行多次的游离核分裂,至发育较后期 形成细胞;而在合点室保留不分裂或只进行少数 几次分裂,可能一直保持游离核或呈退化状态, 也有的植物可形成细胞。胚乳的合点室部分常作 为吸器的功能。
二、胚乳的吸器结构
• 胚乳在发育中可能从合点、珠孔端或从侧面扩张 形成吸器的结构,它侵入珠心组织,显示有从相 邻的胚珠部分,如珠心、珠被和合点的组织吸收 营养物质运输到胚乳本体的功能。 • 胚乳吸器在核型和细胞型胚乳常见,也存在于沼 生目型胚乳。 • 在切片上胚乳吸器很容易被忽略,应用解剖的技 术有助于获得完整的胚乳吸器。
• 十字花科植物的胚珠倒生,弯曲如马蹄形,胚囊 有区分明显的珠孔、中央和合点三个区域(或称 三个室)。在胚乳的发育的后期,珠孔区和中央 区细胞化,而合点区常保持合胞体的状态,显示 了作为吸器的功能。虽然合点区无壁与其余的胚 乳分隔,但细胞化的进行突然地在合点区停止, 发育的机制尚不了解。(图8-15)
五 胚乳的营养作用
• 被子植物独特的双受精导致产生合子及胚乳,通 过胚乳的作用从母体(孢子体)获得营养及随后 提供这些贮备物质给发育的胚。胚乳的形成对正 常胚的发育是必须的。因此,一般认为作为双受 精产物的胚乳的演化,成为被子植物生殖综合性 状的一个基本组成部分。
胚乳的营养作用
• 在胚胎发育的早期,胚乳还在发育中,它从母体 吸收营养物质可能主要用于自身的生长,对胚的 营养无重要意义。 • 发育后期的胚乳成为营养物质的贮存库,在胚乳 的薄壁细胞中积累淀粉粒、蛋白体和脂体,这些 贮藏物质显然提供后期胚胎发生利用。 • 胚乳还可能有其他对促进胚生长的成分,业已证 明在玉米乳液期的胚乳含某些氨基酸和激素,包 括细胞分裂素和玉米素。小麦、黑麦、大麦和水 稻等谷类植物的胚乳含植物生长素。
4
胚乳类型与进化
• 胚乳发育的三种类型,它们发育的系统顺序是一 个有争论的问题。究竟是从核型趋向细胞型,或 反过来,从细胞型趋向核型还不明确。 • 从核型胚乳与裸子植物雌配子体的发育表现的相 似的特点,同样经历从合胞体过渡到细胞的时期, 以及二者在细胞化前,多核的合胞体组成核胞质 的功能域和形成小窝的过程是十分相似的,这可 作为支持核型胚乳是初生类型的证据。
2
糊粉的和淀粉的胚乳的分化
• 禾本科植物胚乳糊粉层可能有一至数层。 玉米、小麦一层,水稻有一至数层,大麦 有三层。糊粉细胞含丰富的糊粉粒,是一 种蛋白体,主要成分是蛋白质,植酸钙镁, 磷脂和多糖。
2
糊粉的和淀粉的胚乳的分化
• 一般认为糊粉层的作用不在于贮藏食物,主要是 分泌酶使胚乳组织中贮存的物质变为可溶性的, 并能被胚利用的形式。当种子萌发时,在胚乳中 的淀粉和蛋白质等贮藏物,被一定的水解酶(淀 粉酶和蛋白酶)的活动而分解,这些酶是由糊粉 层细胞分泌。赤霉酸对酶的活化或诱导合成起作 用。
三、 嚼烂状胚乳
•
有的种子的外貌很复杂,呈迷宫状,在任何切面 都表现嚼烂状,这是种皮极端不规则活动的结果。 种皮的不均等生长首先影响胚乳,然后侵入子叶, 致使种子表现错综复杂的形态。
四、胚乳的细胞学
• • •
1 2 3
胚乳组织的倍性及不正规的有丝分裂 糊粉的和淀粉的胚乳的分化 胚乳发育中珠心的自溶和被吸收,传递 细胞的作用
二、胚乳的吸器结构
• 细胞胚乳形成特殊形态的吸器,在木兰科、爵床 科、苦苣苔科、茶茱萸科、檀香科、桑寄生科和 玄参科的一些种中曾有描述,下面列举数例。
三、嚼烂状胚乳
• • 有些植物成熟的胚乳呈现不同程度的不规则性,表面凹 凸不平,称为嚼烂状胚乳,这是在胚乳发育后期生长发 生变异。 胚乳变为嚼烂状是由于种皮或胚乳本身的活动。 – 种皮的内表面的不规则性主要是由于下列两种原因引 起:
二、 胚乳的吸器结构
• 葫芦科的许多种类常常是在合点端发展成为管状 的吸器,末端进入合点的区域,胚乳的上部,即 胚乳本体,在发育后期一般形成细胞的胚乳,而 下部保持游离核状态。 • 胚乳的管状吸器部分含浓厚的细胞质,其中的游 离核经常数个聚集成群,有的种类吸器末端显著 膨大。胚乳的吸器发育到后期,多数是维持游离 核的状态,但在西瓜属中,则常常是形成细胞的。
一 、胚的发育
• 以荠菜为例
二、胚乳的吸器结构
• 吸器通常在胚的心形期之后活动逐渐下降,多核 状态的吸器会简单瓦解,而细胞状态的则被挤到 胚乳本体的基部, 此外,当吸器的活动减退时, 胚乳本体基部的周缘细胞常常变为排列疏松和形 成乳头状的突起,它们有浓厚的细胞质和较大的 细胞核,似有代替原来的吸器的作用。
二、胚乳的吸器结构
① 种皮明显地内突或皱褶; (A) ② 种皮的任何一层细胞不均等的径向延长。 (B)
– 引起胚乳的嚼烂状的本身的活动有两种不同情况:
① 当种子早期发育时胚乳已开始迅速生长,消化珠心组织,种 皮的内表面发生的不规则性直接影响到胚乳的表面使成嚼烂 状。 (C) ② 种皮的不规则性首先影响的不是胚乳的表面而是珠心,胚乳 与种子的其他组织的生长步调不一致,直至种子增大到它最 大的体积时维持不活跃的状态,这样,种皮的不规则性并不 直接影响胚乳,而是引起形成嚼烂状珠心。但是,后来胚乳 很快增大体积,在其周缘显示的不均等生长活动正与种皮预 先形成的内突之间相适应。
第六章:胚乳培养

胚乳培养中存在的问题
从染色体数目的分析表明,胚乳愈伤组 织及胚乳植株染色体数目变化很大。如 在苹果“金冠”和“红玉”的胚乳植株 中,其根尖染色体数目分别为32~48和 27~58左右,其中多于35条非整倍体细 胞十分普遍。而直正三倍体的细胞却很 少。在大麦的胚乳培养中根尖染色体数 目可以从1到4倍,另外还有许多具6、8、 11、12、13条染色体的非整倍体细胞。
胚乳培养中存在的问题
此外,还可以从理论上探讨引起倍性混 乱的原因及其控制的可能性,研究胚乳 植株形态发生规律及其遗传性状变化问 题以及胚和胚乳的关系等等。
胚乳培养中应注意的问题
1. 确定适宜的发育时期
胚乳的发育,大致可以分为早期、旺盛生长期 和成熟期三个阶段。处于发育早期的胚乳,如 核型胚乳的游核时期或刚刚形成细胞时期的胚 乳,难于培养产生愈伤组织或形成器官。生长 旺盛期的胚乳,大多是取材的最合适时期,以 前培养成功的植物,大都是取这个时期的胚乳, 如大麦、水稻、苹果、猕猴桃等。少数是取成 熟时期的胚乳也能获得成功,如蓖麻、巴豆、 麻风树、罗氏核实木等。
胚乳培养中应注意的问题
植物种类不同,胚乳生长旺盛阶段的日期也不 会一样,此时的胚乳具有:胚已分化完成,胚 乳已充分生长,几乎达到成熟时大小;外观为 乳白色半透明的固体,且富有弹性等特点。在 开始对任何一种植物进行胚乳培养时,除了要 查阅有关文献外,还应事先按期采集和固定开 花的材料作为系统观察,以确认该植物胚乳的 发生类型和发育时期,为下一步深入工作打好 基础。
胚乳

培养
培养
从1933年L·兰普和C·O·米尔利用植物组织培养方法,培养玉米幼嫩胚乳起,到1979年才有胚乳植株产生, 到20世纪80年代只有少数胚乳植株培养成功,例如水稻、苹果、柚、檀香、大麦、马铃薯和猕猴桃等。胚乳植株 不一定是三倍体植株,而往往是混倍体。由于染色体数目和形态发生变异,胚乳的试管培养可望得到新类型的植 株。胚乳植株的培养成功,说明胚乳细胞与二倍体或单倍体细胞一样具有全能性。
类型的演化关系
类型的演化关系
根据G·L·戴维斯的报告,在288科被子植物中,161科为核型胚乳,72科为细胞型胚乳,只有17科为沼生 目型胚乳。细胞型胚乳多集中于双子叶植物,单子叶植物中只有天南星科和浮萍科为细胞型胚乳。同样,在17科 沼生目型胚乳中,单子叶植物占14科。从胚乳类型之间的系统发育来看,一般认为沼生目型胚乳是中间类型。 K·R·斯波恩应用统计学方法发现,核型胚乳与一系列具有原始特征的植物关系密切,认为是由核型向细胞型过 渡。B·G·L·斯沃米和P·M加纳珀蒂根据导管穿孔类型,以是否为梯状穿孔导管或单穿孔,来计算统计学上的 相关性,发现核型胚乳与具单穿孔的植物有比较肯定的关系。他们认为导管分子起源于具梯状梯纹纹孔的管胞; 而单穿孔板比梯状穿孔板较为特化,因此,主张由细胞型向核型过渡。到底哪一种胚乳类型较原始,还没有肯定 的答案。
第六章植物胚和胚乳的发育
– 3.仅在围绕胚附近的胚乳变为细胞(三裂叶菜豆) – 4.胚囊上部形成细胞,合点区保持游离核状态,并延长
形成小囊或吸器的结构 – 5.胚乳游离核全部形成细胞后,在其表面即紧邻胚囊周
界壁的胚乳细胞分裂形成层叠状的胚乳周缘层,细胞 富含蛋白质,与禾本科植物的糊粉层相似,由于这部 分胚乳是后来细胞分裂而成,又称次生胚乳。
• 在珠孔室进行多次的游离核分裂,至发育较后期 形成细胞;而在合点室保留不分裂或只进行少数 几次分裂,可能一直保持游离核或呈退化状态, 也有的植物可形成细胞。胚乳的合点室部分常作 为吸器的功能。
第六章植物胚和胚乳的发育
第六章植物胚和胚乳的发育
3 沼生目型胚乳
• 在单子叶植物中,沼生目型胚乳最初的发育表现 一致的方式,后期的发育有变异,主要发生在合 点室。
第六章植物胚和胚乳的发育
第六章植物胚和胚乳的发育
1 核型胚乳
• 核型胚乳中游离核分裂的次数,依不同植 物而异。有的植物游离核达到数百个至数 千个巨大的数目(像苹果属,柑橘属等), 另一些植物只形成少量的游离核(咖啡属 在四核时期,还阳参属在8核或16核时期)。
• 游离核分裂的早期同步核后期不同步
• 裸子植物的种子中也具有胚乳,但其从来源上讲 是雌配子体的延续,是单倍体。被子植物的胚乳 是由一个精子和两个极核融合产生的,一般是三 倍体,也有一些特殊情况,如百合属和贝母属是 五倍的,另外有少数的科的植物在胚囊发育的过 程中几乎不形成胚乳。
• 胚乳的发育是从初生胚乳核分裂开始,而胚乳的 发育常常早于胚的发育。
• 胚乳发育的三种类型,它们发育的系统顺序是一 个有争论的问题。究竟是从核型趋向细胞型,或 反过来,从细胞型趋向核型还不明确。
七年级生物上册第6章《绿色开花植物的生活史》知识点mf
七年级生物上册第6章《绿色开花植物的生活史》知识点被子植物按种子内子叶的多少又可以分为单子叶植物(平行脉)和双子叶植物(网状脉)。
注意:一般不用种子是否有胚乳来区分单子叶植物和双子叶植物,有些双子叶植物(如莲、蓖麻)的种子有胚乳。
单子叶植物代表植物有:水稻、小麦、高粱、玉米、竹。
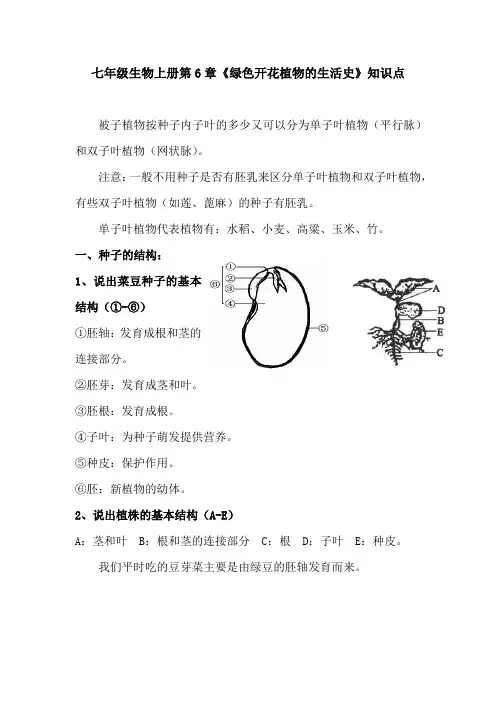
一、种子的结构:1、说出菜豆种子的基本结构(①-⑥)①胚轴:发育成根和茎的连接部分。
②胚芽:发育成茎和叶。
③胚根:发育成根。
④子叶:为种子萌发提供营养。
⑤种皮:保护作用。
⑥胚:新植物的幼体。
2、说出植株的基本结构(A-E)A:茎和叶 B:根和茎的连接部分 C:根 D:子叶 E:种皮。
我们平时吃的豆芽菜主要是由绿豆的胚轴发育而来。
3、菜豆种子包括种皮和胚,其中胚是种子的主要部分,是新植物的幼体,将来发育成新植株。
4、胚包括胚芽、胚轴、胚根和子叶四部分,菜豆种子子叶有两片,营养物质贮藏在子叶里,我们吃的花生油主要来自花生种子的子叶。
5、说出玉米种子的基本结构(7-12)7:胚芽 8:胚轴 9:胚根 10:胚乳 11:子叶 12:果皮和种皮6、图二是玉米种子的纵剖面,该剖面是刀片沿着图一所示的a(a或b或c)线剖开的。
在玉米种子的剖面上滴一滴碘液,变成蓝色的部分是[10]胚乳,说明该结构的主要成分是淀粉。
7、玉米种子(果实)包括果皮和种皮、胚乳和胚三部分,其中子叶一片,营养物质储藏在胚乳里。
我们吃的小麦,营养物质主要来自胚乳。
8、菜豆种子和玉米种子的共同点是都有种皮和胚。
二、种子萌发的条件:1、种子萌发的外界条件:适宜的温度、一定的水分和充足的空气。
光照、土壤不是影响种子萌发的条件,种子萌发时所需的营养来自子叶或胚乳。
把种子种在有光或者无光的环境中,其他条件适宜的情况下,同时萌发。
把种子种在贫瘠或者肥沃的土壤中,其他条件适宜的情况下,同时萌发。
春季早播前松土是为了给种子的萌发提供充足的空气,覆盖地膜是为了给种子萌发提供适宜的温度。
胚乳

多数被子植物胚乳,开始时是三倍体细胞。但由于胚囊发育类型不同,胚囊中极核的数目也不同(见胚囊),所以初生胚乳核的倍性也不相同;月见草型为二倍体;椒草型为九倍体;蓼、葱、五福花以及德鲁撒型为三倍体;皮耐亚和白花丹型为五倍体;贝母型和小白花丹型也是五倍体。即使一般为三倍体的胚乳组织,在发育过程中,也能发生倍性的改变。不少胚乳细胞有很高的倍性。例如Thesium alpinum胚乳吸器的核为384倍体,而Melam- pyrumpratense合点吸器的核倍性达1536倍。倍性的增加与核内有丝分裂和核融合现象有关(见染色体倍性)。胚乳细胞的大小与数目也有很大变化。葱莲属胚乳有特大的细胞核,核仁数目多达23个。
胚乳
也称内胚乳,是被子植物双受精过程中精子与极核融合后形成的滋养组织。这种组织既不是配子体,也不是孢子体,其染色体倍性一般为三倍体;为许多植物如禾本科植物种子的重要组成部分。裸子植物的雌配子体具有贮藏营养的功能,也称它为胚乳;但它是由未受精的大孢子发育形成的单倍体雌配子体组织,兼有分化产生卵细胞的功能,与被子植物的胚乳在起源及染色体倍性上都是不同的。有些植物的珠心组织(孢子体部分)在种子发育过程中,不但没有被吸收消耗,反而增殖并发育成充满丰富营养的组织──外胚乳。甜菜、胡椒和丝兰属等的种子都具有发达的外胚乳。
植物坯胎培养及离体授粉

离体授粉的方法: 试验材料的选择:以子房较大胚珠较多的植物较易成功。
确定开花、花药开裂及授粉时间
壹
贰
去雄后将花蕾套袋隔离
叁
制备无菌子房或胚珠
肆
制备无菌花粉
伍
胚珠或子房的试管内授粉
离体授粉的程序:
01
外植体
03
培养条件
02
培养基
影响离体授粉受精的因素:
为什么幼胚培养比成熟胚培养要求的培养基和培养条件更为严格?
未授粉子房培养形成小的无籽果实。
子房培养:
未授精子房培养为试管受精提供技术基础;
未受精子房培养能获得获得单倍体植株,用于单倍体育种。
获得杂种植株;
子房培养的意义:
培养基:基本培养基(MS、N6、B5等)、植物激素(配合使用)、蔗糖浓度(3-10%)
培养方式:直插优于平放。单倍体胚有多种,可以是卵细胞、助细胞或反足细胞等。
碳水化合物:
胚发育早期要求较高的的渗透压,而随着胚的发育逐渐降低。
成熟胚一般不需要外源激素即可萌发。但激素能促进休眠胚的萌发。
幼胚需要外源激素,应保持外源激素与内源激素的平衡。过低则不能促进生长,过高则易导致幼胚脱分化形成愈伤。
02
01
植物激素的作用:
天然提取物及某些蛋白制品;
银杏幼胚培养中添加银杏胚乳有促进作用(1934);曼佗罗幼胚培养中发现添加椰子乳能很好的促进幼胚的发育(200-500um的幼胚) (1941)。
未授粉胚珠:开花前1-6天,
授粉胚珠:授粉后1-120天不等,较晚时期有利于胚的发育。
灭菌:先对子房或外表组织消毒灭菌后,后取出胚珠培养。
01
03
02
04
胚乳的基本结构
胚乳的基本结构
胚乳是植物种子的一个重要组成部分,其基本结构因植物种类而异。
1. 细胞型胚乳:不存在游离核时期,初生胚乳核及其后继的细胞分裂,有规则地形成细胞壁。
根据第一次分裂形成的细胞方向,可分为纵向分裂和横向分裂两个亚型。
2. 沼生目型胚乳:初生胚乳核移到合点端后分裂,形成一个合点端小室和一个珠孔端大室。
此外,游离核分裂的次数也随植物种类而异。
例如,咖啡属早在4核阶段就形成壁;马利筋属、大花草属和还阳参属,在8核或16核阶段形成胞壁;报春花属、锦葵属、杧果属、胡桃属、苹果属和柑橘属等,沿着胚囊壁可以看到几百个胚乳核。
然后,这些细胞和游离核沿大液泡腔周缘固定下来,并出现胚乳细胞层——椰子肉。
以上内容仅供参考,建议查阅植物学相关书籍或咨询植物学家以获取更全面和准确的信息。
第六章 植物胚与胚乳的发育
由运输载体在质膜上的数 量和分布控制
Chapter 8 Embryogenesis and seed development
8.1 Embryogenesis
Chapter 8 Embryogenesis and seed development
在球形胚的晚期,胚根原细胞发生不 对称分裂,形成一个小的顶细胞和一 个较大的基细胞; 顶细胞继续垂周分裂形成两个小细胞, 组成QC; 基细胞继续分裂形成小柱干细胞 子叶在球形期晚期开始形成
What activities are happened in embryogenesis? 胚胎发生过程中的事件
13kinesin微管1415ef为普通荧光显微latb生长素运输抑制剂褐藻黑角菜海藻胚发育过程中的肌动蛋白分布16顶轴的形成合子不对称分裂后分裂成基轮细胞分裂后16细胞期顶细胞形成原胚基细胞形胚根原细胞参与ram的形成中是qc和小柱细胞的原始细胞细胞期16细胞期17
Chapter 6 Embryogenesis and seed development
Origin 2.2 Origin of cellof polarity cell polarity
Different distribution of mRNAs, proteins and organelles between two poles 在极性细胞两极分布 着mRNAs,蛋白质 和不同的细胞器
GCm
5‘ direct repeats The 5' direct repeats of the FWA gene
Regulator Exon intron
Enhancer
Promoter
DNA methylation
第六章:胚乳培养
对光线反应,不同植物也不同。玉米胚乳适 于暗培养,蓖麻则在1500lx的连续光照下生 长较好。而对黑麦草的胚乳愈伤组织,光照 未显示出任何明显的影响。一般植物多用交 替光照,即10~12h光照,14~12h黑暗条件 下培养。
胚乳培养中应注意的问题
pH值的作用,一般胚乳培养中的pH值约 在4.6~6.3之间,巴婆的胚乳愈伤组织 以pH4.6~5.0时生长最好,蓖麻的pH值 为5.0,麻风树和核实木的为5.6,玉米则 要求7.0。
胚乳培养中应注意的问题
3. 合理使用植物激素 植物激素的种类和浓度对胚乳愈伤组织的诱 导和器官建成起着决定性的作用。在不加任 何激素的培养基上,胚乳外植体很少或完全 不能启动。不同植物的胚乳培养要求有不同 的外源激素及合理的细胞分裂素与生长素的 配比。如大麦胚乳愈伤组织产生和生长,2,4 -D是必要的,柚胚乳植株的产生必须加入高 浓度(15mg/L)赤霉素;
操作实例
A. MS+6-BA0.5mg/L; B. MS+6-BA0.5mg/L+NAA0.1mg/L; C. MS+6BA0.5mg/L+NAA0.1mg/L+GA2mg/L; D. MS+6BA0.5mg/L+NAA0.1mg/L+CH400mg/L; 蔗糖均为2%。
操作实例
操作实例
2. 枸杞的胚乳培养 (1)材料的选择与培养:采集宁夏枸杞健壮植株 变色期的果实,把果实在70%酒精中消毒几秒钟, 然后用0.1%氯化汞溶液消毒6分钟,无菌水冲洗3次。 在培养皿内将果实切开,用镊子夹出种子,在解剖 镜下剥去种皮并去掉胚,取胚乳接种到下面培养基 上: MS+2,4-D2.0mg/L+Kt0.5mg/L; MS+2,4-D0.5mg/L 。 蔗糖浓度为5%,培养温度26度,光照时间10小时。
第六章 胚乳课件
三、 嚼烂状胚乳
2 糊粉的和淀粉的胚乳的分化
• 禾本科植物胚乳糊粉层可能有一至数层。 玉米、小麦一层,水稻有一至数层,大麦 有三层。糊粉细胞含丰富的糊粉粒,是一 种蛋白体,主要成分是蛋白质,植酸钙镁 ,磷脂和多糖。
2 糊粉的和淀粉的胚乳的分化
• 一般认为糊粉层的作用不在于贮藏食物,主要是 分泌酶使胚乳组织中贮存的物质变为可溶性的, 并能被胚利用的形式。当种子萌发时,在胚乳中 的淀粉和蛋白质等贮藏物,被一定的水解酶(淀 粉酶和蛋白酶)的活动而分解,这些酶是由糊粉 层细胞分泌。赤霉酸对酶的活化或诱导合成起作 用。
二、胚乳的吸器结构
• 豆科和葫芦科植物,存在胚乳吸器是十分普遍的 。在已研究的豆科20种植物中,均发现有合点吸 器。
• 在胚发育至球形之前,珠孔端的胚乳就向心地形 成细胞,细胞的胚乳只局限在胚囊的上半部或三 分之二的部分,一般称之为胚乳本体,下部则维 持游离核的状态,成为多核的吸器。
• 吸器的大小形状多种多样
二、 胚乳的吸器结构
• 葫芦科的许多种类常常是在合点端发展成为管状 的吸器,末端进入合点的区域,胚乳的上部,即 胚乳本体,在发育后期一般形成细胞的胚乳,而 下部保持游离核状态。
• 胚乳的管状吸器部分含浓厚的细胞质,其中的游 离核经常数个聚集成群,有的种类吸器末端显著 膨大。胚乳的吸器发育到后期,多数是维持游离 核的状态,但在西瓜属中,则常常是形成细胞的 。