
同源重组的分子机制
第六章 同源重组的分子机制
Holliday模型同样适用于环状DNA间的重组 两个环状DNA分子配对、断裂、重接形成“8”字 型结构中间物,根据切割的位置不同,可分别形成两 个亲本环、大的单体环或者是滚环结构,也可以形成 “χ” 结构。
哈工大-遗传学
第六章 同源重组的分子机制
2
哈工大-遗传学
第六章 同源重组的分子机制
4. 形成交联桥结构;
5. 分支迁移:形成一大段异源 双链DNA(Holliday结构)
4 5 7
6. 绕交联桥旋转1800,形成 Holliday异构体;
7. 切开与重接: 左右切,形成非重组体 上下切,形成重组体。
哈工大-遗传学
第六章 同源重组的分子机制
(1) 5’ A 3’ 3’ 5’ a (2) 5’ A 3’ 3’ 5’ a
b a
(10)
A B
A B
b (5) 5’ A 3’ 3’ 5’ a a (11) A B A
b a b
a (6) 5’ A 3’ 3’ 5’ a (7)
b
a
B
A
B
A
b
a
b
a
B
a
b
支持Holliday遗传重组模型的证据: 1、形态学上,Holliday中间体(Chi 结构)的电镜照片;
哈工大-遗传学
哈工大-遗传学
第六章 同源重组的分子机制
5´ 3´ 3´ 5´
3´ 5´ 5´
内切酶
3´ (recBCD)
3´ 5´ 5´ 3´
5´ 3´ 5´ 3´
3´ 5´ 3´ 5´ 3´ 5´
DNA侵扰 (recA)
5´ 3´ 3´ 5´ 3´ 5´ 5´ 3´
5´ 3´ 3´ 5´
置换延伸 (recA)
哈工大-遗传学 第六章 同源重组的分子机制
三、Meselson – Radding模型
Holliday 模型中为对称的杂合双链,而实际情况有 不均等分离现象,1975年Meselson-Radding 提出模型解 释这种不对称重组现象;
哈工大-遗传学
第六章 同源重组的分子机制
修复校正:若一个杂种分子被校正为野生型(突变型),另一个未被校正
内切酶 (recBCD)
5´ 3´ 3´ 3´
3´ 5´ 5´ 3´
DNA 连接酶
5´ 3´ 3´ 5´
3´ 5´ 5´ 3´
Holiday中间体
5´ 3´ 3´ 5´
分支迁移(Ruv AB) 内切酶 (RuvC)
3´ 5´ 3´ 3´
3´ 5´ 5´ 3´ 5´ 3´
3´ 5´
5´ 3´
3´ 5´
+/+ +/g +/g g/g
+ + + + + g g g
+ + + + g + g g
>>
+ + g + + + g g
+ + + g + + g g
三型子囊
四型子囊
Meselson-Radding 模型
困难
(五) 基因转变与高度负干涉
负干涉:两个邻近基因,或者是同一基因不同突变点间, 双交换的频率比预期高,并发系数C>1,即一个区域
第六章 同源重组的分子机制
游离的3'单链末端
形成Holliday连接体
单链侵入并置换
哈工大-遗传学 第六章 同源重组的分子机制
Ruv AB复合物结合于Holliday连接体
哈工大-遗传学 第六章 同源重组的分子机制
哈工大-遗传学
第六章 同源重组的分子机制
Ruv C 蛋白切开 Holliday连接体
哈工大-遗传学 第六章 同源重组的分子机制
1
2.
断裂重接模型
3. 1.
4. 2.
模板选择复制 模型
3.
4.
图 23-3 断裂重接模型和模板选择复制模型的比较
哈工大-遗传学 第六章 同源重组的分子机制
断裂重接模型和模板选择复制模型存在的问题
断裂重接模型:不能解释基因转变和极化子现象;
模板选择复制模型: (1) 违背了半保留复制; (2) DNA复制在S期,重组在偶线期,不应同时发生; (3)不能解释3线和4线交换;
哈工大-遗传学
第六章 同源重组的分子机制
+ pdxp
×
pdx +
585个子囊中
子囊 孢子对
①
1 2 3 4 + + + pdx pdxp pdx + pdxp + pdx + +
②
③
+ + + + pdx + pdxp + +
④
pdx + + pdx + pdxp + +
?
+
pdxp pdx
哈工大-遗传学
哈工大-遗传学 第六章 同源重组的分子机制
1 6
2 3 旋转1800
4 5 7
哈工大-遗传学
第六章 同源重组的分子机制
A A a a
G
B
A
G
b
A
C T
B
b b
A
a a
A
C T
b
B B
哈工大-遗传学
第六章 同源重组的分子机制
哈工大-遗传学
第六章 同源重组的分子机制
Holliday 模型中,由于重组而产生的异源双链区存在 不配对碱基,可被细胞内的修复系统能够识别并以一条链 为模板进行切除修复: (1). 两个杂种分子均未得到校正,有丝分裂后分离形成4:4 或 3:1:1:3的异常孢子分离比,属于半染色单体转变;
(2). 一个杂种分子得到校正,另一条未校正,有丝分裂后 分离形成 5:3 或 3:5 的分离比,属于半染色单体转变; (3). 两个杂种分子都被校正到同一种类型,有丝分裂后分 离形成 6:2或2:6 的分离比,属于染色单体转变; (4). 两个杂种分子都被校正到不同类型,有丝分裂后分离 形成 4:4 分离比,未出现基因转变;
哈工大-遗传学
第六章 同源重组的分子机制
②存在8个碱基组成的重组热点(Chi位点): chi 位点 5' GCTGGTGG 3' 3' CGACCACC 5' ③需要几种重要的蛋白质:
RecBCD复合体:具有核酸酶,解旋酶和ATPase活性,在
Chi位点产生单链 3'游离未端; RecA:促进DNA单链的同化,即促进单链与同源双链分子 发生链的交换; RuvAB复合体:促进分支迁移; RuvC:核酸内切酶,切开重组中间体(Holliday连接体);
m1 + m1 + + m2 + m2
未转变
m1 + + + + m2 + m2
单转变
m1 + m1 + m1 + + m2
共转变
m1 + + m2 + m2 + m2
共转变
哈工大-遗传学
第六章 同源重组的分子机制
极化子:距离单链断裂点的位置越近越容易发生基因
转变,越远越不易发生转变,由此基因转变频率由高
B 3’ 5’ 5’ b 3’ 联会 B 3’ 5’ 5’ 3’
(8)
A B 两臂旋转 b a
b 酶切 B
(9)
ቤተ መጻሕፍቲ ባይዱ
A B
(3) 5’ A 3’ 3’ 5’ a (4) 5’ A 3’ 3’ 5’ a
3’ 5’ 5’ b 3’ 游离端移动联会 B 3’ 5’ 5’ b 3’ 游离端交叉连接 3’ 5’ 5’ b 3 形成单链交叉 3’ 5’ 5 b 3’ 分支点移动 B A B B
图 23-15 RecBCD 核酸酶从一侧接近 chi 顺序,当它前进
RecA蛋白介导的DNA链交换模型
1). RecA蛋白与单链DNA结
合,形成螺旋状纤丝; 2). 螺旋状纤丝与同源双链 DNA结合; 3). 螺旋状纤丝中的单链(入 侵单链)与双链中的互补链配 对,同源链被置换出来;
哈工大-遗传学
哈工大-遗传学 第六章 同源重组的分子机制
(二)、细菌同源重组的机制---接合和转导(双链和双链)
RecBCD 结合在双链断裂处 chi 5’ BCD 3’
RecBCD 解链并作为外切酶降解 DNA chi RecBCD 停留在 chi 处,内切酶切开单链
RecD 在 chi 顺序解离
RecBC 继续作为解链酶
哈工大-遗传学
第六章 同源重组的分子机制
(四)、细菌修复系统对异源双链区的校正: ①切除外源DNA——无重组
②切除受体DNA——发生重组
③无修复作用 ——子代细胞出现两种基因型(受体基因型 和重组体基因型) 通常采用有利于重组体基因型生长的选择条件
哈工大-遗传学
第六章 同源重组的分子机制
• 高效率标记(high-efficiency maker):在转化中,有些遗传 标记或是很少发生校正作用,或是校正切除几乎总是在受 体DNA上,因此转化频率较高,这类遗传标记称为~。 • 低效率标记(low-efficiency maker):转化中一些标记的校 正切除总是倾向于发生在供体单链上,因而出现很低的转 化频率,这类标记称为~。
的交换引起邻近区域交换的增加;
局部负干涉:有些噬菌体、细菌或真菌的某些局部位点
明显的出现负干涉的现象;
什么是同源重组的分子机制
什么是同源重组的分子机制关键信息项1、同源重组的定义2、参与同源重组的关键分子3、同源重组的启动条件4、同源重组过程中的关键步骤及相关机制5、同源重组的调控机制6、同源重组在生物体内的作用及意义1、同源重组的定义同源重组是指发生在两条同源DNA 序列之间的遗传物质交换过程。
这一过程对于维持基因组的稳定性、遗传多样性以及修复 DNA 损伤等方面具有重要意义。
11 同源重组的特点同源重组具有高度的准确性和特异性,它依赖于两条 DNA 链之间的同源性来实现遗传物质的交换。
12 同源重组与其他重组方式的区别与其他类型的重组(如位点特异性重组和转座重组)相比,同源重组涉及的区域更长,并且对同源序列的要求更高。
2、参与同源重组的关键分子21 重组酶重组酶是催化同源重组过程的关键酶类,如 RecA 家族的蛋白质。
211 RecA 蛋白的作用RecA 蛋白能够促进单链 DNA 与同源双链 DNA 进行链交换。
212 其他重组酶的功能除了 RecA 蛋白,还有一些其他的重组酶在同源重组中发挥着不同的作用。
22 单链结合蛋白单链结合蛋白能够稳定单链 DNA 结构,防止其重新形成双链。
23 核酸外切酶核酸外切酶在同源重组中参与切除DNA 链的末端,产生单链区域。
3、同源重组的启动条件31 DNA 损伤如 DNA 双链断裂是常见的启动同源重组的因素。
32 细胞周期阶段在特定的细胞周期阶段,如 S 期和 G2 期,同源重组的发生频率较高。
33 环境压力某些环境压力,如辐射、化学物质等,可能导致 DNA 损伤,从而启动同源重组。
4、同源重组过程中的关键步骤及相关机制41 产生 DNA 单链通过核酸内切酶或外切酶的作用,产生 DNA 单链。
411 单链的延伸和侵入单链 DNA 延伸,并侵入到同源双链 DNA 中,形成异源双链结构。
412 链交换和分支迁移在异源双链结构的基础上,发生链交换和分支迁移,促进遗传物质的交换。
42 形成 Holliday 连接体这是同源重组过程中的一个关键中间结构。
同源重组修复的分子机制和应用

同源重组修复的分子机制和应用同源重组修复(Homologous Recombination,简称HR)是细胞见于DNA双链断裂后进行的一种高保真修复方式。
经HR修复的损伤位点通常具有高度同源性,即已经断裂的某一DNA分子和其他未断裂的染色体上存在一段较为相似的DNA序列。
在HR修复过程中,这段相同的DNA序列与断裂位点发生配对,然后进行基因重组,形成一根新的DNA链,进而完成修复过程。
HR是人体内最主要的两种DNA双链断裂修复方式之一,另一种则为非同源端接(Non-homologous End Joining,简称NHEJ)。
HR是一个复杂的分子机制,包括了细胞内许多不同的蛋白质、DNA序列和细胞信号通路参数。
这些蛋白质主要涉及到DSB (Double strand break)识别、同源序列搜寻、DNA配对、DNA链转化、负向调控、结构复选识别、DNA透析等过程。
DSB识别:在HR的启动过程中,特定的DSB识别蛋白会发现DNA双链断裂位点,并进行下一步的操作。
同源序列搜寻:接下来,蛋白会朝向有相似的DNA序列的其他染色体进行搜索。
一旦找到相同的DNA序列,它就会开始尝试与该序列配对,并试图形成一个三联体结构。
DNA配对:这个过程中,配对的蛋白会调控两根不同DNA链的伸缩,使它们可以相互匹配。
这个过程的成功需要调节蛋白的正确组装。
DNA链转化:接下来,两根链之间的电子密度开始转移,产生一个相互连接的DNA链。
负向调控:这个过程需要结果DNA分子的精确剪切,以便它们可以重新形成一个连续的DNA分子。
结构复选识别:在转化完成后,一个高质量的DNA链新生的脱氧核糖核酸基团可以通过一个结构复选蛋白的帮助,得到正确的定序,从而避免它们可能发生的错误。
DNA透析:最终,DNA链的合成是由一个DNA合成酶完成的。
这个酶确保产生的DNA链是高质量、高同源性的。
应用方面,HR是一个非常有用的分子技术,它被广泛用于生命科学、医学等诸多领域。
06.第六章-遗传重组的分子机理
• Mu的DNA是线型的,两端没有粘性末端,而是类 似于IS的序列,并有与转座有关的基因A和基因B , 其整合方式与λ噬菌体不同,不是位点专一性的整 合和切除,而是类似于转座因子,其末端常常带 有一小段宿主DNA,因而可以引起转导。
model): DNA双链的断裂与重接
3)Holliday模型:异源双链
(heteroduplex)的断裂与重接
4)Meselon-Radding 模型:
1.Holliday 模型
a) 同源染色体联会
b) 内切酶切割非姊妹染 色单体DNA
c) 交换重接形成交联桥 结构(cross-bridge
structure)
A: phe- try- tyr- × B: met- his-
苯丙AA 色AA 酪AA
甲硫AA 组AA
↓
原养型菌落
phe+ try+ tyr+ met+ his+
问题:是接合引起的?是转化引起的?
U型管实验
• 但在这里,结果却获 得了原养型菌株,说 明有一种可通过滤膜 的过滤性因子(FA), 细菌不必直接接触即 可进行基因转移
遗传学讲义 第六章 遗传重组的分子基础
中国海洋大学 生命学院 汪小龙 xiaolong@
1、遗传重组的类型
(1) 同源重组(homologous recombination)
又叫普遍性重组(generalized recombination) ,大范围同源序 列对等交换。真核生物减数分裂中同源染色体联会,非姊妹 染色单体之间的交换就是同源重组。需要重组蛋白因子参与, 如E.coli. 的RecA.参与重组,又叫依赖于RecA的重组(RecAdependent recombination);
同源重组的分子机制
同源重组的分子机制一、断裂重接模型(breakage joining model)C.D.Darlington 1936年提出。
在同源染色体联会时,由于染色体的缠绕而产生张力,两个相对染色单体在同一位置断裂,然后彼此和另一染色单体重新连接起来从而形成重组并消除这种张力。
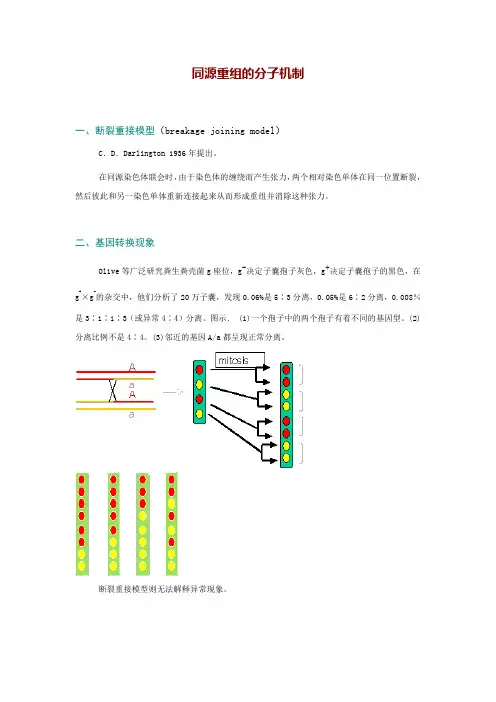
二、基因转换现象Olive等广泛研究粪生粪壳菌g座位,g-决定子囊孢子灰色,g+决定子囊孢子的黑色,在g+×g-的杂交中,他们分析了20万子囊,发现0.06%是5∶3分离,0.05%是6∶2分离,0.008%是3∶1∶1∶3(或异常4∶4)分离。
图示. (1)一个孢子中的两个孢子有着不同的基因型。
(2)分离比例不是4∶4。
(3)邻近的基因A/a都呈现正常分离。
断裂重接模型则无法解释异常现象。
1930年,德国遗传学家H.温克勒把这种不规则分离现象解释为减数分裂过程中同源染色体联会时一个基因使相对位置上基因发生相应的变化所致,因而称就基因转变。
好象是由于一个基因转换为另一等位基因,所以称为基因转换(gene conversion)。
以后由于发现一个基因发生基因转变时,它两旁的基因常同时发生重组:在5∶3和6∶2分离的子囊中,大约有30%也在g座位的这边或那边发生重组;有基因转换的子囊中,基因转换和遗传重组都发生在同样两个单体的子囊比例竟高达90%。
所以认为基因转变是某种形式的染色体交换的结果。
因此,基因转变的研究,实质上也是染色体交换机制的研究。
三、同源重组的Holliday模型1964年,R. Holliday提出了重组的杂合DNA模型(hybrid DNA mode),并作修正。
图示.过程:A.同源的非姊妹染色体的DNA配对。
B-C.同源非姊妹染色单体DNA中两个方向相同的单链在DNA内切酶的作用下,在相同位置上同时切开。
D.切开单链交换重接,形成交联桥结构(cross-bridged structure)。
E.交联桥的位置可以靠拉链式活动,沿着配对DNA分子“传播”—桥迁(Bridge migration),其中互补碱基间形成的氢键从一条链改变另一条链。
dna损伤修复非同源及同源重组分子机制(3篇)
第1篇一、引言DNA作为生物体的遗传物质,在生物体的生长发育、遗传变异和进化过程中起着至关重要的作用。
然而,DNA在复制、转录和修复过程中,由于外界因素或内部错误,会导致DNA损伤。
为了维持生物体的正常功能,细胞必须通过一系列的DNA损伤修复机制来修复受损的DNA。
其中,非同源重组(Non-Homologous End Joining,NHEJ)和同源重组(Homologous Recombination,HR)是两种主要的DNA损伤修复途径。
本文将详细介绍这两种分子机制的原理和作用。
二、非同源重组(NHEJ)1. NHEJ的原理NHEJ是一种在DNA双链断裂(Double-Strand Break,DSB)发生时,直接连接断裂末端的DNA损伤修复途径。
该途径不需要模板DNA,因此具有较快的修复速度,但修复效率较低,容易出现错误连接。
2. NHEJ的分子机制(1)识别和切割断裂末端:在DSB发生时,DNA断裂修复因子(如Mre11、Rad50和Nbs1)形成复合物,识别断裂末端,并通过ATP酶活性切割断裂末端。
(2)末端连接:在Xrcc4和Ligase IV的作用下,将断裂末端的粘性末端连接起来,形成环状中间体。
(3)去除中间体:在DNA聚合酶的作用下,去除中间体,形成完整的DNA分子。
三、同源重组(HR)1. HR的原理HR是一种在DSB发生时,利用未受损的姐妹染色单体或同源染色体作为模板,精确修复断裂末端的DNA损伤修复途径。
HR具有高保真性,但修复速度较慢。
2. HR的分子机制(1)断裂末端的识别和连接:与NHEJ类似,HR也需要识别和切割断裂末端。
在HR过程中,DSS1和RAD51蛋白复合物参与断裂末端的识别和连接。
(2)形成重组中间体:RAD51蛋白复合物与断裂末端结合,形成重组中间体。
(3)分支迁移:在分支迁移酶的作用下,重组中间体在姐妹染色单体或同源染色体上移动,寻找匹配的序列。
(4)交换和连接:在DNA聚合酶和Ligase I的作用下,将断裂末端与匹配的序列连接起来,形成完整的DNA分子。
同源重组

单链的侵入(strand invasion)由RecA蛋白介导。
RecA是一种单链DNA结合蛋白,参与大肠杆菌中所有 的同源重组事件。它催化一个双链DNA分子的3-末端 单链区侵入另一个双链DNA分子,形成异源双链区, 同时置换出同源单链,形成Holliday结构。
RecA介导的链交换可以分为三个阶段:RecA聚集在
SSB所结合的单链DNA上,而Mus81蛋白可能是拆分 Holliday中间体的酶。
二、位点特异性重组
位点特异性重组是发生在DNA上特定序列之间的重组,不依
赖于DNA顺序的同源性,由能识别特异DNA序列的蛋白质介导,
并不需要RecA蛋白和单链DNA。 λ噬菌体DNA侵入大肠杆菌细胞后,面临着裂解生长和溶原
在断裂处,MRX酶复合体利用其5’→3’的外切酶活性
降解DNA,生成3’单链末端,其长度通常可达1 Kb或更 长。MRX酶复合体由Mre11,Rad50和Xrs2三个亚基组成, 并以三个亚基的首字母命名。MRX酶复合体还被认为能 除去与DNA相连的Spo11。
在真核细胞中已经发现了两种与细菌RecA蛋白同源
分支迁移由结合在Holliday分支点上的RuvA和RuvB蛋 白催化。RuvA以四聚体的形式识别并结合到Holliday 分支点上。RuvB蛋白为催化分支迁移的解旋酶,但
RuvB自身不能有效地与DNA结合,它需要与RuvA一起
起作用。RuvC蛋白催化断裂反应,切开极性相同的两 条单链,拆分Holliday 中间体。
物种生存具有重要意义。通过重组实现基因的重新组合使
物种能够更快地适应环境,加快进化的过程。此外,DNA 重组还参与许多重要的生物学过程,比如重组在DNA损伤 修复和突变中发挥重要作用。
同源重组法分子克隆 -回复
同源重组法分子克隆 -回复同源重组法是分子克隆技术中的一种重要方法,其基本原理是利用DNA的同源性重组来插入外源DNA序列到宿主DNA中。
同源重组法在基因克隆、遗传工程等领域得到了广泛应用。
本文将详细介绍同源重组法的原理、步骤及应用。
一、同源重组法的原理同源重组法的原理基于DNA分子的自身结构和功能,DNA分子在某些条件下能够进行重组、修复和重复。
同源重组是指两个DNA分子之间具有相似序列(同源)的区域进行交换而形成的DNA分子重组。
同源重组法基于此原理,通过在宿主DNA中引入重组的同源片段,将外源DNA序列插入到宿主DNA中。
同源重组法的原理可以分为两个步骤:相互间接断裂和互补配对。
两个DNA分子的同源片段同时发生间接断裂,获得可供基因重组的末端。
接下来,由于互补配对的作用,从两个DNA分子中间的同源片段在一定条件下进行配对,形成插入、缺失、互换等不同类型的重组产物。
1. 构建载体DNA:载体DNA是将外源DNA插入到宿主DNA中的重要工具,构建载体DNA 需要选择有适当限制酶切位点的载体和外源DNA。
一般来说,常用的载体包括质粒、噬菌体、噬菌体样颗粒等。
2. 制备DNA片段:外源DNA片段可以通过PCR扩增、酶切和DNA合成等技术制备。
需要注意的是,PCR扩增要确保扩增的DNA片段与宿主DNA具有一定的同源性。
3. 利用限制酶切割载体和外源DNA:根据预定的酶切位点设计限制酶切位点并进行酶切。
4. 进行杂交和拼接:将外源DNA片段与载体DNA杂交,并通过互补配对将DNA片段与载体DNA进行拼接。
5. 转化大肠杆菌:利用化学方法或电击法将构建好的载体DNA转化到大肠杆菌中,转化后得到含外源DNA的菌落。
6. 筛选阳性菌落:利用选择性培养基和荧光素酯分析方法等技术筛选阳性菌落。
7. 测序鉴定:对筛选出的阳性菌落进行测序,并鉴定插入的外源DNA序列是否正确。
同源重组法是分子克隆领域中一种非常实用的技术。
同源重组技术的原理和应用
同源重组技术的原理和应用同源重组技术(Homologous recombination technology,HRT)是一种常用的基因编辑技术,它能够在特定部位改变DNA序列,用于治疗某些遗传性疾病、研究基因表达调控和蛋白质结构等方面。
本文将介绍同源重组技术的原理和应用。
1. 同源重组技术的原理同源重组技术是利用质粒、病毒等载体携带的外源基因通过靶向指向的方式将其导入到细胞或生物体中,从而达到改变生物体基因组的目的。
具体来说,同源重组技术是基于DNA的相互作用原理进行的。
DNA由四种碱基(腺嘌呤、胸腺嘧啶、鸟嘌呤和胞嘧啶)构成,它们之间形成了氢键,使得两条互补的DNA链可以通过这些氢键相互结合。
在同源重组中,DNA分子的另一端则通过DNA酶和锌指核酸酶来实现切割和精准定位。
一旦发现了具备相同序列的区域,这些酶就会将外源基因定向到位点,与染色体上的同源序列组成DNA双链,从而取代了原有的序列,以达到修复或替换某些基因的效果。
2. 同源重组技术的应用同源重组技术的应用广泛,其中最重要的是对基因的编辑和修复。
以下将介绍几种常见的同源重组技术应用:(1)质粒介导同源重组质粒介导同源重组是一种常用的基因工程技术。
这种技术主要是利用菌单倍体的同源重组能力,通过转化质粒来实现有选择性地在DNA的特定区域插入新基因。
这种技术特别适用于菌类以及一些单细胞真菌和原生生物。
(2)病毒介导同源重组病毒介导同源重组则运用了病毒自身的重组机制特征,对其进行了改造,使其能够以带选择性的方式在目标细胞中整合外源基因。
这种方法目前已经广泛应用于人类基因治疗领域,尤其在修复致病基因和引入新基因方面取得了显著进展。
(3)基因组编辑基因组编辑技术可以通过同源重组来治疗遗传性疾病。
比如,在用于治疗Friedreich's ataxia(FA)的基因治疗研究中,研究团队采用基因克隆技术构建了能够靶向FA基因的重组质粒,并通过同源重组的方式将其导入细胞中。
同源重组和相同的DNA修复机制
同源重组和相同的DNA修复机制DNA是构成生命体的基础,也是遗传信息的载体,但是在DNA复制和细胞分裂过程中,会出现许多突变和错误,因此细胞需要一套完善的机制来修复DNA,同时也需要一些特殊的机制来保证在细胞分裂时基因组的稳定性。
同源重组和相同的DNA修复机制就是其中两个非常重要的机制。
一、同源重组机制同源重组是一种重要的基因修复机制,主要发生在有性生殖的生物中。
在染色体发生断裂或受到多种损害的情况下,同源重组机制可以把损坏的DNA修复完整。
同源重组是指两条相同的DNA分子发生互相配对、断裂和重组的过程。
它需要两个相同的DNA分子在某些区域上具有完全相同的序列,即同源序列。
同源重组机制主要有两种形式:交叉连锁重组和非同源重组。
交叉连锁重组发生在有性生殖中,受交叉点的影响,在两条染色体的相同区域,交换杂交合子的DNA片段。
非同源重组则是发生在细胞中,DNA损伤时,细胞会短暂停止复制,启动同源重组,使恢复DNA的完整性。
同源重组机制在细胞遭遇致命DNA损伤时起着重要的角色,例如辐射、化学致癌剂、紫外线等。
同源重组机制除了能够修复DNA,还可以使DNA序列多样化,对物种的进化也起着非常重要的作用。
二、相同的DNA修复机制DNA修复机制是细胞保持基因组完整性的重要机制。
现有的DNA修复机制主要有四种:直接损伤修复、错配修复、基础切割修复和同源重组修复。
这些机制在基本原理上相似,它们的共同目标是清除损伤的DNA和重建功能完整的DNA双链。
相同的DNA修复机制是指在两个不同的细胞中,进行基本相同的DNA修复方案。
相同的DNA修复机制经常发生在原核和真核生物的细胞中,如细菌和哺乳动物细胞的DNA修复机制基本上是相同的。
DNA修复机制在生命的演化过程中起着至关重要的作用,它不仅可以减少DNA突变的发生,还能使DNA序列得以多样化。
此外,DNA修复机制对生命组织的功能、表现异同以及物种演化等都有一定的影响和意义。
同源重组对细胞DNA修复的影响研究
同源重组对细胞DNA修复的影响研究同源重组是一种基因重组方式,它能够在细胞分裂过程中发挥重要的作用。
该机制与DNA修复之间的联系是非常紧密的。
对同源重组在DNA修复中的影响进行研究,有助于加深我们对基因组稳定性和肿瘤发生机制的认识。
一、同源重组的基本原理同源重组是指两条相似的DNA分子在某些相同的区域发生交换,从而形成新的组合。
通常这两条DNA分子来自于染色体的不同部位,但具有相同的段落(称为同源序列)。
这种现象发生在细胞分裂过程中的染色体重组、染色体修复和重组修复等过程中。
同源重组的过程可以简单地追溯到三步:切割、粘贴和合并。
首先,一个酶复合物切割了某一条DNA分子上的一段序列。
该序列携带着细胞所需的信息,或者在分裂时出现了错误。
然后,这个酶复合物将切下的DNA分子与与其同源的另一条DNA分子的相应区域做粘接。
最后,经过一系列复杂的过程,这两个DNA分子被合并在一起。
这样,DNA序列得到了更新或修复,细胞分裂能够继续进行。
二、同源重组在细胞DNA修复中的作用DNA本身存在着各种自我修复机制,但当DNA发生严重的损伤时,这些自我修复机制就显得十分有限。
这时,就需要依靠其他机制,如同源重组,来修复损伤。
基于同源重组的DNA修复途径主要有两种:相互重组和非同侧重组。
相互重组指的是两条同源DNA分子在某一段区域发生切割和交错,形成新的组合。
非同侧重组则是通过同源重组的机制,在DNA双链断裂时使另一条同源染色体的DNA序列参与合并,从而对受损的DNA分子进行修复。
同源重组的作用不仅局限于DNA修复,它还能够在细胞周期中发挥调节作用。
一些先前的研究表明,同源重组失调可能会导致染色体不稳定、癌症等疾病的发生。
因此,深入研究同源重组的分子机制及其在细胞周期中的作用,对防治某些疾病具有重要的意义。
三、同源重组对DNA修复的影响研究同源重组在DNA修复中的重要作用已经得到了广泛的关注。
最近的研究显示,某些蛋白质对同源重组在DNA修复中的发挥具有重要作用。