
酶的国际系统分类法
编号
类别
反应底物数
概念
反应方程式
1
氧化还原酶类
双底物
催化底物进行各种氧化还原反应
2
转移酶类
双底物
催化底物之间进行某些基团的转移或交换的反应
3
水解酶类
单底物(逆反应不是)
催化底物发生各种水解反应ቤተ መጻሕፍቲ ባይዱ
4
裂合酶类
单底物
催化共价连接基团的转移并形成双键的反应或其逆反应
5
异构酶类
单底物
可催化各种同分异构体之间相互转化反应
6
合成酶类
三底物
催化两分子底物合成为一分子化合物,并伴随ATP磷酸键断裂释能的反应
酶的分类与命名

+
命名
分类
氧化还原酶
转移酶 水解酶 裂合酶
(5)
(6) (7)
异构酶
合成酶 核酶
CH3CCOOH NADH O
H+
生物 化学
1
(1)
(2) (3) (4)
酶的命名与分类
转移酶催化基团转移反应,即将一个底物分 子的基团或原子转移到另一个底物的分子上。
命名
分类
氧化还原酶
转移酶 水解酶 裂合酶
(5)
(6) (7)
异构酶
合成酶 核酶
6-磷酸葡萄糖异构酶催化的反应
生物 化学
1
(1)
(2) (3) (4)
酶的命名与分类
命名
分类
氧化还原酶
转移酶 水解酶 裂合酶
合成酶,又称为连接酶,能够催化C-C、 C-O、C-N 以及C-S 键的形成反应。这类反应 必须与ATP分解反应相互偶联。 A+B+ATP+H-O-H ===AB+ADP+Pi
1
(1) (2)
命名 习惯命名
系统命名
分类
生物 化学
酶的命名与分类
国际系统命名法
1
(1) (2)
规定一个酶只有一个系统名称;其命名原则是: 习惯命名 前面为底物名,后面为所催化反应的性质的名称, 底物间以“:”隔开,若底物之一是水时,可略去 系统命名 不写。对于可逆反应,不管催化的是正反应还是逆 反应,都用同一个名称。 分类3'B3'
B
3'
P
5'
P
5'
P
5'
植物生物化学—酶
酶活性部位(中心)的特点
活性部位只有几个氨基酸或某些基团组成 酶的活性部位是一个三维实体 酶的活性中心一般位于分子表面的疏水凹穴内 酶活性部位具有柔性和可运动性 酶与底物的结合是诱导契合过程 酶与底物通过次级键结合
活性部位仅占酶分子总体的相当小部分 (1-2%)
(1) 切除法 小分子、结构已知酶
(2)X-射线衍射分析 对比图谱,直接观察
(3)化学修饰法(共价标记)
恰当化合物:特异结合酶活性部位氨基酸侧链 二异丙基氟磷酸(DIFP/DFP)对酶活性部位
丝氨酸羟基的修饰
胰凝乳蛋白酶
Ser195
DFP不与Ser195以外的Ser结合
胰凝乳蛋白酶Ser195参与 酶-底物共价复合物的形成
2
5-甲酰尿苷-5'-三磷酸
被修饰残基 Cys Lys Glu Met
His57 Ser195
His
Met Cys
His
Asp52
Lys
二、酶原及酶原激活
➢酶原 (zymogen)
有些酶在细胞内合成或初分泌时只是酶的无活性 前体,此前体物质称为酶原。 ➢酶原激活
在一定条件下,酶原转化为有活性酶的过程。— —调控机制,不可逆。
自身激活
胰凝乳蛋白酶原(chymotrypsinogen) 的激活
酶原激活的机理
酶原 在特定条件下
一个或几个特定的肽键断裂,水解 掉一个或几个短肽
分子构象发生改变
形成或暴露出酶的活性中心
酶原激活的生理意义
1、避免细胞产生的酶对细胞进行自身消化, 并使酶在特定的部位和环境中发挥作用,保证 体内代谢正常进行。
生物化学第三章 酶
(四)酶的比活力(比活性) • 酶的比活力是指每单位质量样品中的酶 活力,即每毫克酶蛋白中所含的活力单 位数或每千克酶蛋白中所含的Kat数。
比活力=
酶活力单位数 酶蛋白质量(mg)
• 比活力是表示酶制剂纯度的一个重要指 标,对同一种酶而言,酶的比活力越高, 纯度越高。
七、酶促反应动力学
• 酶促反应动力学主要研究酶催化的反 应速度及影响反应速度的各种因素。 • 在探讨各种因素对酶促反应速度的影 响时,通常测定其初始速度来代表酶
单纯酶 酶→ 结合酶(全酶)→ 辅助因子→ 酶蛋白 辅酶 辅基 金属离子
●
●酶蛋白与辅助因子单独存在时均无催化活性,二 者只有结合成完整的分子时,才具有催化活性。 ●一种酶蛋白只与一种辅酶结合,组成一种全酶, 催化一种或一类底物进行某种化学反应。 ●一种辅酶可以和多种酶蛋白结合,组成多种全酶, 分别催化不同底物进行同一类反应。
(三) 诱导契合学说-关于酶作用专一性的假说 ●1890年,Emil Fischer提出“锁钥学说” :底 物的结构和酶活性部位的结构非常吻合,就象 锁和钥匙一样,这样它们就能紧密结合形成中 间产物。
底物
+
酶
酶 –底物复合物
●1958年,Koshland提出“诱导契合学说”: 酶活性部位的结构与底物的结构并不特别 吻合,但活性部位具有一定的柔性,当底 物与酶接近时,可以诱导酶活性中心的构 象发生改 变,使之 成为能与 底物分子 密切结合 的构象 。
促反应速度,即底物转化量 <5% 时的
反应速度。
(一)酶浓度对反应速度的影响 • 当反应系统中底物的浓度足够大时, 酶促反应速度与酶浓度成正比,即 ν =k[E]。
(二) 底物浓度对反应速度的影响
酶理论知识

(3)反应条件温和 常温、常压,中性pH环境。 (4)活性可调节 别构调节、酶的共价修饰、酶的合成、活 化与降解等。 (5)酶的催化活性离不开辅酶、辅基、金 属离子
二、酶的化学本质 1.发展史 (1)酶是蛋白质: 1926年,James Summer由刀豆制出脲酶结晶确 立酶是蛋白质的观念,其具有蛋白质的一切性 质。 (2)1963年,牛胰核糖核酸酶的一级结构 1965年,鸡卵清溶菌酶的三维结构 1969年,人工合成核糖核酸酶
不需要辅酶的酶:活性中心是酶分子在三维结 构上比较靠近的少数几个氨基酸残基或是这 些残基的某些基团。 需要辅酶的酶:辅酶分子或辅酶分子的某一部 分结构往往就是活性中心的组成部分。
与催化作用相关的结构特点 活性中心:酶分子中直接和底物结合并起催 化反应的空间局限(部位)。 结合部位:专一性 空间形状和氨基酸残基组成上,利于酶- 底物复合物的形成。
(1)相对专一性
不仅对键有要求,还对键一端的基团有要求,但对 另一端基团要求不严格。 α—D—Glc苷酶,水解蔗糖和麦芽糖。 (2)绝对专一性 只能作用于一个底物,或只催化一个反应。 麦芽糖酶只作用于麦芽糖,脲酶只催化尿素水解。
2、
立体异构专一性
(1) 旋光异构专一性 (2)几何异构专一性 反丁烯二酸水化酶只催化反丁烯二酸生成苹果酸 立体化学专一性还表现在酶能区分从有机化学观 点看属于对称分子中的两个等同的基团,并只 催化其中一个,而对另一个无作用。
★ 物
酶的辅助因子主要有金属离子和有机化合
金属离子:Fe2+ 、Fe3+ 、 Zn2+ 、 Cu+ 、Cu2+ 、 Mn2+、 、Mn3+ 、Mg2+ 、K+ 、 Na+ 、Mo6+ 、Co2+ 等。 有机化合物:NAD,NADP,FAD,生物素,卟啉 等
6 酶学与酶工程-4

缀合蛋白质(全酶)=蛋白质(脱辅酶, apoenzyme或apoprotein)+辅助因子 (cofactor) 辅助因子是指一些对热稳定的非蛋白质小 分子物质或金属离子,包括: (1)辅酶(coenzyme):与脱辅酶结合比较松 弛的小分子有机化合物,通过透析方法即可出 去,如辅酶Ⅰ等。 (2)辅基(cofactor):以共价键和脱辅酶结 合,不能通过透析出去。
第二节
酶促反应动力学
酶促反应动力学(kinetics of enzymecatalyzed reactions)是研究酶促反应的速度以 及影响此速度的各种因素的科学。 酶促反应动力学的研究既有重要的理论意义, 又具有一定的实践意义。
一、底物浓度对酶反应速度的影响
(一)中间络合物学说 1903年Henri用蔗糖酶水解做实验,研究底物浓度 与反应速率的关系。当酶浓度不变时,可以测出一系 列不同底物浓度下的反应速度,以反应速度对底物浓 度作图,可得一双曲线。从该曲线可以看出,当底物 浓度较低时,反应速率对底物浓度的关系呈正比关 系,表现为一级反应。随着底物浓度的增加,反应速 率不再按正比升高,反应表现为混合级反应。当底物 浓度达到相当高时,底物浓度对反应速率影响变小几 乎无关,反应达最大速率,为零及反应。
诱导契合学说
该学说认为酶表面并没有一种与底物互补 的固定形状,而只是由于底物的诱导才形 成了互补形状.
三、酶的化学本质及其组成
(一)酶的化学本质 酶的化学本质除有催化活性的RNA之外几 乎都是蛋白质。 注意:不能说所有的蛋白质都是酶,只是 具有催化活性的蛋白质才称酶。 (二)酶的化学组成 从化学本质来看,酶可以分为: 1. 单纯蛋白质(simple protein) 2. 缀合蛋白质(conjuga 草酰乙酸
第八章 酶通论
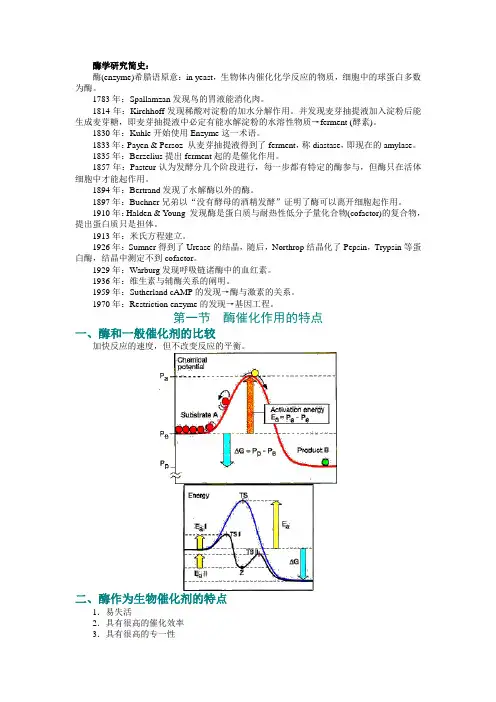
酶学研究简史:酶(enzyme)希腊语原意:in yeast,生物体内催化化学反应的物质,细胞中的球蛋白多数为酶。
1783年:Spallamzan发现鸟的胃液能消化肉。
1814年:Kirchhoff发现稀酸对淀粉的加水分解作用。
并发现麦芽抽提液加入淀粉后能生成麦芽糖,即麦芽抽提液中必定有能水解淀粉的水溶性物质→ferment (酵素)。
1830年:Kuhle开始使用Enzyme这一术语。
1833年:Payen & Persoz 从麦芽抽提液得到了ferment,称diastase,即现在的amylase。
1835年:Berzelius提出ferment起的是催化作用。
1857年:Pasteur认为发酵分几个阶段进行,每一步都有特定的酶参与,但酶只在活体细胞中才能起作用。
1894年:Bertrand发现了水解酶以外的酶。
1897年:Buchner兄弟以“没有酵母的酒精发酵”证明了酶可以离开细胞起作用。
1910年:Halden & Young 发现酶是蛋白质与耐热性低分子量化合物(cofactor)的复合物,提出蛋白质只是担体。
1913年:米氏方程建立。
1926年:Sumner得到了Urease的结晶,随后,Northrop结晶化了Pepsin,Trypsin等蛋白酶,结晶中测定不到cofactor。
1929年:Warburg发现呼吸链诸酶中的血红素。
1936年:维生素与辅酶关系的阐明。
1959年:Sutherland cAMP的发现→酶与激素的关系。
1970年:Restriction enzyme的发现→基因工程。
第一节酶催化作用的特点一、酶和一般催化剂的比较加快反应的速度,但不改变反应的平衡。
二、酶作为生物催化剂的特点1.易失活2.具有很高的催化效率3.具有很高的专一性4.酶的活性受到调节控制调节酶的浓度通过激素调节酶的活性反馈抑制调节酶的活性抑制剂和激活剂调节酶的活性其他调节方式如别构调节第三节酶的命名法一、习惯命名法二、国际系统命名法三、国际系统分类法及酶的编号每种酶的号由4个数字组成,中间用“.”隔开,分别代表大类.亚类.亚亚类.序号,如:EC1.2.3.2是黄嘌啉:氧化还原酶的编号。
7酶
( 全 酶 ) 辅基
有机小分子
决定催化 决定催化 反应的特异性 反应的类型 (选择E催化的S)(递电子、氢或一些基团)
辅酶
辅基与辅酶:与酶蛋白共价结合,牢而不易分离(辅基) 与酶蛋白非共价结合,疏松而易分离(辅酶)
单成分酶的蛋白质本身即具有催化活性。
一、酶的催化的特性
(一)高度的催化效率
S
E
P
(二)高度的催化专一性(特异性)
—— 酶对所作用的底物有一定的选择性 相对专一性: 绝对专一性: 一种E能催化一类S 一种E只能催化一种S
立体异构专一性:一种E只能催化一种S的某一种特定构型
(三)反应条件温和----不稳定性 (四)自我更新与调节
酶的催化特性举例
如 果糖-1,6-2P 醛缩酶 磷酸二羟基丙酮+3-磷酸甘油 又如, 延胡索酸水合酶催化的反应。
HOOCCH=CHCOOH H2O
HOOCCH2CHCOOH OH
(五)异构酶类
异构酶催化各种同分异构体的相互转化,即底物分 子内基团或原子的重排过程。 反应通式: A ==== B
相对专一性:一种E能催化一类S (一种化学键/水解酶类)
一种酶可作用于一类化合物或一种化学键,这种 不太严格的专一性称为相对专一性。 如脂肪酶不仅水解脂肪,也能水解简单的酯类。
磷酸酶对一般的磷酸酯都有作用,无论是甘油的 还是一元醇或酚的磷酸酯均可被其水解。
绝对专一性:
一种E只能催化一种S (脲酶)
第七章 酶
第一节
酶的概述 第二节 酶的结构和作用机制 第三节 影响酶促反应的因素 第四节 重要的酶类
酶化学
第三章酶学I 主要内容一、酶的组成分类1.酶的化学本质是蛋白质,可以分为简单蛋白和结合蛋白。
2.简单蛋白质酶类:这些酶的活性仅仅由它们的蛋白质结构决定。
3.结合蛋白质酶类:这些酶的活性取决于酶蛋白和辅因子两部分。
辅因子主要包括无机离子和有机小分子两种物质,其中有机小分子又根据其与酶蛋白结合的紧密程度不同分为辅酶和辅基。
在结合蛋白质酶类分子中,酶促反应的专一性主要由酶蛋白质的结构决定,催化性质则主要由辅因子化学结构所决定。
二、酶的催化特性1.高效性:酶的催化效率非常高,酶促反应的速度与化学催化剂催化的反应速度高1010倍左右。
2.专一性:每一种酶只能作用于某一类或某一种物质。
根据专一性的程度可分为绝对、相对专一性和立体结构专一性三种类型。
3.温和性:酶一般是在体温、近中性的pH及有水的环境下进行,作用条件较为温和。
4.酶活性的可调节性:细胞内酶活性可以受底物浓度、产物浓度等许多因素的影响。
三、酶的命名和分类1.命名法:习惯命名法和系统命名法。
2.国际系统分类和编号:根据国际系统分类法的原则,所有的酶促反应按反应性质分为六大类,用1,2,3,4,5,6的编号来表示。
1-氧化还原酶类;2-转移酶类;3-水解酶类;4-裂合酶类;5-异构酶类;6-合成酶类。
如:Ecl.1.1.27 乳酸:NAD+氧化还原酶。
四、酶活力(或酶活性)、比活力表示法用反应初速度表示酶活力。
酶活力单位:U;酶的比活力:U/mg蛋白质五、酶促反应动力学1.底物浓度对酶促反应速度的影响。
米氏常数(Km):当酶反应速度达到最大反应速度一半时的底物浓度。
它是酶的特征性常数之一,只与酶的种类有关,而与底物浓度无关;米氏常数(Km)的测定主要采用双倒数作图法。
2.温度对酶反应速度的影响:最适温度:酶反应速度最大的环境温度,它是酶的条件性特征常数,只在一定情况下才有意义。
3.pH对酶促反应速度的影响:最适pH:酶反应速度最大的介质pH值。
4.酶浓度对酶反应速度的影响:当底物浓度远远大于酶浓度时,反应速度与酶浓度成正比。
生物化学第三章酶化学
金属离子催化 提高水的亲核性能
五 几种酶结构事例(略)
第五节 酶促反应的动力学
有哪些因素影响酶促反应呢? 酶浓度、底物浓度、温度、pH、激活剂、抑制剂 一 酶浓度的影响
底物浓度足够的情况下: v=k[E] V=k[Et]
5、异构酶类 催化同分异构体之间的相互转化。
通式:A→B 其中:A、B为同分异构
包括消旋酶、异构酶、变位酶等。共6个亚 类。
6、合成酶类 催化由两种物质合成一种物质,必须与ATP
分解相偶联。也叫连接酶,如DNA连接酶。
通式:A+B+ATP→AB+ADP+Pi
或 A+B→AB+AMP+PPi
第一节 通论(General Introduction)
一 酶是生物催化剂 1 酶的概念:酶是活细胞产生的具有催化作用的蛋白质。它
具有高度的专一性、高效的催化性、活性的可调性和代谢 性等催化特点。 2 酶概念的提出及目前的内涵问题(Enzyme/Ribozyme) 1982年,Cech首先发现RNA也具有酶的催化活性,并提 出核酶(ribozyme)的概念。 2019年Cuenoud等发现DNA也有酶的活性。 3 酶是蛋白质的证据(酶的化学本质) 遇热、两性、变性、胶体性质、蛋白酶降解、测序、合成
生成速率与分解速率相等。 ②酶促反应中[S]大大高于[E],因此[S]的
变化在反应过程可忽略不计。
(三)Km和Vmax的意义 1.当反应速率为最大速率一半时,米氏方 程为:
V = Vmax 2
Vmax 2
=Vmax [S] Km+[S]
酶化学练习题
酶化学1.全酶由酶蛋白和辅助因子组成,在催化反应时,二者所起的作用不同,其中酶蛋白决定酶的专一性和高效率,辅助因子起传递电子、原子或化学基团的作用2.辅助因子包括辅酶、辅基和金属离子等,其中辅基域酶蛋白紧密结合,需要用化学方法处理,辅酶与酶蛋白结合疏松,可用透析法除去3.酶是由活细胞产生的,具有催化能力的生物催化剂4.酶活力的调节包括酶量的调节和酶活性的调节5.T.R.Cech和S.Altman因各自发现了核酶而共同获得1989年的诺贝尔奖6.1986年,R.A.Lerner和P.G.Schultz等发现了具有催化活性的抗体,称为抗体酶7.根据国际系统分类法,所有的酶按所催化的化学反应的性质可分为六大类,即氧化还原酶类、转移酶类、水解酶类、裂合酶类、异构酶类和合成酶8.根据酶的专一性程度不同,酶的专一性可划分为绝对专一性、相对专一性和立体专一性9.关于酶作用专一性提出的假说有锁钥学说、酶与底物结合的三点附着学说和诱导契合假说等几种10.酶的活性中心包括结合部位和催化部位两个功能部位,其中结合部位直接与底物结合,决定酶的专一性,催化部位是发生化学变化的部位,决定催化反应的性质11.酶活力是指酶催化化学反应的能力,一般用一定条件下,酶催化某一化学反应的反应速度表示12.通常讨论酶促反应的反应速度时,指的是反应的初速度,即底物消耗量<5%时测得的反应速率13.常用的化学修饰剂DFP可以修饰Ser残基,TPCK常用于修饰酶胰凝乳蛋白酶活性中心的His残基,TLCK经常用于修饰酶胰蛋白酶活性中心的His残基,碘代乙酸修饰Cys14.酶反应的温度系数Q10一般为1-215.调节酶包括别构酶和共价调节酶等16.解释别构酶作用机制的假说有序变模型和齐变模型两种,其中齐变模型不能解释负协同效应17.固定化酶的优点包括稳定性好、可反复使用、易于与反应液分离18.固定化酶的理化性质会发生改变,如Km增大、Vmax减小等19.同工酶是指能催化同一种化学反应,但酶蛋白本身的分子结构、组成、理化性质等不同的一组酶,如乳酸脱氢酶同工酶20.pH影响酶活力的原因可能有以下几方面:①影响底物分子的解离状态②影响酶分子的解离状态③影响中间复合物的解离状态21.温度对酶活力影响有以下两方面:一方面温度升高,可使反应速度加快,另一方面温度太高,会使酶蛋白变性而失活22.脲酶只作用于尿素,而不作用于其他任何底物,因此它具有绝对专一性;甘油激酶可以催化甘油磷酸化,仅生成甘油-1-磷酸一种底物,因此它具有立体专一性23.酶促动力学的双倒数作图,得到的直线在横轴上的截距为-1/Km,纵轴上的截距为1/Vmax24.磺胺类药物可以抑制二氢叶酸合成酶,从而抑制细菌生长繁殖25.如果加入足够量的底物,即使有竞争性抑制剂存在,酶催化的最大反应速度V max是可以达到的(对)26.酶反应的专一性取决于其辅助因子的结构(错)27.酶影响它所催化反应的平衡(错)28.酶促反应的米氏常数与所催化反应的底物无关(错)29.同一种辅酶与酶蛋白之间可有共价和非共价两种不同类型的结合方式(错)30.在测定酶活力时,必须使酶的浓度大大地高于底物浓度(错)31.酶最适pH只取决于酶蛋白本身结构(错)32.某一酶反应的最适pH和最适温度都是恒定的,是酶的特征常数(错)33.酶促反应浓度与酶浓度成正比(对)34.大部分酶在生理pH时活性最高(对)35.同工酶是指能催化同一个反应,有相同控制特征的一组酶(错)36.某些酶的Km值可因某些结构上与底物相似的代谢物存在而改变(对)37.根据米氏方程,转换数Kcat值越大的酶反应速度越大(错)38.米氏常数Km值是一个与酶浓度无关的特征常数,但表观Km值受酶浓度的影响(错)39.对一个正协同别构酶而言,当增加正调节物浓度时,协同性增加(对)40.酶反应最适pH不仅取决于酶分子的解离情况,同时也取决于底物分子的解离情况(对)41.寡聚酶一般是指由多个相同亚基组成的酶分子(错)42.酶的Km值是酶的特征常数,不随测定的pH和温度而改变(错)43.米氏常数Km是与反应系统的酶浓度无关的一个常数(对)44.酶的最适pH与酶的等电点是两个不同的概念,但两者之间有相关性,两个数值通常比较接近或相同(错)45.国际酶学委员会规定,一个酶单位为1 min能催化1 μmol分子浓度的底物转变为产物的酶量(错)46.酶促反应的初速度与底物浓度无关(错)47.不是所有的蛋白质都是酶,但只有蛋白质才可以充当酶的作用(错)48.酶的Km值是指达到Vmax所需的底物浓度的一半(错)49.辅基是酶的组成部分,总是位于酶的活性部位(对)50.酶原激活是酶蛋白构象发生变化的结果(对)51.脂肪酸合成与脂肪酸分解都是由多酶体系催化完成的(对)52.正协同效应使酶促反应速度对底物浓度变化越来越敏感(对)53.在结构上与底物无关的各种代谢物有可能改变一些酶的Km值(对)54.非竞争性抑制作用可通过提高酶浓度的方式来解除抑制作用(错)55.当[S]≤[E]时酶促反应的速度与底物浓度无关(错)56.别构酶的动力学曲线为S形(错)57.如果加入足够的底物,即使存在非竞争抑制剂,酶催化反应也能达到正常的Vmax (错)58.同工酶是指功能和结构相同的一类酶(错)59.His残基常常参与构成酶的活性中心(对)60.酶的催化机制完全可以用酶与底物的“锁钥学说"阐明(错)61.Ribozyme(核酶)只能以RNA为底物进行催化反应(错)62.酶活力的降低一定是因为酶失活作用引起的(错)63.在酶的活性中心,只有带电荷的氨基酸残基直接参与酶的催化(错)64.同工酶各自对同一底物的米氏常数相同或相似(错)65.由于酶反应的速度较快,因而酶反应的温度系数高于一般化学反应的温度系数(错)66.抑制剂对酶的抑制作用是酶蛋白变性的结果(错)67.别构酶都是寡聚酶(错)68.在酶的催化反应中,His残基的咪唑基既可起酸催化作用,也可起碱催化作用(对)69.pH通过影响酶活性中心氨基酸的解离状态来影响酶的反应速度(对)70.米氏方程同样适合别构酶(错)71.在一定条件下,米氏常数可用来判断酶与底物的亲和力(对)72.Km值由酶和底物的相互关系决定(对)73.别构活化中酶的构象应从T-R平衡转向R态(对)74.酶反应的Vmax由底物浓度决定(错)75.酶的竞争性抑制剂不影响酶促反应的最大速度,但降低了米氏常数(错)76.对于酶的催化活性来说,酶蛋白的一级结构是必需的,而与酶蛋白的构象关系不大(错)77.酶的化学本质大部分是蛋白质(对)78.酶促反应的能量效应是降低反应的活化能(对)1.下列关于酶的说法不正确的是()A.酶在结合底物时表现很高专一性B.酶的催化活性可以改变C.酶能提高正向反应和逆向反应的速率D.酶结合底物的作用力一定是疏水作用答案:D2.酶催化反应需要()A.结合调节蛋白B.活性部位残基被共价修饰C.选择性结合具有高亲和性的反应过渡态D.底物具有高亲和性答案:C3.国际酶学委员会划分六大类酶的依据是(A)A.酶催化反应B.酶的结构C.酶的底物D.酶的性质4.酶-底物复合物是()A.酶催化过程中的短暂性结构B.经过相互诱导契合形成的结构C.一种可以被分离纯化的结构D.一种彼此紧密结合的结构答案:AC5.下列有关反应速率说法不正确的是(C)A.反应速率是反应趋向平衡的速率B.酶能加速反应C.反应速率对温度不敏感D.反应速率受反应物和产物之间的能障控制1.以下哪一点不是酶作为生物催化剂的特点:(A )A.分子小B.高效性C.可调节D.专一性2.根据2018年的最新分类方法,酶主要包括几大类?(C )A.7B.8C.6D.53.可逆抑制作用主要包括:()A.反竞争性抑制B.别构抑制C.非竞争性抑制D.竞争性抑制答案:ACD4.测定米氏常数,可以帮助我们:()A.判断反应级数B.区分同工酶C.寻找酶的天然底物D.判断代谢途径方向答案:ABCD5.酶的可逆抑制可以通过透析的方法解除。