
最新[应用]2 酶学与酶工程 第二章 学生教学讲义PPT课件
1.酶的变性和失活 2.活性中心的挠性 3.酶分子的结构域
14
College of Life Sciences
(三)酶的四级结构与催化功能的关系
具有四级结构的酶,按其功能可分为两类,一类与催 化作用有关,另一类与代谢调节关系密切。
15
College of Life Sciences
三、酶催化作用的基本理论
10Biblioteka College of Life Sciences
(三) 组成活性中心的重要化学基团
丝氨酸、组氨酸、半胱氨酸、酪氨酸、色氨酸、天冬氨酸、谷氨 酸和赖氨酸
11
College of Life Sciences
二、酶的结构和功能的关系
(一)酶的一级结构与催化功能的关系 酶的一级结构是酶的基本化学结构,是催化功能的基础。
狭义酸碱催化:H+和OH-
(specific acid-base catalysis)
广义酸碱催化:质子供体和质子受体
(general acid-base catalysis
21
College of Life Sciences
三、降低反应活化能的因素 Table Functional groups involved in general acid-base catalysis
College of Life Sciences
2. 酸碱催化(acid or base catalysis)
酸碱催化是通过瞬时地向反应物提供质子或从反应物接受质子以 稳定过渡态、加速反应的一类催化机制。由于E活性中心含有酸碱 基团,它们可以与S中的酸碱基团进行质子交换,加强了E与S的相互 作用,减弱了S分子内部的化学键,使S由稳态→不稳态
22
College of Life Sciences
3. 共价催化(covalent catalysis) 共价催化又称亲核催化(nucleophilic catalysis)
或亲电子催化(electrophilic catalysis) 亲核攻击集团: -OH,-SH,-N(咪唑基) 底物亲电中心:
2
College of Life Sciences
必需基团
结合部位
活性中心
催化部位
活性中心外的必需基团
活性中心外的必需基团与维持整个酶分子的空间构象有关
3
College of Life Sciences
College of Life Sciences
College of Life Sciences
(一)酶—底物复合物
1.酶-底物复合物存在的证据 1903年,Henri用蔗糖水解酶水解蔗糖提出的。
E+S= ES= P+ E (S:substrate, P: product)
在反应过程中,酶首先与底物形成酶-底物中间复合物(ES, enzyme-substrate intermediates),再分解成酶(E)和产物(P), 使反应沿一个低活化能的途径进行,降低反应所需活化能。
3.差别标记
在过量底物或可逆抑制剂遮蔽活性中心的情况下, 加入共价修饰剂,使后者只修饰活性中心以外的有关 基团;然后去除底物或可逆抑制剂,暴露活性中心, 再用同位素标记的向一修饰剂作用于活性中心的同类 基团;将酶水解后分离带有同位素的氯基酸,即可确 定该氨基酸参与活性中心。
8
College of Life Sciences
4.蛋白质工程
这是研究酶必需基闭和活性中心的最先进方法,即将酶蛋白相应 的互补DNA(cDNA)定点突变,此突变的cDNA表达出只有一个或几 个氨基酸被置换的酶蛋白,再测定其活性,可以知道被置换的氨 基酸是否为活力所必需。
优点:
9
College of Life Sciences
优点: 改变酶蛋白中任一氨基酸而不影响其他同类残基 改变疏水残基,使其转变成亲水或另一疏水残基 同时改变活性中心内外的几个氨基酸 个或多个氨基酸的缺乏或插入 改变酶蛋白的磷酸化位点或糖化位点 不致引起立体障碍
12
College of Life Sciences
胰蛋白酶原(trypsinogen)的激活
13
(二)酶的二级和三级结构与催化功能的关系
酶的二级、三级结构是所有酶都必须具备的空间构型。维持酶的 活性部位所必须的酶蛋白的二级和三级结构彻底改变,就会使酶 遭受破坏而丧失其催化功能,这是蛋白质变性的依据。
[应用]2 酶学与酶工程 第 二章 学生
第一节 酶的结构与功能
一、酶的活性中心 (active center,active site) (一)活性中心和必需基团 与酶活性显示有关的,具有结合和催化底物形成产物的空间区域 ,叫酶的活性中心,又叫活性部位。 活性中心可分为结合部位和催化部位。
结合部位决定酶的专一性, 催化部位决定酶所催化反应的性质。
2.诱导契合学说(induced-fit hypothesis)
19
College of Life Sciences
(三)酶作用的高效性机制
1. S与E的靠近效应和定向效应 proximity and orientation
靠近效应:指两个反应的分子,它们反应的基团 需要互相靠近,才能反应。
20
磷酰基(P=O)酰基(C=O) 糖基(Glu-C-OH)
23
College of Life Sciences
底物中典型的亲电中心为磷酰基、酰基和糖基
酶分子上未共 用电子对攻击 正电性原子
24
College of Life Sciences
4.金属离子催化 5.多元催化 6.微环境的影响
College of Life Sciences
2.亲和标记
共价修饰剂是底物的类似物,可专一性地引入酶 的活性中心,并具有活泼的化学基团(如卤素),可 与活性中心的基团形成稳定的共价键。因其作用机 制是利用酶对底物类似物的亲和性而将酶共价标记 的,故称为亲和标记。
7
College of Life Sciences
16
College of Life Sciences
2. 酶与底物形成复合物的作用力 1)离子键 2)氢键 3)范德华力
17
College of Life Sciences
(二)酶作用的专一性机制
1.锁钥学说(lock and key theory)
18
College of Life Sciences
14
College of Life Sciences
(三)酶的四级结构与催化功能的关系
具有四级结构的酶,按其功能可分为两类,一类与催 化作用有关,另一类与代谢调节关系密切。
15
College of Life Sciences
三、酶催化作用的基本理论
10Biblioteka College of Life Sciences
(三) 组成活性中心的重要化学基团
丝氨酸、组氨酸、半胱氨酸、酪氨酸、色氨酸、天冬氨酸、谷氨 酸和赖氨酸
11
College of Life Sciences
二、酶的结构和功能的关系
(一)酶的一级结构与催化功能的关系 酶的一级结构是酶的基本化学结构,是催化功能的基础。
狭义酸碱催化:H+和OH-
(specific acid-base catalysis)
广义酸碱催化:质子供体和质子受体
(general acid-base catalysis
21
College of Life Sciences
三、降低反应活化能的因素 Table Functional groups involved in general acid-base catalysis
College of Life Sciences
2. 酸碱催化(acid or base catalysis)
酸碱催化是通过瞬时地向反应物提供质子或从反应物接受质子以 稳定过渡态、加速反应的一类催化机制。由于E活性中心含有酸碱 基团,它们可以与S中的酸碱基团进行质子交换,加强了E与S的相互 作用,减弱了S分子内部的化学键,使S由稳态→不稳态
22
College of Life Sciences
3. 共价催化(covalent catalysis) 共价催化又称亲核催化(nucleophilic catalysis)
或亲电子催化(electrophilic catalysis) 亲核攻击集团: -OH,-SH,-N(咪唑基) 底物亲电中心:
2
College of Life Sciences
必需基团
结合部位
活性中心
催化部位
活性中心外的必需基团
活性中心外的必需基团与维持整个酶分子的空间构象有关
3
College of Life Sciences
College of Life Sciences
College of Life Sciences
(一)酶—底物复合物
1.酶-底物复合物存在的证据 1903年,Henri用蔗糖水解酶水解蔗糖提出的。
E+S= ES= P+ E (S:substrate, P: product)
在反应过程中,酶首先与底物形成酶-底物中间复合物(ES, enzyme-substrate intermediates),再分解成酶(E)和产物(P), 使反应沿一个低活化能的途径进行,降低反应所需活化能。
3.差别标记
在过量底物或可逆抑制剂遮蔽活性中心的情况下, 加入共价修饰剂,使后者只修饰活性中心以外的有关 基团;然后去除底物或可逆抑制剂,暴露活性中心, 再用同位素标记的向一修饰剂作用于活性中心的同类 基团;将酶水解后分离带有同位素的氯基酸,即可确 定该氨基酸参与活性中心。
8
College of Life Sciences
4.蛋白质工程
这是研究酶必需基闭和活性中心的最先进方法,即将酶蛋白相应 的互补DNA(cDNA)定点突变,此突变的cDNA表达出只有一个或几 个氨基酸被置换的酶蛋白,再测定其活性,可以知道被置换的氨 基酸是否为活力所必需。
优点:
9
College of Life Sciences
优点: 改变酶蛋白中任一氨基酸而不影响其他同类残基 改变疏水残基,使其转变成亲水或另一疏水残基 同时改变活性中心内外的几个氨基酸 个或多个氨基酸的缺乏或插入 改变酶蛋白的磷酸化位点或糖化位点 不致引起立体障碍
12
College of Life Sciences
胰蛋白酶原(trypsinogen)的激活
13
(二)酶的二级和三级结构与催化功能的关系
酶的二级、三级结构是所有酶都必须具备的空间构型。维持酶的 活性部位所必须的酶蛋白的二级和三级结构彻底改变,就会使酶 遭受破坏而丧失其催化功能,这是蛋白质变性的依据。
[应用]2 酶学与酶工程 第 二章 学生
第一节 酶的结构与功能
一、酶的活性中心 (active center,active site) (一)活性中心和必需基团 与酶活性显示有关的,具有结合和催化底物形成产物的空间区域 ,叫酶的活性中心,又叫活性部位。 活性中心可分为结合部位和催化部位。
结合部位决定酶的专一性, 催化部位决定酶所催化反应的性质。
2.诱导契合学说(induced-fit hypothesis)
19
College of Life Sciences
(三)酶作用的高效性机制
1. S与E的靠近效应和定向效应 proximity and orientation
靠近效应:指两个反应的分子,它们反应的基团 需要互相靠近,才能反应。
20
磷酰基(P=O)酰基(C=O) 糖基(Glu-C-OH)
23
College of Life Sciences
底物中典型的亲电中心为磷酰基、酰基和糖基
酶分子上未共 用电子对攻击 正电性原子
24
College of Life Sciences
4.金属离子催化 5.多元催化 6.微环境的影响
College of Life Sciences
2.亲和标记
共价修饰剂是底物的类似物,可专一性地引入酶 的活性中心,并具有活泼的化学基团(如卤素),可 与活性中心的基团形成稳定的共价键。因其作用机 制是利用酶对底物类似物的亲和性而将酶共价标记 的,故称为亲和标记。
7
College of Life Sciences
16
College of Life Sciences
2. 酶与底物形成复合物的作用力 1)离子键 2)氢键 3)范德华力
17
College of Life Sciences
(二)酶作用的专一性机制
1.锁钥学说(lock and key theory)
18
College of Life Sciences
合集下载
《酶学与酶工程》PPT课件

德国科学家。师从凯库勒。 他发现了苯肼,对糖类、 嘌呤类有机化合物的研究 取得了突出的成就,因而 荣获1902年的诺贝尔化学 奖。
认为整个酶分子的天然构 象是具有刚性结构的,酶表面具有 特定的形状。酶与底物的结合如同 一把钥匙对应一把锁一样。
2、诱导契合模型(induced-fit model) 1958年由Koshland 提出。
第三个数字表示电子受体:NAD+
第四个数字表示此酶底物:乙醇。 前面三个编号表明这个酶的特性:反应性质、底物性
质(键的类型)及电子或基团的受体,第四个编号用
于区分不同的底物。
二、酶的组成和结构特点
(一)酶的化学本质
酶除了少数有催化活性的RNA分子外,几乎所有的酶都是蛋白质。具 有蛋白质的典型性质。同时具有自身的特性。
亲水基团在外表,而疏水基团向内。
三、酶的作用机制
(一)结合部位 Binding site
酶分子中与底物结合的部位或区域一般称为结合部位。
(二)催化部位 catalytic site
酶分子中 促使底物发生化 学变化的部位称 为催化部位。
酶的活性中心的概念
通常将酶的结合部位和催化部位总 称为酶的活性部位或活性中心。 ✓ 结合部位决定酶的专一性, ✓ 催化部位决定酶所催化反应的性质。
精品医学102中国国家级菌种保藏管理中心中国国家级菌种保藏管理中心中国农业微生物菌种保藏管理中心中国农业科学院土壤肥料研accc1980中国工业微生物菌种保藏管理中心中国食品发酵工业研究院cicc1979中国医学微生物菌种保藏管理中心中国药品生物制品检定所cmcc1979中国兽医微生物菌种保藏管理中心中国兽医药品检定所cvcc1979中国林业微生物菌种保藏管理中心中国林业科学研究院cfcc1985中国抗菌素菌种保藏管理中心中国医学科学院医药生物技术研究所cacc1979中国普通微生物菌种保藏管理中心中国科学院微生物研究所ccgmc1979精品医学103国外菌种中心国外菌种中心americantypeculturecollectionhttp
认为整个酶分子的天然构 象是具有刚性结构的,酶表面具有 特定的形状。酶与底物的结合如同 一把钥匙对应一把锁一样。
2、诱导契合模型(induced-fit model) 1958年由Koshland 提出。
第三个数字表示电子受体:NAD+
第四个数字表示此酶底物:乙醇。 前面三个编号表明这个酶的特性:反应性质、底物性
质(键的类型)及电子或基团的受体,第四个编号用
于区分不同的底物。
二、酶的组成和结构特点
(一)酶的化学本质
酶除了少数有催化活性的RNA分子外,几乎所有的酶都是蛋白质。具 有蛋白质的典型性质。同时具有自身的特性。
亲水基团在外表,而疏水基团向内。
三、酶的作用机制
(一)结合部位 Binding site
酶分子中与底物结合的部位或区域一般称为结合部位。
(二)催化部位 catalytic site
酶分子中 促使底物发生化 学变化的部位称 为催化部位。
酶的活性中心的概念
通常将酶的结合部位和催化部位总 称为酶的活性部位或活性中心。 ✓ 结合部位决定酶的专一性, ✓ 催化部位决定酶所催化反应的性质。
精品医学102中国国家级菌种保藏管理中心中国国家级菌种保藏管理中心中国农业微生物菌种保藏管理中心中国农业科学院土壤肥料研accc1980中国工业微生物菌种保藏管理中心中国食品发酵工业研究院cicc1979中国医学微生物菌种保藏管理中心中国药品生物制品检定所cmcc1979中国兽医微生物菌种保藏管理中心中国兽医药品检定所cvcc1979中国林业微生物菌种保藏管理中心中国林业科学研究院cfcc1985中国抗菌素菌种保藏管理中心中国医学科学院医药生物技术研究所cacc1979中国普通微生物菌种保藏管理中心中国科学院微生物研究所ccgmc1979精品医学103国外菌种中心国外菌种中心americantypeculturecollectionhttp
酶工程应用.ppt
化剂的人工合成研究。
5 与 酶-生物催化 相关会议
❖ Gordon Research Conferences--enzyme ❖ Harden - Enzymes: Nature's molecular machines ❖ Southeast Enzyme Conference ❖ Texas Enzyme Mechanism Conference ❖ Midwest Enzyme Chemistry Conference ❖ Enzyme Engineering Conference ❖ Novel Enzymes ❖ New England Membrane Enzyme Group (NUTMEG) Conference ❖ Taiwan enzyme mechanism conference ❖ Biotechnology & Enzyme Catalysis ❖ European Symposium on Enzymes in Grain Processing
2.3 当前酶工程的研究热点:
• 研制分解纤维素和木质素的酶、低分子有机物聚合酶、 检测用酶、能分解有毒物质的酶及废物综合利用酶。
•利用基因工程技术开发新酶品种和提高酶产量。 •固定化酶和细胞、固定化多酶体系及辅因子再生体系,特定
生物反应的研究和应用。 •用微生物和动植物组织研究生物传感器。 •非水系统的反应技术,酶分子的修饰与改造以及酶型高效催
其中固定化酶技术是酶工程的核心。实际上有了 酶的固定化技术,酶在工业生产中的利用价值才真正 得以体现。
实例 1
酶工程产品益 生源,用于饲 料添加剂
实例 2
酶工程产品万寿胶囊 用于补充人体营养物质
实例 3 生态复合酶制剂,用于改善环境
5 与 酶-生物催化 相关会议
❖ Gordon Research Conferences--enzyme ❖ Harden - Enzymes: Nature's molecular machines ❖ Southeast Enzyme Conference ❖ Texas Enzyme Mechanism Conference ❖ Midwest Enzyme Chemistry Conference ❖ Enzyme Engineering Conference ❖ Novel Enzymes ❖ New England Membrane Enzyme Group (NUTMEG) Conference ❖ Taiwan enzyme mechanism conference ❖ Biotechnology & Enzyme Catalysis ❖ European Symposium on Enzymes in Grain Processing
2.3 当前酶工程的研究热点:
• 研制分解纤维素和木质素的酶、低分子有机物聚合酶、 检测用酶、能分解有毒物质的酶及废物综合利用酶。
•利用基因工程技术开发新酶品种和提高酶产量。 •固定化酶和细胞、固定化多酶体系及辅因子再生体系,特定
生物反应的研究和应用。 •用微生物和动植物组织研究生物传感器。 •非水系统的反应技术,酶分子的修饰与改造以及酶型高效催
其中固定化酶技术是酶工程的核心。实际上有了 酶的固定化技术,酶在工业生产中的利用价值才真正 得以体现。
实例 1
酶工程产品益 生源,用于饲 料添加剂
实例 2
酶工程产品万寿胶囊 用于补充人体营养物质
实例 3 生态复合酶制剂,用于改善环境
酶工程课件第二章
(2-6)
(2-7)
第一节 酶促反应动力学
当底物浓度很高时,所有酶都与底物结合生成中间产物ES, 则[E]t=[ES]。此时反应速度达到最大Vmax,即
Vmax= k3 [ES]= k3[E]t
(2-8)
(2-7)除以(2-8),并整理得
(2-9)
这就是米-曼氏方程(Michaelis-Menten equation),又称 为米氏方程,式中的Km是一常数值,称为米氏常数。在特殊情 况下,当v = Vmax时,米氏方程可转化为下式:
第二节 影响酶促反应的因素
酶的活性虽然随着温度的降低而减弱,但低温一般不破坏酶,只是酶 的催化活性很微弱,当温度回升后,酶又恢复其活性。临床上的低温麻醉 就是利用低温能降低酶的活性,以减慢组织细胞的代谢速度,提高机体对 氧和营养物质缺乏的耐受性,有利于手术治疗。低温保存菌种和生物制品 也是基于同一原理。
第一节 酶促反应动力学
一、单底物动力学
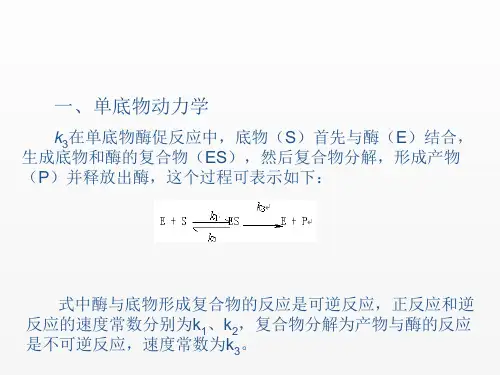
k3在单底物酶促反应中,底物(S)首先与酶(E)结合, 生成底物和酶的复合物(ES),然后复合物分解,形成产物 (P)并释放出酶,这个过程可表示如下:
式中酶与底物形成复合物的反应是可逆反应,正反应和逆 反应的速度常数分别为k1、k2,复合物分解为产物与酶的反应 是不可逆反应,速度常数为k3。
值得注意的是酶在试管中反应的最适pH与其所在正常细胞 的生理pH值不一定是相同的。这主要是因为一个细胞中有数百 种酶,不同的酶对细胞内的生理pH值的敏感性不一样,对有些 酶而言可能已达到或者接近其最适pH,而对另一些酶则不是, 这就致使不同的酶表现出不同的活性。这种不同被认为对细胞 内复杂的各种代谢活动有重要意义。
对于一种具体的酶而言,其最适温度并不是一个固定值,而与酶作用 的时间长短有关。酶可以在较短的时间内耐受较高的温度,但是只有当酶 反应时间在被规定的情况下,才有最适温度。也就是说,即使是同一种酶, 如果反应的时间不同,其最适温度也不一样。一般来说,酶在干燥情况下 要比潮湿状态下更耐高温。这一点已被广泛用于指导酶的储藏保存。有些 酶的干粉剂可以在室温下放置一段时间,而其水溶液则必须在冰箱中保存; 制成冰冻干粉的酶制剂能放置数月,而未制成这种干粉的酶溶液在冰箱中 只能保存几天。
酶学与酶工程 (2)优秀课件

退出
(二)国际系统命名法
国际系统命名法原则是以酶的整体反应为基 础的,规定每种酶的名称应当明确标明酶的底物 及催化反应的性质。如果一种酶催化两个底物起 反应,应在它们系统名称中包括两个底物的名 称,并以“:”号将它们隔开。若底物之一是水 时,可将水略去不写。
ATP+D-葡萄糖 ADP+D-葡萄糖-6-磷酸 国际系统命名为: ATP:D-葡萄糖磷酸转移酶
退出
2. 酶与底物的结合模型
a. 锁和钥匙模型 b .诱导锲合模型
退出
a. 锁和钥匙模型
认为整个酶分子的天然构象是具有刚性结 构的,酶表面具有特定的形状。酶与底物的 结合如同一把钥匙对一把锁一样
退出
b .诱导锲合模型
该学说认为酶表面并没有一种与底物互补 的固定形状,而只是由于底物的诱导才形成 了互补形状.
专一性
活性部位
必需基团
催化基团 催化性质
维持酶的空间结构
退出
三.酶的作用机制
1. 酶的作用过程 2. 酶与底物的结合模型 3 .酶的催化作用
退出
1. 酶的作用过程
酶的活性部位:
是它结合底物和将底物转化为产物的区域,通常是整个 酶分子相当小的部分,它是由在线性多肽中可能相隔很 远的氨基酸残基形成的三维实体。
退出
(三)国际系统分类法及酶的编号
国际酶学委员会,根据各种酶所催化反应的类型, 把酶分为6大类,即氧化还原酶类、转移酶类、水解 酶类、裂合酶类、异构酶类和连接酶类。分别用1、2、 3、4、5、6来表示。再根据底物中被作用的基团或 键的特点将每一大类分为若干个亚类,每一个亚类又 按顺序编成1、2、3、4……等数字。每一个亚类可 再分为亚亚类,仍用1、2、3、4……编号。每一个 酶的分类编号由4个数字组成,数字间由“·”隔开,编 号之前冠以EC(Enzyme Commision)。
(二)国际系统命名法
国际系统命名法原则是以酶的整体反应为基 础的,规定每种酶的名称应当明确标明酶的底物 及催化反应的性质。如果一种酶催化两个底物起 反应,应在它们系统名称中包括两个底物的名 称,并以“:”号将它们隔开。若底物之一是水 时,可将水略去不写。
ATP+D-葡萄糖 ADP+D-葡萄糖-6-磷酸 国际系统命名为: ATP:D-葡萄糖磷酸转移酶
退出
2. 酶与底物的结合模型
a. 锁和钥匙模型 b .诱导锲合模型
退出
a. 锁和钥匙模型
认为整个酶分子的天然构象是具有刚性结 构的,酶表面具有特定的形状。酶与底物的 结合如同一把钥匙对一把锁一样
退出
b .诱导锲合模型
该学说认为酶表面并没有一种与底物互补 的固定形状,而只是由于底物的诱导才形成 了互补形状.
专一性
活性部位
必需基团
催化基团 催化性质
维持酶的空间结构
退出
三.酶的作用机制
1. 酶的作用过程 2. 酶与底物的结合模型 3 .酶的催化作用
退出
1. 酶的作用过程
酶的活性部位:
是它结合底物和将底物转化为产物的区域,通常是整个 酶分子相当小的部分,它是由在线性多肽中可能相隔很 远的氨基酸残基形成的三维实体。
退出
(三)国际系统分类法及酶的编号
国际酶学委员会,根据各种酶所催化反应的类型, 把酶分为6大类,即氧化还原酶类、转移酶类、水解 酶类、裂合酶类、异构酶类和连接酶类。分别用1、2、 3、4、5、6来表示。再根据底物中被作用的基团或 键的特点将每一大类分为若干个亚类,每一个亚类又 按顺序编成1、2、3、4……等数字。每一个亚类可 再分为亚亚类,仍用1、2、3、4……编号。每一个 酶的分类编号由4个数字组成,数字间由“·”隔开,编 号之前冠以EC(Enzyme Commision)。
《酶工程与蛋白质工程》PPT课件第2章 - 质量工程

Trp是trp合成途径的终产物,它过量积累对其 合成途径中5种酶生物合成起反馈阻遏作用
第二节 常用的产酶微生物
§所有细胞在一定条件下都能合成 多种多样的酶,并不是所有细胞 都能用于酶的生产,一般来说, 用于酶的生产的必须具备的5个条 件(提问)
§ 大肠杆菌—多种胞内酶 § 枯草杆菌—α -淀粉酶等 § 黑曲霉—多种胞外及胞内酶 § 米曲霉—糖化酶等 § 红曲霉—α -淀粉酶等 § 青霉—5’-磷酸二酯酶和脂肪酶等 § 木霉—纤维素霉等 § 根霉—糖化酶、 α -淀粉酶和脂肪酶等 § 毛霉—蛋白酶、糖化酶和α -淀粉酶等 § 啤酒酵母—转化酶等 § 假丝酵母—脂肪酶和尿酸酶等
酶生物合成的调节
§ 调节基因可以产生阻抑蛋白,它可以通过 与诱导物或阻遏物特异结合而改变其结构, 从而改变它与操纵序列的结合力。 § 当阻抑蛋白结合到操纵序列上时,阻止 RNA聚合酶通过操纵序列而进入到结构基 因位置,转录不能进行。 § 当阻抑蛋白改变结构而不与操纵序列结合 时,RNA聚合酶通过操纵序列,到达结构 基因位置进行转录,进而翻译成酶蛋白。
解决分解代谢物阻遏作用的方案
§在培养基中控制好容易利用的碳 源的量,或在容易利用的碳源过 剩时加进一定量的cAMP,均可 防止或解除分解代谢物阻遏作用。
2· 酶生物合成的诱导作用
3· 酶生物合成的反馈阻遏作用
§酶催化作用的产物或代谢途径的 末端产物使该酶的生物合成受阻。 §引起反馈阻遏的物质,称为共阻 遏物。
任何培养基都应该具备微生物生 长所需要五大营养要素 培养基(medium)是人工配制的,适合微 生物生长繁殖或产生代谢产物的营养物质 的混合物。
培养基几乎是一切对微生物进行研究和利 用工作的基础 五大要素:碳源、氮源、无机盐、生长 因子、水
02第二章酶精选文档PPT课件
护理学专业本科教材
8
生物化学
B族维生素
硫胺素(维生素B1) 硫辛酸 泛酸(维生素B3) 核黄素(维生素B2)
尼克酰胺(维生素PP )
吡哆素(维生素B6) 生物素(维生素B7) 叶酸(维生素B11) 钴胺素(维生素B12)
B族维生素及其辅酶(辅基)形式
辅酶或辅基
主要作用
硫胺素焦磷酸酯(TPP)
6, 8-二硫辛酸
辅酶A(CoA-SH)
黄素单核苷酸(FMN) 黄素腺嘌呤二核苷酸(FAD)
尼克酰胺腺嘌呤二核苷酸(NAD+) 尼克酰胺腺嘌呤二核苷酸磷酸(NADP+)
磷酸吡哆醛
生物素
四氢叶酸
5-甲基钴铵素 5-脱氧腺苷钴铵素
α-酮酸氧化脱羧、酮基转换作用 α-酮酸氧化脱羧 酰基转换作用 转移氢原子 转移氢原子
转移氢原子 转移氢原子
物。其中多种不同的催化功能存在于一条多肽链中,这类酶称为多功能酶(multifunctional enzyme)。
护理学专业本科教材
5
生物化学
一、酶的分子组成
单纯酶(simple enzyme):
单纯酶是仅由氨基酸残基构成的酶,是单纯蛋白质。
结合酶(conjugated enzyme):
由蛋白质和非蛋白质成分结合形成的酶称为结合酶,其中蛋白质部分称 为酶蛋白,非蛋白质部分称为辅助因子。酶蛋白与辅助因子结合形成的 复合物称为全酶,只有全酶才具有催化作用。
(二)酶的变构调节
变构酶(allosteric enzyme) 变构调节(allosteric regulation) 变构效应剂(allosteric effector)
变构激活剂(allosteric activator) 变构抑制剂(allosteric inhibitor)
酶工程PPT课件
(2)优点
条件温和,操作简便,分离范围广,回收率高,层析柱可反复 使用,无需再生处理,可分段分离。 (3)常用的凝胶 交联葡聚糖凝胶、聚丙烯酰胺凝胶
三 、 酶 的 生 产 及 分 离 纯 化
3.酶分离纯化的层析技术
2)离子交换层析——电荷性质的差异 它利用离子交换剂上可解离基团对各种离子的亲 和力不同而进行分离。 (1)基本原理 蛋白质是两性电解质,不同蛋白质由于其pI不同,
V=
Km
Vmax [S] Km + [S]
— 米氏常数 Vmax — 最大反应速度
米氏方程的推导:
假设: 1)忽略p的逆反应, 也即在初速度期间; 2)底物浓度远远大于 酶的浓度;
二 、 酶 作 用 原 理
3)反应处于稳态,即 中间产物生成和分解 的速度相等。
2、关于米-门方程的讨论 1)酶初速度和底物浓度的关系为一双曲线;
5、底物的浓度
三 、 酶 的 生 产 及 分 离 纯 化
(一)酶的生产
1.对酶源的要求
2.微生物作为酶的优势
3.对酶生产菌的要求 (二)酶的分离纯化 1.酶提取 2.酶分离纯化的沉淀技术 3.酶分离纯化的层析技术 4.酶分离纯化的电泳技术
三 、 酶 的 生 产 及 分 离 纯 化
(一)酶的生产
1.对酶源的要求 1)酶含量丰富 2)提取、纯化方便
(1)基本原理
空间排阻学说:PEG分子在溶液中形成网状 结构,与溶液中的蛋白质分子发生空间排挤作 用,从而使蛋白质分子凝聚而沉淀下来。 PEG沉淀蛋白质的过程遵循下列方程:
lg S f s x c
三 、 酶 的 生 产 及 分 离 纯 化
2.酶分离纯化的沉淀技术
(2)影响因素 a. 蛋白质的分子质量——大,沉降好