
外源目的基因表达与调控(1)
可编辑版
10
聚丙烯酰胺凝胶电泳(PAGE)的原理
聚丙烯酰胺凝胶的组成及特点
组成:主要由丙烯酰胺(Acr)和交联剂N,N’-甲叉(亚甲基)
双丙烯酰胺(Bis)聚合而成。
聚合:单独或混合时稳定,出现自由基团时会聚合。
化学法的引发剂:过硫酸铵(APS or AP), 催化剂:四甲基乙二胺(TEMED)
reacts with the substrate.
可编辑版
15
Western Blot操作的过程
• 蛋白样品的制 备
• SDS聚丙烯酰胺 凝胶电泳
转膜 封闭 一抗杂交 二抗杂交 底物显色
可编辑版
16
可编辑版
17
Gel electrophoresis
Tips: Separate proteins by gel electrophoresis
第四节 目的基因表达产物检测 与分离纯化
一、外源目的基因表达产物的检测
外源目的基因的表达包括转录和翻译两个阶 段。外源基因表达产物的检测过程就是对特异 性mRNA或蛋白质的检测。
特异性mRNA的检测: Northern杂交 特异性蛋白质的检测: ELISA, Western杂交
可编辑版
1
1.Northern 印迹杂交(Northern blot)
可编辑版
13
可编辑版
14
Western blot基本原理
A. Direct Detection
B. Indirect Detection
Figure 1A. In the direct detection method, labeled primary antibody binds to
antigen on the membrane and reacts with substrate, creating a detectable signal.
可编辑版
6
可编辑版
7
ELISA基本的实验过程
• 包被:将已知抗原或抗体通过物理吸附到固相载 体表面,使抗原或抗体固相化
• 抗原抗体反应:先后加入被检标本和酶结合物, 使之与固相抗原或抗体发生免疫反应而被结合固 定
• 酶促反应:在反应体系中加入酶作用的底物,使 发生酶促反应而显色
可编辑版
8
ELISA基本的实验过程
的量直接相关
可编辑版
4
ห้องสมุดไป่ตู้ ELISA原理图
②酶标记的抗原或抗体(标记物)
③酶作用的底物(显色剂)
可编辑版
①固相的抗原或抗体(免疫吸附剂)
5
ELISA可以分为直接法、间接法和夹心法等几种。
直接法:
直接法是指酶标抗原或抗体直接与包被在酶标板上的抗体或抗原 结合形成酶标抗原—抗体复合物,加入酶反应底物,测定产物的吸 光值,计算出包被在酶标上的抗体或抗原的量。见图a
检测RNA(主要是mRNA)的方法 与Southern杂交的区别
– 靶核酸:RNA – RNA电泳: 在变性条件下进行,以去除RNA中的
二级结构,保证RNA完全按分子大小分离。 变性电泳主要有3种:乙二醛变性电泳、甲醛变 性电泳和羟甲基汞变性电泳。 – 转膜:不需变性
可编辑版
2
2.ELISA
1971年瑞典学者 Engvall 和Perlmann, 荷兰学者Van Weeman和 Schuurs分别报道 将免疫技术发展为检测体液中微量物质的固 相免疫测定方法,称为酶联免疫吸附实验 (Enzyme-Linked ImmunoSorbent Assay, ELISA)。
间接法:
是将酶标记在二抗上,当抗体(一抗)和包被在酶标板的抗原结 合形成复合物后,再以酶标二抗和复合物结合,通过测定酶反应产 物的颜色可以(间接)反应一抗和抗原的结合情况,进而计算出抗 原或抗体的量。见图b
夹心法:
是先将未标记的抗体包被在酶标板上,用于捕获抗原,再用酶标 的抗体与抗原反应形成抗体-抗原-酶标抗体复合物;也可以象间接 法一样应用酶标二抗和抗体-抗原-抗体复合物结合,形成抗体-抗原抗体-酶标二抗复合物,见图C。前者称为直接夹心法,后者称为间 接夹心法。
1B. In the indirect detection method, unlabeled primary antibody binds to the
antigen. Then, a labeled secondary antibody binds to the primary antibody and
可编辑版
3
ELISA原理
• 使抗原或抗体结合到某种固相载体表面,并保持 其免疫活性
• 使抗原或抗体与某种酶连接成酶标抗原或抗体, 这种酶标抗原或抗体既保留其免疫活性,又保留 酶的活性
• 结合在固相载体上的酶量与标本中受检物质的量 成一定的比例。加入酶反应的底物后,底物被酶 催化变为有色产物,产物的量与标本中受检物质
可编辑版
12
Western Blot 基本原理
• 经过PAGE分离的蛋白质样品,转移到固相载体(例 如硝酸纤维素薄膜)上,固相载体以非共价键形式吸 附蛋白质,且能保持电泳分离的多肽类型及其生物学 活性不变。
• 以固相载体上的蛋白质或多肽作为抗原,与对应的抗 体起免疫反应,再与酶或同位素标记的第二抗体起反 应,经过底物显色或放射自显影以检测特定蛋白质的 表达情况。
特点:凝胶浓度越大,交联度越大,凝胶孔径越小。
故根据分离蛋白质的大小选择不同浓度的凝胶。
可编辑版
11
聚丙烯酰胺凝胶的特点
优点:聚丙烯酰胺凝胶电泳具有机械强度好、弹性大、
透明、化学稳定性高、无电渗作用、设备简单、 用样量少(1~100μg)和分辨率高等优点。
用途:蛋白质,核酸等物质的分离、定性和定量分析。
1-D gels
2-D gels
可编辑版
18
Transfer(Wet tank transfer system and Semi-dry transfer system)
可编辑版
19
Blocking and Detection
可编辑版
9
3. Western Blot
要检测一个基因的表达产物是否正确,或者比 较表达产物量的相对变化,首选方法是Western Blot。
Western blot 是生物学、生物化学、分子生物 学和免疫遗传学中常用的一种实验方法。
Western blot整个过程主要包括:PAGE电泳、 转膜及蛋白检测3个阶段。
真核细胞常见的表达载体及真核细胞表达外源基因的调控(精)

真核细胞常见表达载体1. pCMVp-NEO-BAN载体特点: 该真核细胞表达载体分子量为6600碱基对,主要由CMVp启动子、兔β-球蛋白基因内含子、聚腺嘌呤、氨青霉素抗性基因和抗neo基因以及pBR322骨架构成,在大多数真核细胞内都能高水平稳定地表达外源目的基因。
更重要的是,由于该真核细胞表达载体中抗neo基因存在,转染细胞后,用G418筛选,可建立稳定的、高表达目的基因的细胞株。
插入外源基因的克隆位点包括Sal1、BamH1和EcoR1位点。
注意在此载体中有二个EcoR1位点存在。
2. pEGFP, 增强型绦色荧光蛋白表达载体(Enhanced Fluorecent Protein Vector特点: pEGFP表达载体中含有绿色荧光蛋白,在PCMV启动子驱动下,在真核细胞中高水平表达。
载体骨架中的SV40 origin使该载体在任何表达SV40 T 抗原的真核细胞内进行复制。
Neo抗性盒由SV40早期启动子、Tn5的neomycin/kanamycin抗性基因以及HSV-TK基因的聚腺嘌呤信号组成,能应用G418筛选稳定转染的真核细胞株。
此外,载体中的pUC origin 能保证该载体在大肠杆菌中的复制,而位于此表达盒上游的细菌启动子能驱动kanamycin抗性基因在大肠杆菌中的表达。
用途: 该表达载体EGFP上游有Nde1、Eco47111和Age1克隆位点,将外源基因扦入这些位点,将合成外源基因和EGFP的融合基因。
借此可确定外源基因在细胞内的表达和/或组织中的定位。
亦可用于检测克隆的启动子活性(取代CMV启动子,Acet1-Nhe1。
Excitation maximum = 488 nm; Emission maximum = 507图示为启动子分泌信号肽和多克隆位点区域:Ase1.pCMV…ccg cta gcg cta ccg gtc gcc acc atg- .EGFP…BamH1…SV40 poly A+Nhe1 Age13. pEGFT-Actin, 增强型绿色荧光蛋白/人肌动蛋白表达载体特点: pEGFP-Actin表达载体中含有绿色荧光蛋白和人胞浆β-肌动蛋白基因,在PCMV启动子驱动下,在真核细胞中高水平表达。
基因表达调控(分组)

RNA聚合酶相互作用的蛋白质因子。其编码基因与作用的靶 DNA序列不在同一DNA分子上
(基因调节蛋白)
RNA聚合酶和 通用转录因子
(基因调节蛋白)
(二)反式作用因子 1. 转录调节因子分类(按功能特性)
* 通用转录因子(general transcription factors)
•
(《自然》(Nature))
发展历史
• 起于上世纪40-50年代,法国巴斯德研究院的Andre Lwoff等人 • 1950年 Monod等发现,在培养基中加入乳糖可启动E.coli的β-半乳 糖苷酶的从头合成,极大提高该酶活性 • 1961年, F.Jacob和J.monod 首先提出原核生物基因表达的操纵子 学说 • 1966年,Walter Gilbert和Benno Muller-Hill证明了阻遏蛋白的存在 • 1970年,Mark Ptashne和Gilbert详尽的阐述了基因阻遏机制 • 1975年,Roy Britten和Eric Davison在操纵子学说的基础上提出 了真核生物基因的表达调控模式 • 1981年,Charles Yanofsky等发现色氨酸操纵子的转录衰减与基 因特异性序列有关 • 很多原核、真核基因的顺式作用元件陆续被鉴定 • DNA-蛋白质相互作用分析成为基因表达调控的热门课题
Structure of the enhancer of SV40
增强子(enhancer):是使启动子的基因转录效率显着提高(增强转录
活性)的一类顺式作用元件,其本身不具有启动子活性,是由多个独
立的、具有特征性的核苷酸序列所组成。
RNA剪接信号 :内含子序列
28548基因工程课程考试说明
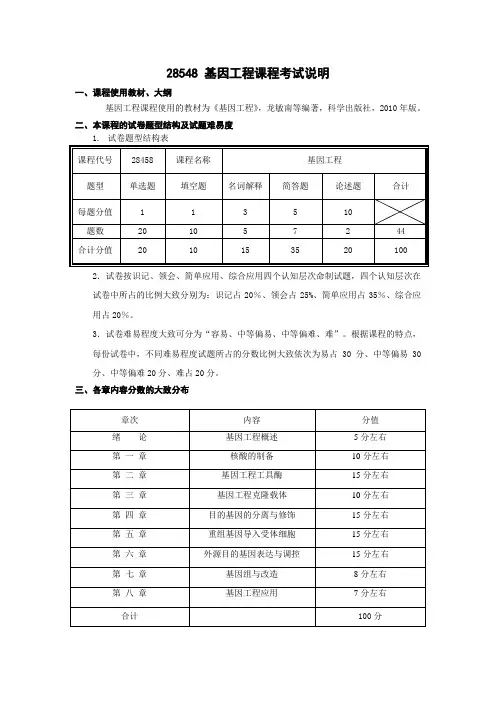
28548 基因工程课程考试说明一、课程使用教材、大纲基因工程课程使用的教材为《基因工程》,龙敏南等编著,科学出版社,2010年版。
二、本课程的试卷题型结构及试题难易度1.试卷题型结构表2.试卷按识记、领会、简单应用、综合应用四个认知层次命制试题,四个认知层次在试卷中所占的比例大致分别为:识记占20%、领会占25%、简单应用占35%、综合应用占20%。
3.试卷难易程度大致可分为“容易、中等偏易、中等偏难、难”。
根据课程的特点,每份试卷中,不同难易程度试题所占的分数比例大致依次为易占30分、中等偏易30分、中等偏难20分、难占20分。
三、各章内容分数的大致分布四、各章内容的重、难点五、各题型试题范例及解题要求1.单项选择题(每小题1分,共20分)解题要求:在下列每小题的四个备选答案中,选出一个正确答案,并将其字母标号填入题干的括号内。
范例:转化大肠杆菌的方法中,转化效率最高的是()A.Ca2+诱导大肠杆菌转化法B.电穿孔转化法C.三亲本杂交接合转化大肠杆菌D.转化效率相同解答:B2.填空题(每小题1分,共10分)解题要求:在下列每小题的空格中填入正确答案。
范例:DNA序列测定的方法主要有Sanger发明的DNA双脱氧链终止测序法和Maxam、Gilbert发明的两种。
解答:化学降解测序法3.名词解释(每小题3分,共15分)解题要求:直接写出相关术语的涵义,不要展开说明。
范例:亚克隆解答:将克隆片段进一步片段化后再次进行的克隆,(1分)一般将重组DNA分别用几种限制性核酸内切酶切割后,将所得各片段分别重组到载体上,再转化宿主细胞,通过对转化细胞的表型鉴定或其他方法来确定基因所在的位置。
(2分)4.简答题(每小题5分,共35分)解题要求:简要回答相关问题要点,不用阐述。
范例:简述噬菌体表面展示技术。
解答:将外源DNA片段插入丝状噬菌体基因组的一个外被蛋白基因中,如果两者读码框结构保持一致,这个外源DNA片段所编码的,并显示在噬菌体的表面。
第七章-外源基因的表达

2021/4/9
1
第一节 外源基因在原核细胞中的表达
1.原核生物基因表达的特点
与真核细胞相比,原核细胞的基因表达有以下特点: (1)原核生物只有一种RNA聚合酶(真核细胞有三种)识别 原核细胞的启动子,催化所有RNA的合成。 (2)原核生物的基因表达是以操纵子为单位的。 (3)由于原核生物无核膜,所以转录与翻译是偶联的,也是 连续进行的。 (4)原核基因一般不含有内含子,在原核细胞中缺乏真核细 胞的转录后加工系统。 2(0215/4)/9 原核生物基因的控制主要在转录水平,这种控制要比对 2
202菌中的表达部位
(1)不同表达部位
克隆在大肠杆菌中的外源基因,它们的编码产物蛋白质,有 的是在细胞质中表达,有的是在细胞周质中表达,还有的则是 以分泌到细胞外的方式表达。
■细胞质中表达
大肠杆菌细胞质中表达的外源蛋白,大多是以包含体的形式 存在的。包含体是存在于细胞质中的一种由不溶性蛋白质聚集 折叠而成的晶体结构。
(1)非融合型表达蛋白载体pKK223-3
➢具有一个强的tac(trp-lac)启动子,这个启动子是由trp启 动子的-35区、lac UV5启动子的-10区、操纵基因及S-D序列 组成。
➢紧接着tac启动子的是一个取自pUC8的多位点接头,使之很
2容021易/4/9把目的基因定位在启动子和S-D序列之后。
的基因,而不能用基因组DNA。 (3)必须利用原核细胞的强启动子和S-D序列等调控元件控 制外源基的表达。 (4)外源基因与表达载体连接后,必须形成正确的开放阅读 框架。 (5)利用宿主菌的调控系统,调节外源基因的表达,防止外 源基因的表达产物对宿主菌的伤害。
3.原核生物基因表达的调控序列
外源基因的表达
•Ⅱ型启动子
Ⅱ型启动子所属基因绝大多数编码蛋白质。
转录起始位点
TATA框(Hogness框):富含AT的保守序列区,它 启动子 与DNA双链的解链有关,并决定转录起始点的选择。 基本区 其中心点位于转录起始点上游-20~-30bp的位置。 CAAT框:位于转录起始位点上游-75bp处,与RNA 聚合酶的结合有关。 GC框:位于转录起始位点上游-100~-300bp处, 与转录因子的结合有关。
s factor:
6.2.1.4 启动子的分离
随机克隆法 聚合酶保护法 过滤膜结合法 PCR扩增法
6.2.2 增强子
增强子(enhancer):是能够增强启动子转录活性的DNA 顺式作用序列,又称强化子。 增强子的特性:
双向性。
重复序列。 增强子行使功能与所处的位置无关。
特异性。
增强子不仅与同源基因相连时有调控功能,与异 源基因相连时也有功能。
序列特异性
*启动子的特征 方向性 位置特性 种属特异性
6.2.1.1 原核生物的启动子
•转录起始位点:大多数细菌启动子转录起始区的序列为 CAT,转录从第二个碱基开始,该碱基为嘌呤碱基 (A/G)。 •Pribnow框: -10bp处的TATA区,又称-10序列区。 •Sextama框: -35bp处的TTGACA区,又称-35区。 •间隔区:内部无明显的保守性,其序列的碱基组成对启 动子的功能不十分重要,但其长度却是影响启动子功能的 重要因素。
6.1.3 外源基因mRNA的有效翻译
外源基因mRNA有效翻译必须考虑的基本原则:
AUG(ATG)是首选的起始密码子。
SD序列为与核糖体16S rRNA互补结合的位点,该序 列至少含有AGGAGG序列中的4个碱基。
6.目的基因的表达

IPTG
mRNA
Tac 表达系统
tac 启动子是由 trp 的 –35 序列和 lacUV5 的 –10 序列 拼接而成的杂合启动子。 拼接而成的杂合启动子。
启动子 P lac P trp P tac -35 区序列 TTTACA TTGACA TTGACA -10 区序列 TATAAT T TAA C T TATAAT
成一个操纵子 – 操纵子—原核生物转录单位
– 启动序列决定转录活性大小 – 操纵序列是阻遏蛋白的结合位点 • 负性调节 为主 • 正性调节 • 真核生物: 真核生物: • 顺式作用元件(cis-acting element)-顺式作用元件( ) 指可影响自身基因表达活性的DNA序列。 自身基因表达活性的 序列。 指可影响自身基因表达活性的 序列 – 非编码序列 – 启动子 – 调控元件 位于远端调控区的顺式作用元 调控元件: 增强子,沉默子 件(增强子 沉默子 增强子 沉默子)
发热量低、需氧低、 发热量低、需氧低、适当的发酵温 度和细胞形态; 度和细胞形态; 容易进行代谢调控; 容易进行代谢调控; 容易进行DNA重组技术操作; 容易进行DNA重组技术操作; DNA重组技术操作 产物的产量、产率高, 产物的产量、产率高, 产物容易提取纯化。 产物容易提取纯化。
宿主细胞分为两大类: 宿主细胞分为两大类: 第一类为原核细胞: 第一类为原核细胞:常用有大肠杆 菌、枯草芽胞杆菌、链霉菌等; 枯草芽胞杆菌、链霉菌等; 第二类为真核细胞:常用有酵母、 第二类为真核细胞:常用有酵母、 丝状真菌、哺乳动物细胞等。 丝状真菌、哺乳动物细胞等。
Lac 表达系统 负调节因子 lac I 表达系统:
在无诱导物情形下, lacI 基因产物形成四聚体阻遏蛋白, 与启动子下游的操纵基因紧密结合,阻止转录的起始。
解释基因表达的调控机制。
解释基因表达的调控机制。
> 原题:解释基因表达的调控机制基因表达调控是指在细胞中控制基因转录和翻译的过程。
通过调控基因表达,细胞可以根据内外环境的需求来合成所需的蛋白质。
基因表达调控涉及多个环节和分子机制。
一、转录调控1. 转录因子:转录因子是一类可以与DNA结合的蛋白质,它们能够促进或抑制特定基因的转录。
转录因子的结合位点通常位于基因的启动子区域,它们可以通过调控转录复合物的形成来影响RNA聚合酶的结合和启动转录的过程。
2. 染色质修饰:染色质修饰是指对DNA及其相关的蛋白质进行化学修饰,从而改变染色质结构和可访问性。
例如,DNA甲基化可以抑制某些基因的转录,而组蛋白乙酰化则可以促进基因的转录。
二、转录后调控1. RNA剪接:RNA剪接是一种将RNA前体分子中的内含子去除,将外显子连结起来的过程。
通过不同的剪接方式,可以产生不同的mRNA亚型,从而影响蛋白质的翻译。
2. mRNA降解:mRNA降解是指将mRNA分解为较小的碎片,从而停止蛋白质的合成。
通过调控mRNA的稳定性,可以控制基因的表达水平。
三、翻译调控1. 转运调控:通过调控mRNA的转运过程,可以控制mRNA的定位和稳定性。
这种调控方式可以影响基因的表达水平。
2. 蛋白质修饰:蛋白质修饰是指在翻译后对蛋白质进行化学修饰的过程。
蛋白质修饰可以影响蛋白质的功能、稳定性和亚细胞定位。
综上所述,基因表达调控涉及转录调控、转录后调控和翻译调控等多个层面和分子机制。
这些调控机制相互作用,共同影响基因的表达水平和细胞的功能。
对这些调控机制的深入研究,有助于我们更好地理解生物体的发育、生长和适应环境的能力。
第七八章-外源基因的表达及其优化策略20201112
略 稳定性 翻 译 的
培养基 环境因素对 受体菌生长 的影响
终止
诱导时间和
密码子
诱导剂量
的选择
第三节 外源基因在真核细胞中的表达
一 、真核生物基因表达与调控的特点
一 、真核生物基因表达与调控的特点
二 、真核生物基因表达载体的组成特征
基因组DNA的存在形式可影响基因表达 原核DNA序列
转录与翻译不偶联
启动子
调控是多层次的 具有组织和细胞类型特异性
增强子 终止子 内含子 选择标记基因,
对信号分子反应不同
PloyA加尾信号
第三节 外源基因在真核细胞中的表达
二、真核生物基因表达载体的组成特征
第三节 外源基因在真核细胞中的表达
根据启动子的功能和作用方式不同,真核基因的表达载体 的启动子可以分为几种类型,每一种类型的优缺点是什么? 三、真核表达的受体系统 按照宿主细胞的不同,常用外源基因的真核受体系统可大 致分为酵母、职务、昆虫和哺乳动物等受体系统。 每种受体的系统的特征如下表:
原核生物基因表达一般以操纵子为单位 启动子特征:作用要强;必须表现最低水平的基础转录活性;启动
子具有简便和廉价的可诱导性
原核生物只有一种RNA聚合酶,识别原 特征:SD序列与起始密码子的间距对翻译起始效率影响较大;
核生物的启动子,催化所有RNA的合成 mRNA-rRNA的互补区域越长,基因翻译的概率越大;SD序列与起始
第八章 外源基因表达产物的分离纯化
四 、合适分离纯化介质的选择 1 、分离纯化蛋白质的材料 理想的蛋白质分离纯化应具有以下几个方面的性质: 对目标蛋白具有较高的分离效率;在分离纯化过程中不 会造成目标蛋白的变性;化学性能和机械性能稳定,重 复性好;价格低廉,成本低。
实验 7 外源基因在大肠杆菌中的表达(或诱导表达)和检测 (1)
原核(大肠杆菌)表达系统
特点: 表达质粒独立运转表达 基因重组速度快,生产工艺简单, 成本低,表达量较高, 重组蛋白翻译后修饰较差。
1978年,人胰岛素insulin 基因首次表达 目前仍是一个重要的表达系统
应用:活性要求不高的蛋白质 如抗原制备
原核表达系统-E.coli:
transformation
The metal binding domain of the fusion peptide allows simple purification of recombinant proteins by Immobilized Metal Affinity Chromatography with Invitrogen’s ProBond. resin (available in bulk, see page v). The enterokinase cleavage recognition site in the fusion peptide located between the metal binding domain and the recombinant protein allows for subsequent removal of this N-terminal fusion peptide from thepurified recombinant protein.
OD600 = 0.4-0.6
37℃ overnight
IPTG
诱导表达4-6小时,time-course expression
SDS-PAGE分析
Invitrogen
T7 promoter: bases 20-39 Ribosome binding site: bases 84-90 6xHis tag: bases 112-129 T7 gene 10 leader: bases 133-162 Anti-XpressTM epitope: bases 169-192 Multiple cloning site: bases 202-248 pRSET reverse priming site: bases 295-314 T7 transcription terminator: bases 256-385 f1 origin: bases 456-911 bla promoter: bases 943-1047 Ampicillin (bla) resistance gene (ORF): bases 1042-1902 pUC origin: bases 916-2852 (C)
第十章外源基因表达和基因工程药物
(二)顺式作用原件(启动子、增强子和沉默子) 直接影响基因表达活性 (三)转录因子的调控 (四)真核生物在转录后仍可控制mRNA的结构和 功能,其在转录后层次不同于原核生物
目标蛋白性质
是否需要糖基化
三维结构复杂程度
是
否
简单结构
真核表达 系统
原核表达 系统
复杂的三维结构
• 目的:针对难以或无法从自然界直接提取、 分离、纯化所获得的,或制造成本、产量 规模等受限制的,或利用化学方法无法合 成的多肽,蛋白质、酶这类生物分子药物, 利用细胞或组织或器官或生命体的复制、 转录、翻译及其调控系统以及翻译后加工、 修饰等体系,按人的意愿生物合成这些生 物分子,并从中将表达产物分离纯化至预 期程度,最终加工成药品。
测序;表达图谱 4. 法医—犯罪现场标本分析 5. 肿瘤—各种肿瘤检测 6. 其他……
二、目的基因与表达载体的重组
• 重组载体的构建:对目的基因和载体DNA 进行剪切、修饰,在连接酶的作用下连接 形成完整有复制能力的重组体。
(一)载体
• 对于外源基因的表达,第二个问题就是选 择合适的表达载体并将目的基因重组至表 达载体上。
第十章外源基因表达与基 因工程药物
第一节 概 述
• 外源基因的表达:利用细胞内相关酶系及其调控 系统,将外源基因转录成肽链或加工成活性蛋白 质的过程。
• 具体的说,利用分子生物学技术,在体外将编码 外源蛋白质的基因重组至适宜的表达载体上,通 过相关技术将其导入宿主细胞内,借助宿主细胞 的转录、翻译或翻译后修饰酶系及相应的调控系 统,在宿主细胞合成或分泌具有原有生物活性的 蛋白质。
• 目的基因和载体DNA分子的体外重组关键 在于:选择合适的重组位点、剪切位点; 以及剪切后适当的条件将目的基因和载体 DNA分子连接获得重组分子。