
植物水涝胁迫研究进展
植物水涝胁迫研究进展摘要:本文概述了植物水涝胁迫的国外研究现状及进展,介绍了水涝胁迫对植物的主要危害,阐述了植物对耐涝的适应性机理,提出并讨论了在植物耐涝方面有待进一步探讨和研究的问题,以期为该领域的研究提供一定的参考。
关键词:水涝胁迫适应性机理研究进展按照Levitt的分类,水分胁迫包括干旱胁迫(水分亏缺)和水涝胁迫(洪涝)。
水涝胁迫对植物产生的伤害称为涝害。
涝害是世界上许多国家的重大灾害。
随着全球环境的不断恶化,生态系统严重破坏,全球气候异常加剧,雨量分布极不均衡,局部地区水灾不断,土壤淹水现象更是极为常见,世界各国都非常重视防涝抗洪、水土保持等问题的研究。
我国也是一个洪涝灾害比较严重的国家,大约有2/3国土面积存在不同程度的涝害,危害极大。
认识植物对水涝胁迫响应的机理,揭示其适应机制,从而合理地选择和定向培育耐涝性品种,减轻淹水对农业生产的危害,对于我国的农业生产具有重要的理论和现实意义。
一、水涝胁迫对植物的危害植物对水的需有一定限度的,水分过多或过少,同样对植物不利,水分亏缺产生旱害,抑制植物生长;土壤水分过多产生涝害,植物生长不好,甚至烂根死苗[1]。
涝害会影响植物的生长发育,尤其是旱生植物在水涝情况下其形态、生理都会受到严重影响,大部分维管植物在淹水环境中均表现出明显的伤害,甚至死亡。
但涝害对植物的危害主要原因不在于水自身,而是由于水分过多所诱导的次生胁迫而造成的。
1.水涝胁迫对植物细胞膜的影响当植物处于水涝状态时,细胞自由基的产生与清除之间的平衡遭到破坏,造成自由基的积累从而破坏膜的选择透性。
晏斌等研究后认为,在涝渍胁迫下玉米体正常的活性氧代平衡破坏,首先是SOD活性受抑制,导致O2-增生。
故认为叶片的涝渍伤害可能主要是过量O2-积累产生MDA,引起蛋白质、核酸分子发生交联反应和变性、破坏膜和生物大分子物质,加快了衰老速度[2]。
和平等以玉米为材料,研究淹水条件下叶片细胞超微结构的变化,发现首先液泡膜馅逐渐松驰,叶绿体向外突出一个泡状结构,随后进一步破坏解体,且叶绿体结果破坏在液泡膜出现破裂之前,其次是线粒体、细胞核解体。
后二者的破坏是淹水缺水造成还是细胞死亡过程中消化酶所致,尚须进一步研究。
2.涝害对植物物质代的影响(1)水涝对植物光合作用的影响土壤淹水后,不耐涝植物的光合速率迅速下降。
虽然在一定时间,甚至在较长时间淹水并不引起植株叶片水分亏缺,有时还会提高叶片的水势,但仍会很快引起气孔关闭,叶片CO2扩散的气孔阻力增加。
随淹水时间的延长,叶绿素含量下降,叶片早衰、脱落。
土壤淹水不仅降低光合速率,光合产物的运输也有所下降[3]。
渍水下净光合速率与产量的变化显着正相关,可作为耐涝性选择指标。
淹水下,植物光呼吸酶活性受影响,光呼吸加强.水分胁迫下光呼吸具有特殊的防止光抑制作用,通过CO2循环有效耗散过剩能量,从而保护植物在逆境下的光抑制。
(2)水涝对植物呼吸作用的影响涝害减少了植物组织与土壤间的气体交换,导致根部区域形成缺氧或厌氧环境,这是涝害各种反应中的主要决定因子。
由于土壤中的氧气迅速亏缺,引起土壤和厌氧微生物产生了许多对植物有害的物质,这些有害物质将随着淹水的不同程度影响着植物的正常生长和发育。
另外,植物体淹水缺氧,导致根部厌氧代产生的乙醇、乙醛等物质对细胞具有毒性,对蛋白质结构造成破坏;产生的乳酸及液泡H+外渗等原因会导致细胞质酸中毒;发酵还会使线粒体结构破坏,细胞能荷下降,细胞中氧自由基增加,保护酶如SOD,POD等活性下降,质膜透性剧增,导致细胞严重的厌氧伤害[4].(3)根际缺氧对矿质营养的影响缺氧条件下,植物对土壤中矿质元素的吸收大大减少,主要原因是在缺氧条件下植物只能利用无氧呼吸产生的能量,无氧呼吸产生能量比有氧呼吸少得很多,必然会降低根系细胞ATP的浓度,削弱了根系主动吸收矿质的能力。
在缺氧条件下,植物的蒸腾作用降低,蒸腾流流速减慢,矿质元素从根系运输到地上部分的数量减少;另外,缺氧条件下,土壤气体交换受阻,土壤中CO2浓度增大,氧气相对减少,好气性微生物数量减少,厌气性微生物增多,使土壤酸度增大,改变了土壤微环境,最后导致土壤矿质元素有效状况的改变,从而影响植物根系对有效矿质的吸收和积累。
由于氧气亏缺导致土壤氧化还原电势降低,使某些离子还原成更可溶更有毒的形式(如硫化物H2S,FeS)。
从而使细胞生理机能下降,从而引起根腐和木质化。
3.根际缺氧对植物激素的影响土壤淹水后改变了植物源激素的合成和运输,植株根GA和CTK合成受阻,加剧叶片衰老和脱落。
逆境条件下植物体乙烯含量增加。
一些研究者认为是缺水植物体氧分压降低,诱导根中ACC合成基因促进根中ACC的合成,ACC随蒸腾液流由根系向地上部分运输,地上部分的ACC在通气条件下转变为乙烯[5]。
近来已将乙烯在根系的合成更详细地研究清楚,在O2辐射进入根系组织的过程中,由于细胞壁的阻碍和代活跃皮层的存在,在根系组织中形成一种从根外层到根中柱部位低氧到缺氧的O2体积分数梯度,结果在缺氧中柱由不需要O2的ACC合成酶将ASM合成ACC,从中柱运ACC输到低氧皮层细胞,由需要O2的ACC氧化酶将ACC氧化成乙烯,再从根部运输到地上部分,促进茎的加粗、次生根的发育及叶片衰老脱落[6]。
另外,在缺氧条件下,植物地上部分ABA合成加强,减小了向根系运输的数量,地上部分ABA质量分数随之增大,并进一步抑制ABA向根部的运输。
同时缺氧也可能干扰赤霉素和细胞分裂素的合成。
二、植物对水涝胁迫的适应性机理1.植物耐涝的形态学适应(1)根系生长的表面化在水涝胁迫条件下,有些植物根系表层化并且变细,根毛增多,根系能减少氧气在细胞中扩散的阻力,又不会形成根中部细胞的缺氧,还可以增加根系表面积,有利氧的吸收;一些深根植物对缺氧的适应是根部细胞间形成大量通气间隙,便于氧气扩散,根系生长在深层土壤中,也可以获得氧气,同时,有些植物如玉米、小麦、向日葵等,在水表层的茎节处会长出不定根,不定根伸长区有发达的通气组织形成,使根部组织孔隙度大幅提高。
电镜细胞化学研究结果,不定根根尖细胞ATP酶的分布高于正常根[7]。
ATP酶活性上升,表明不定根根尖细胞具有较高细胞分裂能力和生理活性,根系氧气摄取和运输能力明显改善。
(2)形成根际通气组织。
诱发通气组织形成的原因是由于根系和微生物活动消耗氧气,根系的厌氧环境促进植物乙烯的生成和积累,覆盖根系的水又会通过降低乙烯的释放而加剧这种积累。
乙烯浓度增加促进纤维素酶的活性,在酶的作用下,根尖皮层组织中细胞分离或部分皮层细胞崩溃,形成通气组织。
可促进氧气扩散进根部,同时使根部的甲烷、H2S、CO2等气体排到体外,调节根际氧化势,排泄废气。
以往对植物耐涝形态学机理主要局限于根的研究,近年来国外一些学者逐步对植物地上部在淹水状态下发生的形态学变化也进行了研究。
目前,对植物淹水环境下形态学适应的相关研究仍较少,且局限于水稻、小麦等少数几种植物,因此,有待于进一步研究。
2.植物对淹水的代适应(1)涝害胁迫下植物代途径的改变有氧存在时植物不存在发酵途径,但在低氧时立即诱导出现,说明它们在植物适应低氧存活机制中起着重要作用。
植物受涝时,由于根部区域缺氧不能进行正常的有氧代,而为了维持正常的或至少是最低的生命活动,能量的供应也是必不可少的。
因此在厌氧条件下,细胞能量的供应主要依赖于无氧发酵途径产生ATP。
在受涝时,主要有三种活跃的发酵途径:乙醇发酵途径、乳酸发酵途径和植物特有的丙氨酸发酵途径。
但这三种途径是怎样又是在多大程度上对缺氧胁迫的耐性做出贡献以及它们之间是如何相互作用的仍不清楚。
在涝害胁迫时,除了发酵途径外,在有些植物中还存在磷酸戊糖途径和苹果酸代作为能量供应的补充,以减小发酵途径产生的乙醇、乳酸等有毒物质的毒害作用[8]。
厌氧条件下,参与糖酵解过程的酶也发生变化,厌氧诱导表达出一类正常状况下不表达的糖酵解酶[9]。
此外,有些湿地植物可能存在特殊的代,如使用PPi替代ATP作为高能磷酸的供体。
低氧锻炼的玉米,根尖存活时间以及胞质酸化与ATP含量无关,暗示PPi在起作用[10]。
(2)涝害胁迫下蛋白质的合成逆境下植物叶片游离脯氨酸累积,原因一是叶片组织多种酶活性降低,脯氨酸氧化受阻,造成游离脯氨酸积累;二是谷氨酸合成脯氨酸的速度增加。
脯氨酸可提高植物细胞原生质渗透压,防水分散失以及提高原生质胶体的稳定性,从而提高植物体抗性[11]。
植物抗逆性途径大多与蛋白质尤其是酶有关,在短时淹水逆境下,酶活性增强,但随时间延长这些酶的活性下降。
许多研究结果表明在涝渍胁迫条件下,植物体诱导合成了一些新的蛋白或酶类物质。
一些耐水涝胁迫的植物,如水稻和稻稗,在氧胁迫条件下糖酵解代酶类的活性明显被促进,例如乙醇发酵、糖酵解代、磷酸戊糖代酶活性被促进,甚至三羧酸循环在缺氧条件下也有一定活性,这样湿生植物就可以在代上适应水涝胁迫所造成的缺氧生境。
以玉米为材料在厌氧条件下的研究发现,玉米新合成两类蛋白:过渡多肽和厌氧多肽,并与糖酵解或糖代有关[12]。
目前已克隆了一些与植物抗涝性相关的基因,主要是编码厌氧胁迫蛋白的基因、SOD酶基因、植物血红蛋白等。
随着基因工程技术的完善,利用转基因技术培育抗涝性植物材料将成为未来抗涝性育种的重要手段。
目前,对于提高植物的耐涝性方面的研究仍然较少,有研究表明使用生长调节剂如PP333、BR-120、复合醇等及外源活性氧清除剂能有效缓解涝害,但在大田条件下,这些措施有一定的局限性。
目前迫切需要确定可靠、直观的生理指标,从涝害下植株形态结构及代适应性分子机制入手,寻找适宜的耐涝基因,通过转基因技术选育抗淹耐涝品种。
植物淹水胁迫对各生理特性的影响概述

植物淹水胁迫对各生理特性的影响概述作者:李航来源:《安徽农业科学》2014年第13期摘要在概述植物对淹水胁迫各种适应方式的基础上,重点从植物激素和各种酶的活性以及发酵途径、形态上的影响等方面,对近年来植物抗淹水胁迫适应性的研究进展作简要评述。
关键词植物;生理功能;抗逆性;耐淹性中图分类号 S184 文献标识码 A 文章编号 0517-6611(2014)13-03802-03Abstract On the basis of elaborating plants adaptation ways to waterlogging stress, from aspects of plant hormone, enzyme activity, fermentation way, morphology, the research progress of plants adaptation to waterterlogging stress was reviewed.Key words Plants; Physiological functions; Stress tolerance; Flooding resistance淹水胁迫是植物遭受的主要非生物胁迫之一。
它可以发生在江河漫滩、沼泽、湿地等各种生态系统中[1]。
很多植物都会受到淹水胁迫的影响[2],特别是低光环境会导致气体不能有效的扩散,使得气孔张开,光合作用速率下降,影响植物的形态,最终导致植物的死亡[3-4]。
植物对氧的吸收有一定的适应性[5],经过长期的适应和进化过程,可以使得氧在体内的扩散避免向外扩散,保证组织内的氧气水平,对植物的正常生理功能的维持有重要的作用[6]。
植物的形态和生理学特征等都会由于淹水作用出现多种变化,并有很多相关的研究,目前已迈入分子水平[7]。
不过,当下我国的生物技术研究以及抗逆性研究等都和世界先进水平有很大的差异,在抗涝性研究层次更明显。
水涝胁迫对植物形态解剖结构和生理生化的影响
涝害对植物激素平衡的改变
淹水胁迫将改变植物内源激素的合成和运输。土壤淹水后根内GA 和CTK 合成受阻,地上部ABA和乙烯合成增加,加剧叶片衰老和脱落。 逆境条件下植物体内乙烯含量增加,其产生原因是缺水植物体内氧 分压降低,诱导根中Acc 合成基因促进根中Acc 的合成。Acc 随蒸腾 液流由根系向地上部分运输,地上部分的Acc 在通气条件下转变为乙 烯[12]。乙烯促进茎的加粗、次生根的发育及叶片衰老
皮孔膨大的主要特征是胞间隙的增大,同时皮孔的增大也可以延伸到皮下层和韧 皮部,从而增大了植物对氧气的吸收和氧气向根的疏导能力(Schaffer,1992)。 因此膨大皮孔形成是植物耐涝的一种典型的特征。
2.通气组织的形成
通气组织(aerenchyma)是植物薄壁组织内一些气室或空腔 的集合。汤章城在1983年把通气组织分为溶生性通气组织 和裂生性通气组织。溶生性通气组织是由整个细胞崩溃形 成的细胞间隙;裂生性通气组织是由于细胞壁相互分离而 形成的细胞间隙。 通气组织的结构因物种而异,一些淹水的双子叶植物茎 基部细胞解体分离形成一种非常混乱的结。而一般的植物 茎基的中髓部,大规模的细胞自溶几乎使所有的中心细胞 消失,形成空心,气体运输受到的阻力减小到最小。(赵 可夫,2003) 同时研究发现,淹水条件下,通气组织的形成有助于氧气 向根系扩散,并有助于植物在淹
1.膨大皮孔的形成
淹水下,耐涝木本植物常在茎上形成膨大皮孔,Schaffer等在1992年研究发现淹 水胁迫后桃,苹果,梨,芒果,杨桃,伞房花越桔茎上均形成膨大皮孔。 曹福亮(1993)等对淹水胁迫下美洲黑杨的试验发现,淹水10一15d内出现膨大 的皮孔。 Larson在1991年研究发现,淹水胁迫下存活的芒果茎上有膨大皮孔,而淹水死亡 的树没有;当皮孔用蜡脂封闭时,淹水的芒果在三天内死亡。这充分证明膨大皮 孔的产生是植物对涝害的一种适应性反应。
植物抗涝性研究进展

植物抗涝性研究进展王丽;李瑞莲;周仲华;周文新;孙红梅;王峰【摘要】In this article,effects of waterlogging stress on growth and morphology,and physiology and biochemical changes of plants were summarized,the waterlogging tolerance mechanism of plants was discussed,and the research methods on waterlogging stress were sunnarized.Moreover,the existing problems on waterlogging stress researches of plants were described,and then the effective ways on improving the waterlogging resistance of plants were put forward,such as cloning waterlogging resistance genes by biotechnology,breeding new varieties with waterlogging resistance by transgenic technology and strengthening field management of plants,and so on.%综述了涝渍胁迫对植物的生长形态、生理生化变化等方面的影响,论述了植物抗涝的机制,总结了植物涝渍胁迫研究的方法,阐述了植物涝渍胁迫研究方面存在的问题,提出了利用生物技术克隆耐涝基因,通过转基因技术培育抗涝性植物新品种,同时加强植物的田间管理等提高植物抗涝性的途径.【期刊名称】《作物研究》【年(卷),期】2013(027)001【总页数】6页(P75-80)【关键词】值物;涝渍胁迫;抗涝性【作者】王丽;李瑞莲;周仲华;周文新;孙红梅;王峰【作者单位】湖南农业大学农学院,长沙410128;湖南农业大学农学院,长沙410128;湖南农业大学农学院,长沙410128;湖南农业大学农学院,长沙410128;吉首市农业局,湖南吉首416000;湖南农业大学农学院,长沙410128【正文语种】中文【中图分类】Q945.78在农业生产上,通常所说的涝渍包括两层含义。
淹涝胁迫对水稻影响的研究进展
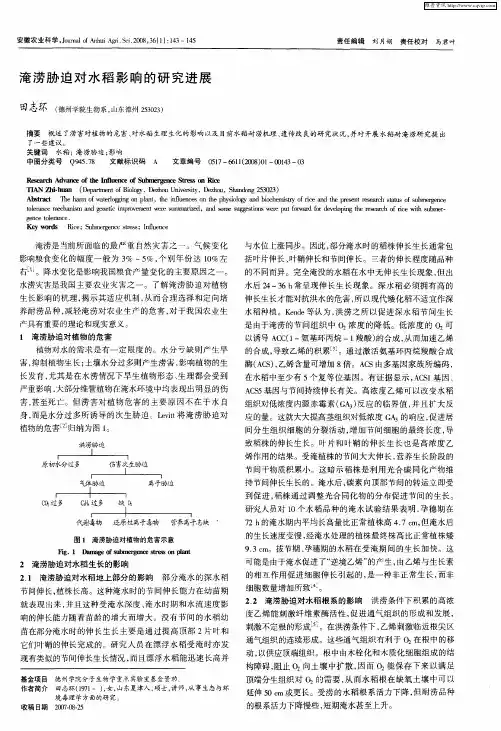
伸 长生长才能对抗洪水 的危害 , 以现 代矮化 稻不适 宜作深 所
水稻 种植。K ne等认为 , 涝之 所 以促 进深水 稻 节 间生长 ed 洪
是由于淹涝的节 问组织中 ( 浓度的降低。低浓度的 0 可 ) 2 )
以诱 导 A C 1 C ( 一氨基环丙烷 一1 羧酸 ) 的合成 , 从而加 速乙烯 的合成 , 导致 乙烯的积 累_ 。通 过激活 氨基环 丙烷羧 酸合成 3 J
摘要 概述 了涝害对植物 的危 害 、 对水稻 生理 生化 的影响 以及 目前水稻耐 涝机 理 、 遗传 改 良的研 究状 况 , 并对 开展 水稻 耐淹 涝研 究提 出
了一些建议 。 关键词 水稻 ;淹涝胁迫 ; 响 影 中 图分类号 Q 4 . 文 献标 识码 957 8
A
文章编号
Ab tat T ehr o trogn npl t h n u n e ntep yilg n ic e sr frc n h rsn e erh sau fsb re c sr c h am fwaelg ig o a ,te if e c so h h soo y ad boh mit o iea d tepee trsa c ttso u megn e n l y tlrn emeh ns a dg n t mp ern r u oea c c a im e ei i mv r twee smmai d,ad S F s geto swe u owadfrd v lpn sac frc t ut e — n c e rz e n OO u gsin r p tfr r o eeo igt r e rh o iewi s lr r  ̄ e hee h i gn etlrn e. e c oea c
水涝胁迫对植物的危害

水涝胁迫对植物的危害作者:魏永娜来源:《农村实用科技信息》2009年第08期水分胁迫包括干旱胁迫(水分亏缺)和水涝胁迫(洪涝)。
水涝胁迫对植物产生的伤害称为涝害。
植物对水的需求是有一定限度的,水分过多或过少,同样对植物不利,水分亏缺产生旱害,抑制植物生长;土壤水分过多产生涝害,植物生长不好,甚至烂根死苗。
涝害会影响植物的生长发育,尤其是旱生植物在水涝情况下其形态、生理都会受到严重影响,大部分维管植物在淹水环境中均表现出明显的伤害,甚至死亡。
但涝害对植物的危害主要原因不在于水自身,而是由于水分过多所诱导的次生胁迫而造成的。
一、水涝胁迫对植物细胞膜的影响当植物处于水涝状态时,细胞内自由基的产生与清除之间的平衡遭到破坏,造成自由基的积累从而破坏膜的选择透性。
在涝渍胁迫下玉米体内正常的活性氧代谢平衡破坏,首先是SOD活性受抑制,导致O2-增生。
故认为叶片的涝渍伤害可能主要是过量O2-积累产生MDA,引起蛋白质、核酸分子发生交联反应和变性、破坏膜和生物大分子物质,加快了衰老速度。
以玉米为材料,研究淹水条件下叶片细胞超微结构的变化,发现首先液泡膜内陷逐渐松驰,叶绿体向外突出一个泡状结构,随后进一步破坏解体,且叶绿体结果破坏在液泡膜出现破裂之前,其次是线粒体、细胞核解体。
后二者的破坏是淹水缺水造成还是细胞死亡过程中消化酶所致,尚须进一步研究。
二、涝害对植物物质代谢的影响1、水涝对植物光合作用的影响土壤淹水后,不耐涝植物的光合速率迅速下降。
虽然在一定时间内,甚至在较长时间内淹水并不引起植株叶片水分亏缺,有时还会提高叶片的水势,但仍会很快引起气孔关闭,叶片CO2扩散的气孔阻力增加。
随淹水时间的延长,叶绿素含量下降,叶片早衰、脱落。
土壤淹水不仅降低光合速率,光合产物的运输也有所下降。
淹水下,植物光呼吸酶活性受影响,光呼吸加强.水分胁迫下光呼吸具有特殊的防止光抑制作用,通过CO2循环有效耗散过剩能量,从而保护植物在逆境下的光抑制。
水分胁迫对植物生长发育的影响

水分胁迫对植物生长发育的影响水分胁迫是指植物在生长过程中遭受到的长期或短期缺水状态,它对植物的生长发育和生理代谢等方面都产生了重要的影响。
有研究表明,水分胁迫是目前世界上面临的一个最大的环境问题之一,它不仅直接影响到植物的生长和产量,还对农业和环境的可持续发展产生了极大的影响。
一、水分胁迫对植物的影响1. 生长受阻水分胁迫会影响植物的生长发育,使其受到一定的限制。
长期缺水会减缓植物生长速度,使植物的大小和体积减小,形成迟缓的生长状态;短期缺水则会对植物的生长状态造成临时的抑制,直接影响生长速度和生长周期。
缺水的植物无法进行正常的生长,因此缩短光合期和细胞分裂期,同时缩短植物的生长周期,减少植物的进行生物积累和光合合成,最终导致植物体的生长停止。
2. 细胞损伤水分胁迫会对植物的细胞产生一定的损伤,使细胞的结构和功能发生改变。
当植物缺少水分时,细胞内的水分就会逐渐减少,使细胞质变得更加浓缩,导致细胞膨压力下降,造成细胞膜的失衡。
这样,细胞内的细胞器和膜结构就会受到影响,导致细胞代谢的紊乱和细胞死亡的增加。
尤其是在干旱环境下,细胞膜可能会受到破坏,这会使细胞失去对水分的控制能力,进一步加重缺水的程度。
3. 光合作用受损光合作用对植物的生长和发育至关重要,而当植物遭受到水分胁迫时,光合作用就会受到影响,导致叶绿素含量下降、叶片黄化、光合速率降低以及叶片失去活力等。
这意味着,少量的水分胁迫就会导致植物的光合作用受到危害,最终导致植物的生长和发育出现巨大的障碍。
在长期的干旱环境中,植物局部或全部死亡,如果植物的开花期受到市场需求影响,则进一步威胁作物产量。
二、缓解植物水分胁迫的方法1. 控制灌溉量控制灌溉量是最基本的缓解植物水分胁迫的方法。
种植者可以根据水分状况及所种植的作物特性,科学地确定可行的灌溉量。
这种方法适用于旱区和干旱气候下的农业生产,以及干旱气候条件下的农业生产。
2. 提升土壤质量如果土壤的水分含量过低,植物的根系无法在地下获取必要的水分和营养物质,导致植物无法正常生长。
植物胁迫生理学中的干旱与盐碱胁迫研究
植物胁迫生理学中的干旱与盐碱胁迫研究植物是生命的载体,它们在大自然中占据着不可或缺的重要角色。
然而,随着气候变化和环境污染的不断加剧,植物面临着一系列的胁迫因子,其中最为严重的是干旱和盐碱胁迫。
因此,对于植物如何适应这些胁迫的生理机制的研究成为了当前植物学领域中一个重要的研究方向。
一、干旱胁迫研究干旱是植物面临的最为常见的胁迫因子之一,尤其是在干旱和半干旱地区,其影响非常严重。
植物在干旱条件下的适应能力主要是通过水分的利用效率来实现的。
干旱条件下的水分状况会引发植物的一系列反应,其主要是通过激素和信号传导调节某些胁迫响应基因来完成的。
干旱条件下的植物生理学改变主要包括根系生长和水分适应机制调节等方面。
比如,在干旱条件下,植物根系的生长会受到抑制,而水分利用会倾向于被改变,以增加利用水分的效率。
此外,干旱条件还会对植物细胞内的酶系统、膜的防御和其他适应机制造成影响。
对于干旱适应能力的提高,植物还可以通过启动自身的抗氧化能力来完成。
由于干旱会增加细胞内的氧反应性物质,而这些物质会损坏细胞分子,所以植物必须通过抗氧化酶活性增强抵御这些有害化合物的能力。
二、盐碱胁迫研究盐碱是植物生长中遇到的另一种常见胁迫因子。
盐碱胁迫会导致土壤盐分过高,从而使植物在碱性环境中生存和生长需要付出更高的代价。
盐碱胁迫还会引起植物细胞外溶液的改变,导致营养不能正常吸收。
如何在这种恶劣的环境中适应的植物生理学研究也成为了现代植物学中的一个规模庞大的领域。
植物在面对高盐环境时,会出现一系列适应措施。
例如,植物可以通过减少水分的流失来节约水分。
此外,植物还可以通过调节叶片的开口程度等重要的生理指标来排放盐分和碱性离子,同时增加叶片中营养的含量。
植物的内在适应性主要来自于根系和叶片之间的协调作用。
在盐碱条件下,细胞处于一种充满危险的平衡状态。
同时,植物会通过利用其自身的生长调节因子来对盐况进行响应,例如,植物体内的离子对称和水分状态的改变。
水分胁迫对植物生理生化研究进展
关 键 词 :植 物 ;水 分胁 迫 ;生理 生化
水是 植 物生 长 发 育 的 一个 重 要 环 境 因子 , 水 分 过多 或过 少 , 同样 对 植 物 生长 都 是 不 利 的。土
1 水 分 胁迫 下 的 气孔 运 动
干旱条 件下 植 物 气 孔 运 动 有 两 个 特 点[ ; 7 ① 叶 子 气 孔 关 闭 先 于 叶 子 萎 蔫 。在 叶 子 水 分 亏 缺 早
收 稿 日期 : 0 20 — 5 2 1 51
气孑 复合 体 而关 闭气孑 。许 多实验 证 实 了该 理论 L L
旱涝 灾 害是 人 类 当前 面 临 的重 大 自然 灾 害 。 据 统计 , 全球 每年 由旱 涝 所 造 成 的 损 失 约 占 自然 灾 害 的总损 失 的 6 以上 , 至 7 L , 中干 0 甚 0 】 其 ] 旱造 成 的损失 量超 过其 他逆 境造 成 的总 和[ 。而 2 ] 我 国是一 个 幅员辽 阔的 国家 , 区差 异较 大 , 北 地 南 降 雨 不 均 , 季 节 性 差 异 明 显 , 涝 灾 害 频 繁 发 且 旱
的维管 组织 构成 了一个 运输 速度 快 、 率高 、 效 阻力 小 的水链 系 统 。在这 一系统 中从 根到 叶 的水 势逐
旱胁 迫指 土壤 或大 气缺 乏对 植物 有效 的水 分供 应
而使 植物 遭受 损 害 ; 水 涝 胁 迫 主要 指 土 壤 水 分 而
超过 田问持水 量 , 致 氧 气 不 足 而使 植 物 遭 受 损 导
重影 响植 物 的正常 生长 发育 , 为此 , 现将 从植 物 水
涝渍对植物影响研究进展
致根系呼吸功能降低 , 使植物缺乏足够的 A P维持 T
生长 ;无 氧呼 吸在进行 过程 中不 能产 生植 物 中间代
害。 植物水淹后体 内的超氰化歧化酶 、 过氧化氢酶 、
过 氰化 物酶 常 发生 相 应 变化 ,只有 S D、P D 和 O O C T 者 的活性 协 调一 致 , 能使 自F基维 持在 一 A 才 } 1 个低 水平 。 植 株 在 涝渍胁 迫下 , 种过 氧化 物酶 活性都 呈
仍 高于对照 , 在处理 1 d 2 时又增加 , 显著高于对照 。 2 1 1 渗透调节物质 的变化 .. 植物为了适应各种逆境胁迫 ,细胞能主动积累 有机物质如脯氨酸 、可溶性糖及游离氨基酸 ,是植 物生理适应性渗透调节的一种表现 。大多数专家研
21 3 涝渍胁迫下植物膜脂过氧化作用与保护酶 ..
是人 类 所面 临 的最严 重 的 自然 灾害 之一 。水分 过多
对植物的伤害称涝害。广义的涝害包括两层含义: 旱 田作物在土壤水分过多达到饱和时 , 所受的影响
淹涝对根系造成了最直接的危害。在淹水胁迫 下植物根系生长受到抑制,根系活力下降,根的数 量显著减少 ,根尖变褐色,根系体积变小 ‘ 。 董合忠 指出淹水抑制棉苗主根仲长和侧根 ’ 等
外, 淹水会刺激不定根的产生 王文泉”等指 出芝 ‘ 。 。 0
麻不 同耐 渍基 因型幼苗 在受 到 9 6h厌氰处 理 后 , 地
下部表现为初生根数量 的减少和不定根 的增生 ,根
系 总量减 少 。
1 2 涝渍胁迫 对植物 叶 片的影 响 .
植物在涝渍胁迫下 ,叶片相对含水量减少 ,叶
钟雪花”等指出烟草在淹水胁迫时 ,叶子开始 酬 出现萎蔫 ,随着淹水时间的增加 ,叶片的萎蔫程度 加重 ,并且下部叶片开始泛黄 ,水淹 5d ,除 了 后 新叶以外 ,整个植株均呈现大面积萎蔫 ,叶片皱干 且普遍泛黄 ;而油菜在淹水 5d ,最下面的 2 后 片
植物对水分胁迫的响应及机理研究
植物对水分胁迫的响应及机理研究植物生长发育,离不开水分的供应。
然而,气候变化、人类活动等因素导致地球气候异常,不同时期各地区干旱程度和频率都不同,这给植物的生长带来了很大挑战。
从根处吸收水分,到运输、利用水分、最终释放,植物会产生出许多的响应。
本文将详细探讨植物对水分胁迫的响应及机理研究。
植物对干旱的响应植物自身具有适应性,在适应良好的条件下,以保证自身的生存。
当水分不足时,植物会迅速做出响应,调节植物的生理状态,以尽可能减轻水分缺乏对植物的影响。
1.根系发育植物对于缺水的识别是从根部开始的。
当生长在干旱地区时,植物的根系会表现出自适应性,产生深入地下的支配根系,以吸收更多的地下水。
同时,根毛会变得更长和更细,增加了与周围土壤接触面积,以便更好地吸收水分。
2.保持水分当植物面临水分缺乏时,植物会通过收缩根系和减少蒸腾,以尽量减少水分的流失。
同时,植物内部的组织结构也会发生变化,通常表现为肥大的细胞和更加紧密的细胞交界处,以防止水分的丧失。
3.调节水分利用率植物利用水的效率一般较低,一部分水分被浪费在蒸腾过程中。
在面临干旱的情况下,植物会通过调节水分利用率来尽量减少浪费。
植物会让叶片表面的气孔关闭,阻止水分蒸发,突出生长极。
植物对水分胁迫的机理研究过去,对植物水分胁迫机理的研究主要是从植物的水分吸收到蒸腾过程的角度来观察。
但是随着技术的进步和研究的深入,研究人员发现植物的水分胁迫研究涉及到许多领域,如遗传、分子生物学和土壤学等。
1.遗传与基因调控在过去的研究中,已经发现了一些抗旱基因,并且分析了它们的调控机制。
通过遗传学和分子生物学的手段,可以产生既耐受和敏感于水分胁迫的植株。
这些两者之间的对比有助于解决高效利用水分的机理问题。
2.激素调节激素在调节植物生长发育过程中起着重要的作用。
在水分胁迫的条件下,植物内部的生长激素水平发生了变化。
研究表明,ABA和水分相互作用,ABA能够刺激植物减少蒸腾率,保持水分。