
SRY基因及其性别决定
动物学报 47(专刊):241~246,2001A cta Zoologica S i nica SR Y 基因及其性别决定郭亚平① 贺艳萍① 张红梅② 马恩波①3(①山西大学生命科学系,太原030006)(②清华大学结构生物学实验室,北京100084)摘 要 对近十年来关于脊椎动物尤其是哺乳动物的SR Y 基因及其性别决定机制的研究进展作了简要的综述。
扼要阐述了哺乳动物的SR Y 基因的结构、转录、表达及其在性别决定中的作用模式及相关的基因家族。
关键词 SR Y 基因 性染色体 性别决定 SOX 基因3通讯作者 E 2mail :maenbo @ 第一作者简介 郭亚平,男,45岁,讲师。
研究方向:分子进化生物学。
性别决定是胚胎发育时期一个尚未分化的胚胎性腺确定发育为睾丸或卵巢的过程。
早在40年代,通过对兔子胚胎(生殖腺刚开始分化)去势实验的研究(Jost et al .,1973),确定了哺乳动物的性别决定和性别分化的概念。
他观察到所有的胚胎(无论是XX 或XY 核型)都有雌性内生殖脊而没有沃尔夫氏管的发育,所以得出结论:睾丸通过产生某种物质诱导沃尔夫氏管的发育,同时抑制穆勒氏管的发生。
这些早期研究表明卵巢对于穆勒氏管的分化并非必须。
因为去除未分化的哺乳动物胚胎的性腺导致雌性内生殖管道和外生殖器的发育,所以,性别决定等同于睾丸决定。
人类的睾丸产生所有表现雄性外部特征所必须的激素,谢尔托立氏细胞分泌抗穆勒氏管因子,抑制穆勒氏管的发生:来迪希氏细胞分泌睾酮,诱导沃尔夫氏管的发育及雄性生殖器管的形成。
哺乳动物的睾丸决定依赖于Y 染色体的存在,XO 型的小鼠和XO 型的人并不发育出睾丸组织,而XXY 型的人和小鼠也并不因为X 染色体数目多而发育为雌性,相反,它们有睾丸的发生。
这意味着Y 染色体的存在决定了睾丸的发生,从而也决定了其性别的分化。
分子水平的研究表明:在Y 染色体上某一位点基因的表达,直接诱发未分化的胚胎性腺发育为睾丸,胚胎发育为雄性。
这一位点的基因产物被称为睾丸决定因子,于人类命名为TDF (testis determining factor ),于小鼠命名为Tdy (testis determining gene )。
Sinclair 等(1990)利用染色体步移法,在Y 染色体上发现一新基因(Sinclair et al .,1990),同年在小鼠的Y 染色体上也发现类似基因(Gubbay et al .,1990)。
通过对此基因多方面的研究,认为它是TDF 的最佳候选基因(candidate gene ),并称为SR Y 基因(人)和SR Y 基因(小鼠)。
1 SR Y 基因作为TDF 的证据111 Southern Blotting 显示XY 型性别决定的真兽亚纲哺乳动物的Y 染色体上都有这一保守的SR Y 同源序列。
112 SR Y 基因的定位符合作为TDF 的要求。
SR Y 基因位于Y 染色体短臂距拟常染色体区界35kb 一个极小的范围内,与TDF 的位置相同。
即使是以XX 染色体为遗传背景,它的存在也足以使雌性个体发育为雄性,如转SR Y 基因雌性小鼠(XX )可发育为雄性小鼠(XX )(K oopman et al .,1991)。
113 SR Y 基因表达具有时间特异性和空间特异性。
小鼠SR Y 基因大约在交配后1115d (睾丸形成前的极短时间)在胚胎的尿生殖脊内低水平表达。
PCR 检测也表明SR Y 基因在1015d 前并不进行表达,在胎儿性腺发育阶段也不进行表达。
所以,SR Y 基因在性别决定中具有开关功能(K oop 2man et al .,1990),这与Tdy 预期的功能是一致的。
114 遗传学证据也表明SR Y 基因是TDF 的最佳候选基因。
一例XY 女性(Jager et al .,1990),她的Y 染色体正常,她的性反转是由于SR Y 基因HM G box 丢失四个核苷酸导致HM G box 阅读框移码突变,编码了无功能的蛋白质。
而这一例病人的父亲完全正常。
2 SR Y 基因的结构、定位、转录Hua Su 等采用逆向遗传学方法对该基因的结构、转录单位及其启动子进行了初步鉴定,他们通过对SR Y 基因的cDNA 序列和基因组序列的比较发现,SR Y 基因无内含子结构,转录单位全长约111kb 。
该基因有一多聚腺苷酸位点(AA TAAA )和两个转录起始位点,其间是一开读框架(ORF ),可编码204个氨基酸的蛋白,其中包含能与DNA 结合的HM G box 基因序列。
在基因的5′端和3′端的两侧分别是长达111kb 和1kb 的富含A T 区。
在SR Y 基因上游非翻译区以及富含GC 区内还有两个SR Y 蛋白质的结合位点SR Y 2CS +和SR Y 2CS 2。
Ltk 、TM4及Hela 细胞的转化实验研究提示:SR Y 基因的启动子序列位于SR Y 基因上游310bp 的富含GC 区内,核心启动子序列可能小于40bp (见图1)。
图1 SR Y 基因及侧翼序列图(鄢波等,1995)Fig.1 SR Y gene and it ’s wing 2sequences(Yan et al .,1995)Ⅰ,Ⅲ:5′,3′富含AT 区(5′,3′Region of abundant AT )Ⅱ:SR Y 基因结构编码区(Region of SR Y gene structure coding ) Δ:多聚腺苷酸位点[Site of poly (A )] A ,B :富含GC 区(Region of abundant GC ) SR Y 2CS 2,SR Y 2CS +:蛋白结合位点(site of protein 2bind ) →,→→:两个转录起始位点(Two sites of transcriptioninitiation )无论是小鼠的SR Y 基因还是人类的SR Y 基因都位于Y 染色体短臂上,小鼠的SR Y 基因处于一个至少17kb 的倒置重复序列内部,SR Y 基因两侧的碱基序列几乎是等同的(图2),而人类的SR Y 基因则位于距拟常染色体区界35kb 的区段内,两侧无倒置重复序列。
由于人类SR Y 基因的特殊位置,即紧靠X 染色体和Y 染色体发生配对、交换的拟常染色体区,所以人类比小鼠更易出现由于不正常的染色体互换而造成的性反转现象。
3 SR Y 基因的表达在大约1015d 期,小鼠胚胎的中肾部位长出一个隆起,即生殖脊,一直到大约1115d 期,无论是XX 核型还是XY 核型的小鼠胚胎,其生殖脊是没有差异的。
在1115~1215d 前,由于谢尔托立氏细胞的分化,雄性的生殖脊出现了睾丸核(K oopman ,1995)。
利用PCR 反应和原位杂交的方法检测到SR Y 基因的转录产物仅出现在生殖脊细胞的1015~1215d 期间,胚胎的其它任何部位都没有SR Y 基因的转录产物(K oopman et al .,1989)。
图2 小鼠SR Y 基因结构及定位(K oopm an ,1995)Fig.2 Structure and orientation of SR Y gene in Mouse(K oopm an ,1995)SA ,SD :接头受体,接头供体(Receptor of tie 2in ,Donator of tie 2in ) 右斜阴影区:倒置重复序列(Inversion repeat se 2quence ) :HM G box Ⅰ:单一序列区(218kb )[Regionof single sequence (218kb )]还发现纯合的We 基因突变的1115d 期鼠胚的尿生殖脊没有生殖细胞,然而,R T 2PCR 分析发现,它的SR Y 基因表达水平同对照组野生型的SR Y 基因表达水平是一致的(K oopman et al .,1989)。
此实验表明在小鼠的睾丸发育期间,SR Y 基因是由体细胞表达的。
因为谢尔托立氏细胞是新生睾丸中首先分化出来的细胞,所以设想SR Y 基因可能是在谢尔托立氏细胞期就开始表达。
XX 2XY 嵌合胚胎实验也有力地证实了这种想法,谢尔托立氏细胞产生的这些因子影响来迪希氏细胞的分化和进入雄性生殖细胞的有丝分裂(K oopman et al .,1989)。
SR Y 基因除在生殖脊中表达外,在成体睾丸中也表达,尽管SR Y 基因的表达在生殖脊中相对较弱,但它在成体睾丸中的表达是中等水平,而且通过Northern 杂交可检测到。
与生殖脊中SR Y 基因的表达相比,成体中SR Y 基因的表达需要生殖细胞的存在(K oopman et al .,1989)。
4 SR Y 蛋白411 SR Y 蛋白的功能区SR Y 蛋白最明显的特征是具有HM G box 区,它是DNA 与蛋白质结合的基元序列,SR Y 蛋白在体内与特异性DNA 序列相结合。
XY 型的女性是由于SR Y 蛋白的HM G box 区的点突变减弱了SR Y 与DNA 的结合能力,这些实验证明SR Y 蛋白与DNA 的结合对于SR Y 的雄性性别决定是必须242动 物 学 报47卷的(Burgoyne et al.,1988;Ferrari et al.,1992;G iese et al.,1992;Harley et al.,1992)。
对SR Y蛋白HM G box外的氨基酸序列进行比较,发现其种间的差异程度很大。
如人类的SR Y 蛋白共有205个氨基酸残基,其HM G box的N末端有58个氨基酸残基,但C末端有68个残基。
肌蛤属的SR Y蛋白在HM G box的N末端仅有两个氨基酸残基,但C末端有314个氨基酸残基。
可见,在种间基因组织方式是不同的,更重要的是人类、灵长类、老鼠、兔子、有袋类的SR Y基因其HM G box以外的氨基酸序列没有同源性(Sinclair et al.,1990;Gubbay et al.,1990;Harley et al., 1994;Foster et al.,1992)。
SR Y蛋白在非HM G box区累积的所有突变表明,在哺乳动物的进化中HM G box区是SR Y蛋白仅有的重要的功能区。
412 mSR Y和hSR Y的H MG box结合D NA性质的差异小鼠SR Y蛋白(mSR Y)和人类SR Y蛋白(hSR Y),它们的HM G box特异结合DNA时表现出不同的特征:(1)mSR Y与DNA结合的特异性明显大于hSR Y与DNA结合的特异性;(2)DNA 对两种蛋白的识别模式也是不同的,甲基化干扰分析和A T2GC碱基替代实验表明:hSR Y蛋白主要结合DNA的小沟,而mSR Y蛋白主要结合DNA 的大沟;(3)DNA的弯曲是以SR Y蛋白的弯曲为模板的,hSR Y蛋白和mSR Y蛋白诱导DNA的弯曲程度分别为85°和60°,这种弯曲程度上的不同可能是由于蛋白与DNA的亲和力以及与DNA的识别模式有所差异造成的(Whitfield et al., 1993)。
性别基因在性别决定中的作用

性别基因在性别决定中的作用每个人都有不同的性别,男人和女人之间的差别也就是我们称之为性别,但这个差别究竟是由什么因素决定的呢?在这个问题上,科学家们研究了数十年,他们发现,性别基因在性别决定中扮演了重要的角色。
性别基因是指决定个体性别的哪些基因。
在哺乳动物中,性别基因有两种类型:X染色体和Y染色体。
男性具有一个X染色体和一个Y染色体,而女性则具有两个X染色体。
另外,虽然有时候可以发生染色体异常,但是这种情况十分罕见,绝大多数人的性别基因都遵循这种规律。
在人类的性别决定中,Y染色体是关键。
如果一个人拥有Y染色体,那么他就是男性;如果没有Y染色体,则为女性。
这是因为Y染色体上有一个叫做SRY(性别决定区域)的基因,它是决定胎儿性别的重要基因。
SRY基因可以编码一种叫做TDF(性决定区域T的转录因子)的蛋白质,它能促进生殖系统的形成和生殖激素的分泌,进而促使男性生殖器官的发育。
不过,性别基因仅仅是性别决定的一部分,其他因素同样重要,比如性激素。
在胎儿时期,也就是性器官开始发育的时候,雌激素和雄激素也会起到重要的作用。
如果缺乏雄激素,即使有Y染色体也无法发育出男性生殖器官;反之,雄激素充足的女性也会出现胡须、声音变低等现象。
此外,个体自身的遗传背景以及外界环境都可能影响性别表达。
例如,一个人的基因可能会影响对性激素的反应程度,导致某些人比其他人更容易出现雄性化或雌性化的特征。
同时,在生长发育过程中,饮食、心理、社交等各方面也都可能影响性别特征的表达。
总而言之,性别基因对性别决定来说具有重要的作用,但这并不意味着性别就是完全由基因决定的。
性别是一个复杂的问题,需要从多个角度进行探究。
只有理解了多方面的因素,才能更好地认识性别、尊重性别、打破性别歧视,促进人类社会的进步。
Sry基因沉默对小鼠胚胎性别决定基因及性腺发育的影响的开题报告

Sry基因沉默对小鼠胚胎性别决定基因及性腺发育的影响的
开题报告
题目:Sry基因沉默对小鼠胚胎性别决定基因及性腺发育的影响
研究背景:
小鼠的性别决定是由Sry基因控制的。
Sry基因是Y染色体上的单一基因,它的表达是决定小鼠性别的重要因素。
在小鼠的胚胎发育过程中,Sry基因的表达在性别决定和生殖腺的发育中起着至关重要的作用。
在哺乳动物中,雄性和雌性个体的性腺和生殖能力存在明显不同。
因此,对于Sry基因的研究对于理解哺乳动物的性别决定与性腺发育具有重要的意义。
研究目的:
本研究旨在探讨Sry基因沉默对小鼠胚胎性别决定基因及性腺发育的影响,深入探究Sry基因在小鼠胚胎发育过程中的作用与机制,为后续的研究提供基础支持。
研究内容:
实验将采用RNA干扰技术沉默小鼠Sry基因。
通过对小鼠胚胎和性腺组织的取样、组织切片和染色体分析等手段,运用免疫组织化学等方法,检测小鼠中Sry基因的表达情况以及其对于小鼠胚胎性别决定基因及性腺发育的影响。
通过对实验数据的统计分析,建立Sry基因在小鼠性别决定及性腺发育中的作用模型。
研究意义:
此次研究将深入探究Sry基因在小鼠胚胎发育过程中的作用及其对性别决定基因以及性腺发育的影响,为深入理解哺乳动物生殖系统、解决相关临床问题提供科学依据。
此外,本实验采用RNA干扰技术沉默Sry基因,也为后续相关基因研究提供了新的思路和实验方法。
SRY基因在性别决定中的作用及例题分析
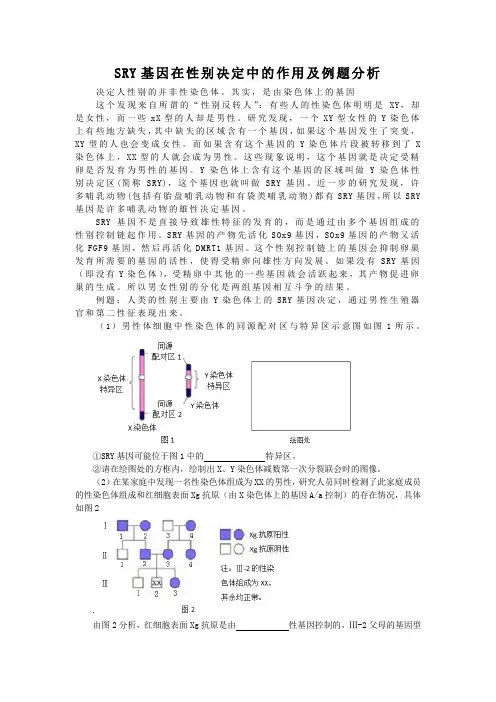
SRY基因在性别决定中的作用及例题分析决定人性别的并非性染色体。
其实,是由染色体上的基因这个发现来自所谓的“性别反转人”:有些人的性染色体明明是XY,却是女性,而一些xX型的人却是男性。
研究发现,一个XY型女性的Y染色体上有些地方缺失,其中缺失的区域含有一个基因,如果这个基因发生了突变,XY型的人也会变成女性。
而如果含有这个基因的Y染色体片段被转移到了X 染色体上,XX型的人就会成为男性。
这些现象说明,这个基因就是决定受精卵是否发育为男性的基因。
Y染色体上含有这个基因的区域叫做Y染色体性别决定区(简称SRY),这个基因也就叫做SRY基因。
近一步的研究发现,许多哺乳动物(包括有胎盘哺乳动物和有袋类哺乳动物)都有SRY基因,所以SRY 基因是许多哺乳动物的雄性决定基因。
SRY基因不是直接导致雄性特征的发育的,而是通过由多个基因组成的性别控制链起作用。
SRY基因的产物先活化SOx9基因,SOx9基因的产物又活化FGF9基因,然后再活化DMRT1基因。
这个性别控制链上的基因会抑制卵巢发育所需要的基因的活性,使得受精卵向雄性方向发展。
如果没有SRY基因(即没有Y染色体),受精卵中其他的一些基因就会活跃起来,其产物促进卵巢的生成。
所以男女性别的分化是两组基因相互斗争的结果。
例题:人类的性别主要由Y染色体上的SRY基因决定,通过男性生殖器官和第二性征表现出来。
(1)男性体细胞中性染色体的同源配对区与特异区示意图如图1所示。
①SRY基因可能位于图1中的特异区。
②请在绘图处的方框内,绘制出X、Y染色体减数第一次分裂联会时的图像。
(2)在某家庭中发现一名性染色体组成为XX的男性,研究人员同时检测了此家庭成员的性染色体组成和红细胞表面Xg抗原(由X染色体上的基因A/a控制)的存在情况,具体如图2.由图2分析,红细胞表面Xg抗原是由性基因控制的,Ⅲ-2父母的基因型是,图中Ⅲ-2的Xg抗原表现型与预期(填“相符”或“不相符”)。
鱼类分子生物学中的性别决定机制

鱼类分子生物学中的性别决定机制鱼类是一种非常特殊的生物,在其生命早期就需要决定其性别。
与哺乳动物和爬行动物不同,鱼类的性别决定机制更加灵活,可能受到环境和遗传因素的共同作用。
本文将详细介绍鱼类分子生物学中的性别决定机制。
一、鱼类性别决定基因的发现首先,我们需要知道鱼类的性别是由哪些基因决定的。
20世纪70年代以前,人们对鱼类性别决定机制的理解非常有限。
直到1972年,日本科学家Yasuo Nagahama和他的团队才首次发现了鲤鱼的性别决定基因。
这个基因被命名为sex-determining region Y(sry),是一个决定雄性性别的关键基因。
从此以后,人们开始运用基因工程和分子生物学技术在不同种类的鱼类中探索其性别决定机制。
通过对不同种类鱼类基因组的比较分析,人们发现鱼类性别决定基因形式多样,包括性染色体、单倍体基因、多倍体基因等。
二、鱼类性别决定基因的形式1. 性染色体性别决定许多鱼类的性别决定与哺乳动物和爬行动物类似,是由XY或ZW性染色体控制的。
在这种情况下,X或Z染色体是性别决定基因,从而决定了个体的性别。
例如,牛鱼的性别决定与人类的性别决定非常类似,都是由XY性染色体控制。
雌鱼有两个X染色体,而雄鱼则有一个X和一个Y染色体。
2. 单倍体基因性别决定在一些鱼类中,性别决定基因是由单个基因控制的,这类基因被称为性候选基因。
据统计,大多数这种鱼类的性别决定都与单倍体基因有关。
例如,日本鳞甲鲤就是一种由单倍体基因决定性别的鱼类。
日本鳞甲鲤的性别决定基因被命名为dmrt1,它能够控制个体的性别,并且还能控制生殖细胞的形成和发育。
3. 多倍体性别决定在鲈鱼等一些鱼类中,其性别决定机制被认为与多倍体基因有关。
这种性别决定形式在鱼类中比较罕见,但是它具有一定的普适性,能够解释鱼类性别决定中的一些奇异现象。
例如,鲈鱼的性别决定是由多倍体基因 cyp19a1b 控制的。
“cyp19a1b”基因编码酵素 aromatase,能够将雄性鱼体内的雄激素转化为雌激素。
哺乳动物(人)性别决定基因实验

哺乳动物(人)性别决定的基因分析实验一、实验原理哺乳动物的性别鉴定子生产生活中具有广阔的应用前景,特别是胚胎的早期性别鉴定;在基础研究方面也有重要作用,如动物细胞培养中的性别鉴定筛选。
1990年SRY(Sex determining Region Y )基因的发现是人类性别决定领域的重大突破。
SRY 基因,雄性的性别决定基因,指Y 染色体上具体决定生物雄性性别的基因片段。
人的SRY 基因位于Yp11.3,只含有一个外显子,没有内含子,转录单位长约1.1kb ,编码一个204氨基酸的蛋白质。
自Sinclairt J 从Y 短臂上的1A1区域分离出SRY 基因以来,已有大量证据表明SRY 在性别决定及分化过程中起着非常重要的作用,是人类睾丸决定因子(testis determining factor,TDF )的最佳候选基因。
2003年6月19日,佩基实验室和华盛顿大学基因测序中心的合作者们,发表了Y 染色体DNA 序列及其分析,其中很多有趣和重要的发现。
Y 染色体测序结果也许是迄今为止人类基因组测序中最有趣的。
我们知道一些遗传病与性别有一定的关系,例如Y 连锁遗传病中的外耳道多毛症,这种病只发生在男性身上,如能及时检测出SRY 基因则能很好的避免悲剧的发生,减少家庭及社会的负担,因此探索SRY 基因对医学、遗传学、优生学、动物育种学、法医学等领域的研究和应用具有重要意义。
二、实验材料带毛囊的头发三、器材与药品台式高速离心机、PCR 扩增仪、琼脂糖凝胶电源系统、凝胶成像系统、各种常规移液器、0.2mlEP 管。
第一次PCR 引物primer1(片段长度299bp ):上游引物(2701):5-CTA AGT ATC AGT GTG AAA CGG G-3下游引物(2002):5-ATT CTT CGG CAG CAT CTT CGC-3巢式PCR 引物primer2(片段长度252bp ):上游引物(2702):5-ACA GTA AAG GCA ACG TCC AGG-3下游引物(2001)5-CCT TCC GAC GAG GTC GAT AC-3PCRmix 、琼脂糖、EB 、TAE 、0.2M NaOH 、0.04M HCL 、DNAmarker 、dd OH 2四、实验步骤1、DNA 的准备1)2个Ep 管中分别加入20ul 0.2M NaOH 溶液。
sry基因序列

sry基因序列Sry基因序列是位于人体Y染色体上的一段基因序列,它在性别决定中起着重要的作用。
本文将介绍Sry基因序列的功能、结构以及与性别决定相关的研究进展。
一、Sry基因的功能Sry基因全称为Sex-determining Region Y gene,是决定胚胎性别的关键基因。
Sry基因的主要功能是在胚胎发育过程中促使胚胎发育为雄性。
它通过编码SRY蛋白来实现这一功能。
SRY蛋白是一种转录因子,可以影响其他基因的表达,从而调控性别分化的过程。
二、Sry基因的结构Sry基因位于Y染色体的短臂上,包含一个编码区和调控区。
编码区是指编码SRY蛋白的部分,调控区是指负责调控Sry基因的表达的部分。
编码区包括多个外显子和内含子,其中外显子1和外显子2是编码SRY蛋白所必需的部分。
调控区包括启动子、增强子和转录因子结合位点等。
三、Sry基因与性别决定的关系Sry基因在性别决定过程中起着核心作用。
在人类和许多其他哺乳动物中,只有XY型的个体才会表达Sry基因。
当Sry基因表达时,它会激活一系列与雄性发育相关的基因,从而导致胚胎发育为雄性。
相反,如果没有Sry基因的表达,胚胎会发育为雌性。
因此,Sry 基因的存在与否决定了胚胎的性别。
四、Sry基因的研究进展对Sry基因的研究有助于我们更好地理解性别决定的机制。
科学家通过对不同物种中Sry基因的比较研究,发现Sry基因在进化过程中高度保守。
此外,研究人员还发现Sry基因突变可能导致性别发育异常,如46,XY性别逆转综合征。
近年来,随着基因测序技术的不断发展,人们对Sry基因进行了更深入的研究。
研究人员发现Sry基因在性别决定过程中并不是唯一的关键基因,还有其他基因与之相互作用,共同调控性别分化。
这些研究为我们进一步了解性别决定提供了新的线索。
总结:Sry基因序列在人类和其他哺乳动物的性别决定中起着至关重要的作用。
它通过编码SRY蛋白来调控雄性发育的过程。
Sry基因的结构复杂,包含编码区和调控区。
SRY基因在性别鉴定中的应用
14
理想的遗传学材料应具备以下几个特征
• 所选物种最好是二倍体,染色体基数少。 所选物种最好是二倍体,染色体基数少。 • 具有较多可观察、测定的变异性状,相对性状 具有较多可观察、测定的变异性状, 之间差异明显。 之间差异明显。 • 交配可以控制,按实验目的自由选择亲本进行 交配可以控制, 交配。 对研究遗传规律有利。 交配。——对研究遗传规律有利。 对研究遗传规律有利 • 世代周期短。——获得实验结果的周期也短。 世代周期短。 获得实验结果的周期也短。 获得实验结果的周期也短 • 一次交配产生的子代个体多。——突变性状产 一次交配产生的子代个体多。 突变性状产 生的频率通常较低, 生的频率通常较低,子代群体大则增加了获得 这些突变性状的机会。 这些突变性状的机会。从一个大群体中获得的 结果更准确、可靠。 结果更准确、可靠。 • 6.易于管理。 6.易于管理 易于管理。
3
SRY基因(sexY) SRY基因(sex-related Y) 基因
• SRY基因(sex-related Y)是人类性别决定基因,定位于 SRY基因(sexY)是人类性别决定基因, 基因 只含有一个外显子,没有内含子, Yp11.3. 只含有一个外显子,没有内含子,转录单位长约 1.1kb,编码一个204氨基酸的蛋白质。 204氨基酸的蛋白质 1.1kb,编码一个204氨基酸的蛋白质。 • 该蛋白的功能是与DNA结合激活抗中肾旁管物质(MIS苗氏 该蛋白的功能是与DNA结合激活抗中肾旁管物质(MIS苗氏 DNA结合激活抗中肾旁管物质 管抑制物质)调节途径,导致MIS表达, MIS表达 管抑制物质)调节途径,导致MIS表达,使前身苗氏管退 女性生殖系统不能生成,生成睾酮, 化,女性生殖系统不能生成,生成睾酮,通过双氢睾酮作 使胚胎体內的男性的前身沃氏管( ducts) 用,使胚胎体內的男性的前身沃氏管(Wolffian ducts) 发育,生成男性生殖系统。 发育,生成男性生殖系统。
性染色体变异与性别决定相关基因互作关系分析
性染色体变异与性别决定相关基因互作关系分析性别是生物界中的一个重要特征,而性染色体变异与性别决定则是性别形成的关键过程之一。
在人类和其他许多物种中,性别决定通常与性染色体的组合有密切关系。
在人类中,性别决定由XY性染色体系统控制,而其他许多动物则具有不同的性染色体系统。
在此次文章中,我们将对性染色体变异与性别决定相关基因的互作关系进行深入分析。
首先,我们需要了解何谓性染色体变异。
性染色体变异是指与性别决定相关的染色体在不同个体间的差异。
在人类中,男性拥有一个X染色体和一个Y染色体(XY),而女性则拥有两个X染色体(XX)。
这种染色体组合使得Y染色体成为性别决定的关键,其中的几个关键基因在性别形成过程中发挥重要作用。
性别决定过程涉及到多个基因的互作。
其中最为重要的基因是Y染色体上的SRY基因。
SRY基因编码了睾丸特定蛋白(testis-determining factor, TDF),该蛋白在胎儿发育过程中促使生殖腺发育为睾丸。
SRY基因的存在将胚胎发展方向定向为男性。
SRY基因的作用是启动一系列与性别决定相关的基因表达,进而调控性腺的发育和性激素产生。
此外,X染色体在性别决定过程中也发挥重要作用。
在XX个体中,X染色体上的一些基因通过逃逸不全(escape from inactivation)的方式躲避X染色体的不活化。
这些基因对性别特征的发展和维持起到重要作用。
例如,X染色体上的FOXL2基因是控制女性性发育和维持的关键基因。
它在卵巢发育和卵泡发育中发挥重要作用。
这些基因的存在使得XX个体发展为女性。
除了SRY和FOXL2之外,性染色体上还存在其他与性别决定相关的基因。
一些互补基因(complemental genes)也参与性别决定过程,通过相互作用来调控性别发展。
这些基因间的相互作用非常复杂,牵涉到多个信号通路,如细胞信号传导、基因表达调控等。
以性染色体变异为例,X染色体的变异可能通过其某些基因的表达调控对性别决定的影响。
生殖细胞发育和性别决定的分子机制
生殖细胞发育和性别决定的分子机制随着现代科学技术的发展,越来越多的科学家开始探索人类生殖细胞发育和性别决定的分子机制。
这一领域的研究涉及到生命的创造和延续,对人类社会发展和人类学科的进步都具有重要意义。
生殖细胞发育是指从精原细胞到成熟的精子或卵子的过程。
在这个过程中,生殖细胞经历了不同的阶段,包括分裂、减数分裂和成熟等阶段。
在这个过程中,一系列基因调控和分子信号传递机制起着关键作用。
性别决定是指人类的性别在受精卵形成时被决定的过程。
在正常情况下,人类有两种性别,男性和女性。
不同性别的人类有不同的染色体组成,其中男性有XY染色体,而女性有XX染色体。
性别决定的分子机制涉及到两种主要的性别决定基因区域,即SRY和WNT4/RSPO1区域。
这两个区域的基因编码了一系列关键性的转录因子和信号分子,控制生殖系统的分化和性腺的发育。
在精原细胞的发育过程中,SRY基因的表达控制了睾丸的发育。
SRY编码了一个转录因子,被认为是在干细胞中启动睾丸发育的关键转录因子。
SRY基因位于Y染色体上,因此只有男性才会表达该基因。
SRY蛋白通过激活其他转录因子和信号分子的表达,促进睾丸的形成和男性生殖系统的发育。
与SRY基因相反,在WNT4/RSPO1区域中编码的基因则控制了女性生殖系统的发育。
WNT4和RSPO1都是Wnt信号通路激活的调节因子,并且在胚胎早期启动。
这些因子的表达促进了女性性腺的发育和维持,阻止了男性生殖系统的发育。
因此,WNT4/RSPO1区域的基因对于控制性别决定和生殖细胞发育至关重要。
除了SRY和WNT4/RSPO1基因区域以外,还有很多其他基因和信号分子参与了生殖细胞发育和性别决定。
这些基因和分子对于生殖和生育健康都有重要的影响,而对于性别和性别特征的控制则起着关键的作用。
总之,生殖细胞发育和性别决定的分子机制是一个极其复杂的领域,需要不断的研究和深入探索。
这一领域的进展不仅能够促进对人类健康的保护和改善,还能够为整个人类社会带来更大的进步和发展。
SRY基因在性别鉴定中的应用
• 磁珠法提取DNA试剂盒
• 磁珠法核酸纯化技术采用了纳米级磁珠微珠,这 种磁珠微珠的表面标记了一种官能团,能同核酸 发生吸附反应。
• 快速简捷,一般可在36分钟内完成。 • ·不用多次漂洗磁珠也可确保高纯度,提取出的基
因组DNA OD260/OD280典型的比值达1.7-1.9, • 长度可达2 0 k b - 5 0 k b,可直接用于P C R、
S及在性别鉴定中的应用
2
二、实验原理
性别的发育起始于胚胎第6周, 胚胎的初期是属于中 性的。 所有的早期胚胎內都存在着两种性腺,外胚胎内存在 两套导管,
发育成女性的前身苗氏管(Müllerian ducts) 发育成男性的前身沃氏管(Wolffian ducts)
• 6.重复步骤5,室温开盖干燥15min至管内 无残液。
• 7.加入15-25µl TE Buffer, 65 ℃水浴20min, 间或混匀,离心2min,
• 8.将离心管置于磁力架上1min,待 Magicmag beads完全吸至管壁上之后,吸 取上清至新的离心管,即获得jiyinzuDNA.
• 如使用牙签刮取口腔上皮细胞,应注意沾过NaOH溶液的牙签 不能再放回口腔,以免烧伤。
• (3)加入50μl的0.04 mol/L HCl中和。 • (4)12000 r/min 离心5min去除未溶解的沉淀物,上清转入1
个新管,DNA就在水溶液中。
• 2、PCR反应 • (1)扩增人的SRY基因,所用引物为: • SRY1: 5’-TGG GAC TGG TGA CAA
TTG TC-3'
• SRY2:5’-GAG TAC AGG TGT GCA GCT CT-3'
• (2)每个样品反应体系为25μl。