
分子动力学模拟研究脂肪酶的催化机理
四、结果与讨论
1、CALB总体构象变化
在所有溶液中,模拟体系均很快的到达平衡状 态
CALB骨架原子与初始结构骨架原子的RMSD 在所有有机溶剂中变化都不大,在趋势CALB 骨架原子与初始结构骨架原子的RMSD的值 随着溶剂极性的增加而减小
通过求解所有粒子的运动方程,分子动力学方 法可以用于模拟与原子运动路径相关的基本过 程;
能得到原子的运动轨迹,还能象做实验一样作各 种观察;
分子动力学方法是确定性方法,一旦初始构型 和速度确定了,分子随时间所产生的运动轨迹 也就确定了。
动力学程序:
做生物大分子模拟认可度比较高的动力学程 序GROMACS,AMBER,CHARMM。
CALB中的Arg,Lys,AsP,HisandGlu两性残基的电离状 态取PH=7时的电离状态
2、溶剂模型的参数化
分子动力学模拟所用到的甲醇(MET),丙酮(ACE),四氢 吠喃(THF),氯仿(CHCL3),环戊烷(CPT),正己烷(HEX) 溶剂模型按以下方法进行参数化:
溶剂分子的空间参数通过GauSSian98软件在HF/6一 31G*水平上在真空状态下优化计算得到
RMSD:CALB骨架原子位置与初始结构骨架原子的位置 最小算数平方根
CALB
2、CALB中二级结构的改变
二 级 结 构 的 保 留 率
与初始结构相比,CALB中大约90%的β-Sheet结构保存 完好,而且β-Sheet结构在有机极性溶剂和非有机极性 溶剂中的变化没有明显的区别;
而α-helix结构随着溶剂极性的降低而减少
3、亲、疏水表面面积的改变
与初始结构相比,在极性有机溶剂中CALB的 亲水面积降低了大约200一600平方埃,疏水面 积增加了大约400平方埃;
在非极性有机溶剂A 中0 CALB的亲水面积降低了 大约900一1200平方埃,疏水面积增加了大约 500一700平方埃;
不同类型的脂肪酶具有非常相似的立体结构
脂肪酶的氨基酸顺序可能有较大的差别,但却 具有相似的折叠方式和活性中心。
脂肪酶的结构特点:
同源区段:His-x-y-Gly-Z-Ser-W-Gly或Y-GlyHis-Ser-W-Gly(X,Y,W,Z是可变的氨基酸残疾 )
活性中心是丝氨酸残基,正常情况下受1个a螺旋盖保护
溶剂分子的电荷通过使用AMBER10软件包中的 RESP程序对溶剂分子的电势能进行拟合得到
பைடு நூலகம்
3、分子动力学模拟
首先对酶溶剂体系进行能量优化(500 steepest descent算法优化然后500步conjugate gradient算法 优化)
将酶溶剂体系在20ps内缓慢的从0K升温至300K,在整 个升温过程中CALB中的所有以原子通过使用谐振势 能进行位置限定
2i1
m pi2i N i11jNi1U(rij)
pi mi ddritmivi
d d pi tN i 1 1j N i1 F (ri)j N i 1 1j N i1U r (irij)j
r r(0) 初始条件: i t0 i
dri dt
t0
vi (0)
分子动力学方法特征:
在分子体系的不同状态构成的系综中抽取样本, 从而计算体系的构型积分,并以构型积分的结果 为基础进一步计算体系的热力学量和其他宏观 性质;
将升温后的酶溶剂体系在300K,1个标准大气压下进 行完全分子动力学模拟,模拟中所用的时间间隔为lfs, 模拟总时长为5ns
4、QM/MM模拟
构建了CALB的四面体结构来近似的代替CALB的过 度态
在300K 1 个标准大气压下进行20Ps的QM/MM模拟 在QM/MM模拟过程中SER105,ASP187,HIS224,底
放线菌4个属 酵母菌10个属 其他真菌23个属
食品工业 制药 制备化工产品和试剂 造纸工业 工具酶 生物柴油 生物传感器
二、分子动力学模拟
粒子的运动取决于经典力学( 牛顿定律(F=ma)
分子动力学方法基础:
原理:
计算一组分子的相空间轨道,其中每个分子各自服从 牛顿运动定律:
H1N
目录
脂肪酶的概述 分子动力学模拟的简介 脂肪酶催化机理的研究 结果和讨论
一、脂肪酶的概述
定义:
脂肪酶(Lipase)又称甘油酯水解酶,是 指分解或合成高级脂肪酸和丙三醇形成的 甘油三酯酯键的酶。
脂肪酶的结构特点:
脂肪酶基本组成单位仅为氨基酸,通常只有 一条多肽链。它的催化活性仅仅决定于它的 蛋白质结构。
在底物(如醇、酸或酷等)存在的情况下,酶的 构象发生变化,脂肪酶与油/水界面的缔合作 用使得“盖子”打开,含有活性部位的疏水部 分就暴露出来
脂肪酶催化的反应:
脂肪酶的来源及用途:
脂肪酶广泛存在于动物植物和微生物中。 植物中含脂肪酸较多的是油料作物的种子,当油
料种子发芽时,脂肪酶能与其他的酶协同发挥作 用催化分解油脂类物质生成糖类,提供种子生根 发芽所必须的养料和能量; 细菌,真菌和酵母中的脂肪酶含量更为丰富。 微生物脂肪酶:细菌28个属
GROMCS是由GroningenUniversity开发的用 于研究生物分子体系的分子动力学程序包 特点:
可以用分子动力学、随机动力学或者路径积分方 法模拟溶液或晶体中的任意分子,进行分子能 量的最小化,分析构象等
Amber的简介:
Amber是著名的分子动力学软件,用于蛋白质、核酸、 糖等生物大分子的计算模拟。Amber也指一种经验力 场(empirical force fields)。 力场和代码是分开的, 一些软件中包含amber力场, 而其他的力场也包含在 此amber的软件中。
AMBER提供两部分内容:用于模拟生物分子的一组 分子力学力场(无版权限制,也用于其它一些模拟程 序中);分子模拟程序软件包,包含源代码和演示 (有版权限制,需要购买)
实验部分:
1、酶的预处理
南极甲丝酵母脂肪酶B(CALB)晶体中的两个糖分 子(NAG)由于远离CALB活性中心区域在进行分子动 力学模拟前去除,CALB晶体中的92个水分子具有维护 脂肪酶构象稳定的作用予以保留
脂肪酶作用机制

脂肪酶是一种水解酶,主要作用于脂肪和甘油三酯,将其分解为甘油和脂肪酸。
其作用机制可以从以下几个方面进行阐述:
1.底物识别与结合:脂肪酶首先通过其活性位点与
底物——脂肪或甘油三酯结合。
由于脂肪和甘油三酯不溶于水,脂肪酶具有一个亲水-疏水双亲结构,活性位点位于疏水口袋内,有利于与脂肪分子的疏水尾部接触并结合。
2.催化水解过程:当脂肪酶与甘油三酯紧密结合后,酶的活性中心,通常包含一个或多个关键氨基酸残基(如丝氨酸、天冬氨酸等),会与底物分子发生作用。
在这个过程中,丝氨酸残基通过其羟基(-OH)作为亲核试剂攻击甘油三
酯的酯键,促使酯键断裂,释放出脂肪酸和甘油-酯中间体。
3.产物释放与再生:断裂后的脂肪酸由于其疏水性
较强,离开酶的活性中心并与水相混溶,从而被释放出去。
接着,酶的活性中心再次准备好进行下一个催化循环。
4.立体选择性与特异性:不同来源和类型的脂肪酶
具有不同的立体选择性和底物特异性,可以优先水解特定位置的酯键,或是对不同链长的脂肪酸表现出不同的水解速率。
简而言之,脂肪酶通过识别、结合并催化底物分子的酯键水解,实现了将脂肪和甘油三酯分解成水溶性成分的过程,这对生物体的脂肪消化、能量代谢、脂质信号传导以及工业应用中的油脂改性等方面都具有重要意义。
酶催化反应的动力学研究
酶催化反应的动力学研究酶催化反应是一种在生物体内广泛存在的反应方式。
这种反应的特点是速率快,且不需要很高的温度。
这些特点使得酶催化反应成为生物体内许多代谢过程所必须的反应方式。
然而,尽管酶催化反应在生物体内具有如此重要的地位,但我们对酶反应的动力学特性却仍知之甚少。
因此,研究酶催化反应的动力学特性显得尤为重要。
酶催化反应的速率与底物浓度有着密切的关系。
一般来说,当底物浓度较低时,反应速率会随着底物浓度的增加而增加。
但是,当底物浓度较高时,反应速率达到了一个峰值,然后开始下降。
这种现象被称为酶催化反应的饱和现象。
为了研究酶反应动力学特性,我们需要了解酶的两个重要参数:酶的最大反应速率(Vmax)和酶的米氏常数(Km)。
酶的最大反应速率是指酶在完全饱和底物的情况下所能达到的最快反应速率。
一般来说,当底物浓度足够高时,反应速率会达到最大值。
这个最大值就是酶的最大反应速率。
酶的米氏常数是指当酶的反应速率达到最大值时,底物浓度所处的浓度范围。
在这个浓度范围内,底物浓度的变化对反应速率的影响非常大。
如果底物浓度太低,那么酶的反应速率就会非常低;而如果底物浓度太高,酶的反应速率也会降低。
米氏常数就是描述这个浓度范围的一个参数。
在酶催化反应的动力学研究中,还需要引入一个重要的概念:酶的催化效率。
酶的催化效率是指在特定的底物浓度下,酶所能催化的底物量与酶的量之比。
酶的催化效率越高,表明酶的活性越强。
酶催化反应的动力学特性可以通过多种方法研究。
常用的方法包括比色法、荧光法、辐射法和电化学法等。
其中,比色法是一种比较简单的方法。
该方法基于酶催化反应造成的底物浓度变化,利用比色法来测量底物浓度变化的幅度。
荧光法则基于酶催化反应所产生的化学物质的荧光特性来研究反应动力学。
除了传统的实验方法外,近年来还出现了一些新的技术来研究酶反应动力学。
例如,纳米尺度下的酶化学反应研究,利用先进的纳米技术设备来研究酶反应的动力学特性。
这些新兴技术的出现,为酶催化反应动力学研究带来了更多的可能性。
分子动力学模拟实验的原理与方法
分子动力学模拟实验的原理与方法一、引言分子动力学模拟实验是一种基于分子运动规律的计算方法,通过模拟分子间相互作用力和运动轨迹,可以研究物质的结构、性质和动力学过程。
本文将介绍分子动力学模拟实验的原理与方法,包括模拟算法、模拟体系的构建和模拟结果的分析。
二、分子动力学模拟的原理分子动力学模拟实验基于牛顿力学和统计力学的原理,通过求解分子系统的运动方程,模拟分子间相互作用力和运动轨迹。
其基本原理可以概括为以下几点:1. 分子运动方程分子动力学模拟实验中,每个分子都被看作是一个质点,其运动方程可以由牛顿第二定律得到。
根据分子的质量、受力和加速度,可以得到分子的位置和速度随时间的变化。
2. 分子间相互作用力分子间的相互作用力可以通过势能函数来描述,常见的势能函数包括Lennard-Jones势和Coulomb势。
这些势能函数描述了分子间的吸引力和排斥力,从而影响分子的相互作用和运动。
3. 温度和压力控制分子动力学模拟实验中,为了模拟实际系统的温度和压力条件,需要引入温度和压力控制算法。
常见的温度控制算法包括Berendsen热浴算法和Nosé-Hoover热浴算法,压力控制算法包括Berendsen压力控制算法和Parrinello-Rahman压力控制算法。
三、分子动力学模拟的方法分子动力学模拟实验的方法包括模拟算法、模拟体系的构建和模拟结果的分析。
下面将对这些方法进行介绍。
1. 模拟算法分子动力学模拟实验中,常用的模拟算法包括经典力场方法和量子力场方法。
经典力场方法基于经验势能函数,适用于大尺度的分子系统,如蛋白质和溶液。
量子力场方法基于量子力学原理,适用于小尺度的分子系统,如分子反应和电子结构计算。
2. 模拟体系的构建模拟体系的构建是分子动力学模拟实验中的重要步骤,包括选择模拟系统、确定初始结构和参数设置。
模拟系统的选择应根据研究的目的和问题,可以是单个分子、溶液系统或固体表面。
初始结构可以通过实验数据、计算方法或模型生成,参数设置包括力场参数、温度和压力等。
分子动力学模拟研究脂肪酶的催化机理

脂肪酶催化的反应:
脂肪酶的来源及用途:
脂肪酶广泛存在于动物植物和微生物中。 植物中含脂肪酸较多的是油料作物的种子,当油 料种子发芽时,脂肪酶能与其他的酶协同发挥作 用催化分解油脂类物质生成糖类,提供种子生根 发芽所必须的养料和能量; 细菌,真菌和酵母中的脂肪酶含量更为丰富。 微生物脂肪酶:细菌28个属 放线菌4个属 酵母菌10个属 其他真菌23个属
在所有溶液中,模拟体系均很快的到达平衡状 态 CALB骨架原子与初始结构骨架原子的RMSD 在所有有机溶剂中变化都不大,在趋势CALB 骨架原子与初始结构骨架原子的RMSD的值 随着溶剂极性的增加而减小
RMSD:CALB骨架原子位置与初始结构骨架原子的位置 最小算数平方根
2、CALB中二级结构的改变
3、分子动力学模拟
首先对酶溶剂体系进行能量优化(500 steepest descent算法优化然后500步conjugate gradient算法 优化)
将酶溶剂体系在20ps内缓慢的从0K升温至300K,在整 个升温过程中CALB中的所有以原子通过使用谐振势 能进行位置限定 将升温后的酶溶剂体系在300K,1个标准大气压下进 行完全分子动力学模拟,模拟中所用的时间间隔为lfs, 模拟总时长为5ns
4、QM/MM模拟
构建了CALB的四面体结构来近似的代替CALB的过 度态 在300K 1 个标准大气压下进行20Ps的QM/MM模拟 在QM/MM模拟过程中SER105,ASP187,HIS224,底 物采用QM方法进行处理;其余部分采用MM的方法进 行处理
四、结果与讨论
1、CALB总体构象变化
溶剂分子的空间参数通过gaussian98软件在hf6一31g水平上在真空状态下优化计算得到溶剂分子的电荷通过使用amber10软件包中的resp程序对溶剂分子的电势能进行拟合得到3分子动力学模拟首先对酶溶剂体系进行能量优化500steepestdescent算法优化然后500步conjugategradient算法优化将酶溶剂体系在20ps内缓慢的从0k升温至300k在整个升温过程中calb中的所有以原子通过使用谐振势能进行位置限定将升温后的酶溶剂体系在300k1个标准大气压下进行完全分子动力学模拟模拟中所用的时间间隔为lfs模拟总时长为5ns4qmmm模拟在qmmm模拟过程中ser105asp187his224底物采用qm方法进行处理
分子动力学模拟在催化研究中的应用

分子动力学模拟在催化研究中的应用随着计算机科学的不断发展和高性能计算机的普及,分子动力学模拟成为了材料科学、生物科学和化学科学等领域中的常用工具。
其中,在催化研究中,分子动力学模拟已经成为了不可或缺的重要手段。
下面将介绍分子动力学模拟在催化研究中的应用及其意义。
一、分子动力学模拟的基本原理及步骤分子动力学模拟是基于牛顿运动定律的计算分子运动的数值模拟方法。
相对于一些实验方法,分子动力学模拟可以提供更丰富的信息,并在一定程度上避免实验条件对结果的影响。
分子动力学模拟的基本思路是通过对分子体系中的每一个原子进行力学分析,通过数值积分求出粒子的位置和速度的演化轨迹。
分子动力学模拟通常按照以下步骤进行:“首先,建立一个分子体系模型,并设置相应的模拟条件,如温度、压力和模拟时间等;然后,通过构建分子体系的哈密顿量或拉格朗日量,以及对分子体系中每个粒子的受力情况进行精确的描述,通过牛顿运动方程对分子体系进行数值模拟;最后,通过计算得到所有粒子在所有时刻的位形,从而确定分子体系的动力学行为。
”二、在催化研究中的应用2.1 吸附行为研究吸附行为研究是催化研究中的一个重要研究方向。
有了分子动力学模拟,可以对吸附分子在催化剂表面上的运动行为进行详细的研究。
例如,在氢重整反应中,氢分子与催化剂表面交互,并在其表面上吸附,并进一步转化为其他化学物质。
通过分子动力学模拟,可以模拟氢分子在催化剂表面上的吸附、扩散和反应过程,并研究各种条件对催化反应的影响。
此外,分子动力学模拟还可以帮助研究吸附分子的选择性,鉴定优化催化剂的结构和性能并探究各种因素对分子吸附特性的影响。
例如,在氢燃料电池中,分子动力学模拟可以帮助研究质子在催化剂膜上的扩散率以及其在界面的吸附性能。
在界面反应过程中,与催化剂接触的分子吸附能力越高,反应效果越好。
因此,分子动力学模拟可以为优化催化剂的设计提供重要的理论参考。
2.2 反应性能预测在催化反应中,参与反应的分子之间形成了复杂的化学反应体系。
脂肪酶综述
脂肪酶与生物柴油的催化合成摘要:脂肪酶已成为工业生产所需的一种重要用酶。
已广泛应用于食品、药品、日用化工等领域。
本文综述了脂肪酶的结构、应用、催化机理以及在生物柴油生产中的研究进展。
关键词:脂肪酶,催化机理,生物柴油0 前言脂肪酶,又称甘油酯水解酶,是指分解或合成高级脂肪酸和丙三醇形成的甘油三酸酯的酯键的酶,它是一类具有多种催化能力的酶,被广泛用于三脂酰甘油及其他一些水不溶性脂类的水解、醇解、酯化、转酯化及脂类逆向转酯反应酯类的逆向合成反应[1]中。
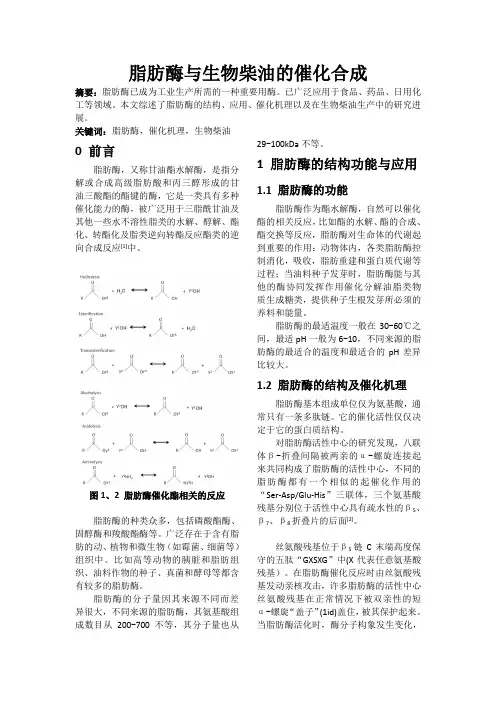
图1、2 脂肪酶催化酯相关的反应脂肪酶的种类众多,包括磷酸酯酶、固醇酶和羧酸酯酶等。
广泛存在于含有脂肪的动、植物和微生物(如霉菌、细菌等)组织中。
比如高等动物的胰脏和脂肪组织、油料作物的种子、真菌和酵母等都含有较多的脂肪酶。
脂肪酶的分子量因其来源不同而差异很大,不同来源的脂肪酶,其氨基酸组成数目从200-700不等,其分子量也从29-100kDa不等。
1 脂肪酶的结构功能与应用1.1 脂肪酶的功能脂肪酶作为酯水解酶,自然可以催化酯的相关反应,比如酯的水解、酯的合成、酯交换等反应,脂肪酶对生命体的代谢起到重要的作用:动物体内,各类脂肪酶控制消化,吸收,脂肪重建和蛋白质代谢等过程;当油料种子发芽时,脂肪酶能与其他的酶协同发挥作用催化分解油脂类物质生成糖类,提供种子生根发芽所必须的养料和能量。
脂肪酶的最适温度一般在30-60℃之间,最适pH一般为6-10,不同来源的脂肪酶的最适合的温度和最适合的pH差异比较大。
1.2 脂肪酶的结构及催化机理脂肪酶基本组成单位仅为氨基酸,通常只有一条多肽链。
它的催化活性仅仅决定于它的蛋白质结构。
对脂肪酶活性中心的研究发现,八联体β-折叠间隔被两亲的α-螺旋连接起来共同构成了脂肪酶的活性中心,不同的脂肪酶都有一个相似的起催化作用的“Ser-Asp/Glu-His”三联体,三个氨基酸残基分别位于活性中心具有疏水性的β5、β7、β8折叠片的后面[2]。
论酶催化反应的基本原理和动力学过程
论酶催化反应的基本原理和动力学过程酶催化反应是促进生物化学反应的重要环节之一。
在生命体系中,酶可以协助细胞在体内进行必须的代谢反应。
为了理解酶催化反应的核心原理和机制,需要探究酶催化反应的基本原理和动力学过程。
一、酶催化反应的原理酶是一种生物大分子,为蛋白质的一种。
在酶的分子结构中,有一些与化学反应有关的活性位点。
这些活性位点可以与反应物分子结合,发挥酶催化作用,促进反应的进行。
酶催化的过程中,其原理基于三个方面:1.空间位型理论:在酶催化反应中,酶的分子结构会限制反应物分子的空间取向,使加速特定的反应,这个限制就是所谓的“空间位型理论”。
2.电子效应理论:酶有许多半径不一的活性位点,当外界条件或反应物发生变化时,这些活性位点外环的电荷密度会发生变化,从而改变反应物分子的能级,发挥酶催化作用。
3.临界触媒理论:酶催化反应并非功能单一的生物分子的加速反应,在酶的特定结构和活性位点下,反应物的能级会达到临界值,这时候反应物就会被激活,表现出较高的反应速度。
二、酶催化反应的动力学过程酶催化反应的动力学过程可以分为两个阶段。
1.反应机理反应机理包括物质在酶催化下的吸附、物质分子的活性环境、化学键的形成与破坏,并生成新的化学键,形成最终的产物。
2.动力学速率动力学速率是反应在一定物质浓度下的速率,它是酶催化反应的外部表现之一。
动力学速率可以由速率常数等动力学方法来表现。
速率常数k是反应速率、反应物浓度等物理量之间的比例关系,它与反应物种类、温度和反应物分子浓度有关。
三、结论总结而言,酶催化反应在维持生命的过程中,是一个必不可少的环节。
酶能够在体内进行必须的代谢反应,其机制基于空间位型理论、电子效应理论、临界触媒理论的相互作用。
反应机理包括物质吸附、化学键形成和破坏,并生成新的化学键,形成最终产物。
动力学速率是反应在一定物质浓度下的速率,它是酶催化反应的外部表现之一。
以上内容能够在理论上让我们初步了解酶催化反应的原理和框架,同时也为我们理解和掌握生命体系的运作机制提供了重要的指引。
分子动力学模拟与分析
分子动力学模拟与分析分子动力学模拟是一种计算化学方法,用于模拟分子在特定条件下的行为。
它是一种物理化学方面的计算方法,可以用于预测分子的性质、研究分子的反应机理等。
分子动力学模拟是一种基于牛顿力学和量子力学的模拟方法,可以用于研究分子自组装、化学反应、表面催化等领域。
下面将分别就分子动力学模拟和分子动力学分析进行介绍。
一、分子动力学模拟分子动力学模拟是一个基于牛顿力学和量子力学的计算方法,用于模拟分子在各种条件下的运动和变化。
它可以用于预测分子的性质、构象、动力学、热力学、光学和电学性质等,还可以用于研究分子在溶液、表面上的自组装、化学反应、表面催化等领域。
1. 模拟的原理分子动力学模拟是基于牛顿定律和量子力学原理的模拟方法。
具体来说,它将分子看作是一组由原子组成的小球,对其进行运动学和动力学的模拟。
在运动学上,分子在三维空间中的位置、速度、加速度等被计算和模拟;在动力学上,根据牛顿定律,分子的运动动力学方程被建立,用于描述其运动轨迹和变化过程。
2. 模拟的步骤分子动力学模拟通常包括以下步骤:(1)建立分子模型选择分子系统,对分子结构进行优化和参数化,建立分子模型。
(2)定义分子初始状态给定分子的位置、速度、温度和压力等初始状态参数。
(3)计算分子运动轨迹通过计算分子的运动动力学方程,模拟分子的运动轨迹和变化过程,在指定的时间间隔内计算分子的位置、速度和加速度等参数,确定分子的运动规律。
(4)计算分子性质根据分子模型和运动轨迹,计算分子的性质,包括构象、动力学、热力学、光学和电学性质等。
(5)分析结果分析模拟结果,评估分子系统的性质和行为,对分子结构和反应机理进行探究和解释。
三、分子动力学分析分子动力学分析是指对已有分子动力学模拟结果进行分析和解释的方法。
它可以用于评估分子系统的性质和行为,包括构象、动力学、热力学、光学和电学性质等。
下面将介绍几个分子动力学分析方面的方法。
1. 聚类分析聚类分析是将分子结构根据某些共同特征进行分类的方法。
脂肪甘油三酯脂肪酶(atgl)的生物学功能及调控机制
脂肪甘油三酯脂肪酶(atgl)的生物学功能及调控机制
脂肪甘油三酯脂肪酶(Adipose Triglyceride Lipase,ATGL)是一种重要的脂解酶,在维持脂肪代谢平衡、调节能量代谢以及脂肪细胞分化等过程中发挥着重要的生物学功能。
ATGL主要催化三酯分子的水解,将其分解为游离脂肪酸和甘油。
这种酶的存在不仅可以通过增加游离脂肪酸的浓度来提供能量,还可以促进脂肪细胞的分解,从而维持脂肪组织的稳态。
除此之外,ATGL还参与了一些其他生物学过程。
例如,在肝脏中,ATGL参与了糖代谢和胆固醇合成等过程;在肌肉中,ATGL则负责调节肌肉的代谢状态和反应能力。
ATGL的活性和表达水平受到多种因素的调控。
其中,一些激素和细胞因子(如瘦素、肾上腺素和胰岛素等)可以直接或间接地调节ATGL的表达和功能;而其他一些因素(如环境胁迫和氧化损伤等)则可以影响这种酶的稳定性和抗氧化能力。
总之,ATGL作为一种重要的脂解酶,不仅在脂肪代谢和能量调节中发挥着重要的作用,还可能参与了更广泛的生物学过程。
因此,对于ATGL的生物学功能和调控机制的深入研究不仅对于加深我们对脂肪代谢和能量调节的了解,还可能为相关疾病的治疗提供新的思路和策略。
- 1 -。
脂肪酶的催化机理
脂肪酶和酯酶区别
相同点 脂肪酶 酯酶 水解酯键 水解酯键 不同点 可以催化水不溶性酯 服从米氏方程 催化可溶性酯,S形曲线
所谓的界面被认为是两个临接的有序分子层, 一个比较亲水,一个比较疏水。 “界面活化”现象的分子基础被认为是酶分 子的构想变化,它与脂肪酶的一个与众不同 的特征有关,
脂肪酶的活性中心是丝氨酸(Ser)残基, Ser与天冬氨酸(Asp)、组氨酸(His)组 成的三元组催化中心,正常情况下,该中心 埋在一个或数个 –螺旋结构的“盖子”下面, 受 –螺旋的保护。“盖子”的疏水集团与这 个三元组的疏水区域相结合。这个带有色氨 酸(Trp) 的盖子具有两亲性, Trp疏水表面与催化中 心的疏水区域相结合,暴露出的另一端则面
当脂肪酶与界面相接触时覆盖活性位点的螺旋结构打开暴露疏水残基增加与脂类底物的亲和力暴露活性位点同时该变化导致脂肪酶在ser周围产生一个亲电区域可保护催化过程中过度中间产物稳定脂肪酶处于活性中心脂肪酶催化的反应反应方程式酯的水解rcoorhrcoohroh酯的合成rcoohrohrcoorh酯交换反应rcoorrcoorrcoorrcoor醇解反应rcoorrohrcoorroh酸解反应rcoorrcoohrcoorrcooh脂肪酶的选择性脂肪酸或酰基供体的选择性
脂肪酶的催化机理
袁海晓
脂肪酶的界面活化机理
脂肪酶和酯酶都能催化酯的水解,但只有脂酶可以 催化水不溶性酯的水解。脂肪酶和酯酶的最大差别 在于它们与底物的作用形式不同。酯酶的活性随着 底物浓度的增加而增大,表现为依赖于底物浓度的 正常Michaelis-Menten活性,而脂肪酶则表现出S形 曲线,在底物浓度处于溶解状态下,脂肪酶几乎没 有活性,只有当底物浓度逐渐增加到超出其溶解度 极限时,才表现出明显增加的活性,这种现象称为 “界面活化”。