
DNA的转录ppt
三、转录过程
转录可分三阶段:起始、延伸和终止。 转录可分三阶段:起始、延伸和终止。 真核生物中还需转录后加工过程。 真核生物中还需转录后加工过程。 1. 原核生物的转录过程 (1)转录起始 ) 启动子(promoter) ① 启动子 位于结构基因5'端上游的一段 序列, 位于结构基因 端上游的一段DNA序列,可被 端上游的一段 序列 可被RNA聚 聚 合酶识别并结合,以启动基因转录,又称启动基因。 合酶识别并结合,以启动基因转录,又称启动基因。
真核生物启动子由转录因子识别。 真核生物启动子由转录因子识别。 转录因子识别 转录因子(transcription factor):能识别启动子并与之发 转录因子 : 生相互作用的蛋白质,影响转录过程。 生相互作用的蛋白质,影响转录过程。 前起始复合物(preinitiation complex):多种转录因子与 前起始复合物 : RNA聚合酶在转录起点处形成的复合物。 聚合酶在转录起点处形成的复合物。 聚合酶在转录起点处形成的复合物
coding region coding region
(3) 剪切与拼接 剪切与拼接(Splicing) ① mRNA的剪接 的剪接 外显子(exon):外显子是指编码区的DNA序列。 外显子 :外显子是指编码区的 序列。 序列 内含子(intron):内含子是指非编码区DNA序列。 :内含子是指非编码区 序列。 内含子 序列 剪接(splicing):指切除转录初始产物中内含子并将外 : 剪接 显子连接成一个整体的过程。 显子连接成一个整体的过程。
原核生物启动子特点: 原核生物启动子特点:
-35 -35 Box TTGACA -10 -10 Box TATAAT +1 3'
5'
启动子区
结构基因
–10 Box:也称为 :也称为Pribnow盒,一致序列为 盒 一致序列为TATAAT, , 有利于转录时双链的解开。 有利于转录时双链的解开。 –35 Box:一致序列为 :一致序列为TTGACA,提供聚合酶结合时 , 的识别为点。 的识别为点。
2. 真核细胞的转录后加工 (1) 加帽 加帽(Capping)
pppN-N-RNA ppN-N-RNA + GTP RNA磷酸酶 鸟苷酸转移酶 ppN-N-RNA + Pi GpppN-N-RNA + PPi
甲基转移酶 m7GpppN-N-RNA GpppN-N-RNA+SAM + S-腺苷同型半胱氨酸 甲基转移酶 m7GpppNmp-N-RNA + S-腺苷同型半胱氨酸
底物NTP 底物
n1AMP n2GMP + (n +n +n +n )PPi 1 2 3 4 n3UMP n4CMP
产物RNA 产物
转录过程中 碱基配对差异: 碱基配对差异:
DNA H 3C
RNA 氢键 H N O H N N N A N
DNA/RNA
RNA/DNA
N N N
氢键 H O H N N H N H H G N O C N
2. 真核生物基因转录 (1)真核生物启动子 ) 真核生物包括三类启动子 三类启动子: 真核生物包括三类启动子: 类型Ⅰ 类型Ⅰ启动子 (class Ⅰ promoter) 类型Ⅱ 类型Ⅱ启动子 (class Ⅱ promoter) 类型Ⅲ 类型Ⅲ启动子 (class Ⅲ promoter)
控制rRNA的转录 的转录 控制 控制mRNA的转录 的转录 控制 控制小分子RNA的转录 的转录 控制小分子
(2) 转录延伸 σ因子的脱落,促进了RNA合成速度: 因子的脱落,促进了 合成速度: 因子的脱落 合成速度 核苷酸/秒 分子酶 约50核苷酸 秒.分子酶 核苷酸
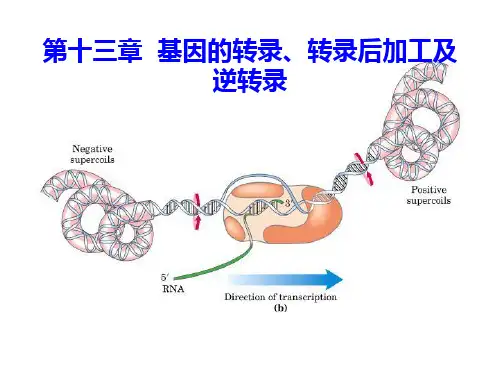
Negative supercoils
Positive supercoils
Coding strand Rewinding Template strand Unwinding
m7GpppN-N-RNA+SAM
(2) 加poly(A)尾巴 尾巴(Polyadenylation) 尾巴
RNA-pN-OH+nATP +
多聚腺苷 酸聚合酶
Mg2+/Mn2+
RNA-pN-pApA…pA+nPPi …
100~200
多聚腺苷酸化在核内完 成,可以增加mRNA的 可以增加 的 稳定性。 稳定性。并非所有的真 都具有poly(A) 核mRNA都具有 都具有 尾巴,如组蛋白、 尾巴,如组蛋白、呼肠 孤病毒及一些植物病毒 mRNA。 。
2. 真核细胞 真核细胞RNA聚合酶 聚合酶 RNA聚合 细胞 聚合 部位 酶种类 聚合酶I 聚合酶 聚合酶II 聚合酶 核仁 核质 对抑制物α-鹅 对抑制物 鹅 膏蕈碱敏感性 不敏感 敏感 中等敏感
功
能
转录rRNA 转录 转录mRNA 转录
转录小分子RNA, , 转录小分子 聚合酶III 核质 聚合酶 如tRNA、5S rRNA等 、 等 线粒体中的RNA聚合酶与原核生物相似。 聚合酶与原核生物相似。 线粒体中的 聚合酶与原核生物相似
③ RNA合成的起始 合成的起始 起始位点(initiation site) 起始位点 RNA聚合酶 通常结合一嘌呤碱基 聚合酶 (RNA Pol) 延伸位点(elongation site) 延伸位点 起始位点的嘌呤 碱基与模板+1位 碱基与模板 位 碱基配对 延伸位点引入与模 板+2位碱基配对的 位碱基配对的 第二个NTP,形成 第二个 , 磷酸二酯键 在模板指导下 依次引入NTP 依次引入 新合成RNA链延伸 链延伸 新合成 碱基后, 约6~10碱基后,σ 碱基后 因子从全酶脱落 延伸阶段
N H N O T
DNA
氢键
RNA
H H O N N N N N N H N O A U
模板链(template strand):在转录过程中直接参与指导 模板链 :在转录过程中直接参与指导RNA 合成过程的DNA链,其序列与新合成的RNA链互补。 链 其序列与新合成的 链互补。 合成过程的 链互补 编码链(coding strand):在RNA合成过程中不直接参与指导 编码链 : 合成过程中不直接参与指导 RNA合成的 合成的DNA链,其序列与新合成的 链对应。 合成的 链 其序列与新合成的RNA链对应。 链对应
5'
RNA RNA-DNA hybrid(~8bp)
3'
NTP chanel Active site
Direction of transcription
大肠杆菌RNA聚合酶催化 聚合酶催化 大肠杆菌 RNA聚合反应的起始与延伸 聚合反应的起始与延伸
(3) 转录终止 不依赖ρ因子的终止 ① 不依赖 因子的终止
GC Box: GGGCGG CAAT Box: GGC(T)CAATCT
(2) 真核生物增强子 真核生物增强子(enhancer): : 增强子: 增强子:真核细胞中能增强启动子活性的核苷酸序 列,称为增强子。 称为增强子。 增强子的特点: 增强子的特点: ① 可远距离作用 可大于几个 ; 可远距离作用(可大于几个 可大于几个kb); 位于启动子上游或下游都可发挥作用; ② 位于启动子上游或下游都可发挥作用; ③ 可在模板链上或也可位于编码链上; 可在模板链上或也可位于编码链上; 功能与序列方向性无关; ④ 功能与序列方向性无关; 具有组织特异性。 ⑤ 具有组织特异性。
相对分 亚基 亚基 基因 功 能 子量(kD) 数目 子量 α rpo A 40 2 装配亚基:与启动子上游元件和 装配亚基: 活化因子结合. 活化因子结合 β rpo B 155 1 催化中心:结合核苷酸底物,催 催化中心:结合核苷酸底物, β' rpo C 160 1 化磷酸二酯键形成,与模板 化磷酸二酯键形成,与模板DNA 结合。 结合。 σ rpo D 32~92 1 识别亚基:可识别启动子,促进 识别亚基:可识别启动子, 转录的起始。 转录的起始。 ω 9 1 功能不详。 功能不详。
真核生物的Ⅱ类启动子: 真核生物的Ⅱ类启动子: 包括四种控制元件: 包括四种控制元件: 基本启动子(basal promoter ,即TATA Box) 基本启动子 起始子(initiator) 起始子 上游元件(upstream element) 上游元件 应答元件(response element)。 应答元件 。
聚合酶与模板DNA的结合 ② RNA聚合酶与模板 聚合酶与模板 的结合 封闭式启动子复合物 (closed promoter complex)
全酶的σ因子识别 全酶的 因子识别-35 因子识别 Box,并与之结合。 ,并与之结合。
开放式启动子复合物 (open promoter complex)
DNA双链在 双链在-10 Box附近解 双链在 附近解 开约14bp的区域,酶与模 的区域, 开约 的区域 板形成紧密复合物。 板形成紧密复合物。
编码链 DNA
模板链 RNA 转录本
RNA聚合酶 聚合酶
二、参与转录的酶类
1. 原核细胞 原核细胞RNA聚合酶 聚合酶 核心酶(core enzyme):α2ββ ' 核心酶 : 全酶(holoenzyme):α2ββ ' σ : 全酶
大肠杆菌RNA聚合酶各亚基的性质与功能 大肠杆菌RNA聚合酶各亚基的性质与功能 RNA
Transcription
大肠杆菌trp操纵子终止位 大肠杆菌 操纵子终止位 点序列(富含 的反向重复序 富含GC的反向重复序 富含
列形成茎环结构促进RNA从模 从模 列形成茎环结构促进 板上脱落) 板上脱落
依赖ρ ② 依赖 因子的终止 ρ因子 factor):由50kD亚基组成的六聚体,是一种 因子(ρ 亚基组成的六聚体, 因子 : 亚基组成的六聚体 ATP依赖型解链酶,可解开 依赖型解链酶, 依赖型解链酶 可解开RNA:DNA和R的加工
CTP ATP
合集下载
第十三章基因的转录、转录后加工及逆转录ppt课件
◆真核生物启动子 (1)DNA序列在转录起始点的5’端区(上游 区)(2)-25bp :TATA盒(Hogness box) (3)-90bp :GC盒 (4)-70bp :CAAT盒
-90
-70
GC
CAAT
RNA聚合酶Ⅱ催化的转录起始
RNA聚合酶Ⅱ催化各种前体mRNA的合 成
需要多种TF参与:TFⅡA-J
第一节 参与转录的酶
RNA聚合酶——依赖DNA的RNA聚合酶 (DNA-dependent RNA polymerase,DDRP)
以DNA为模板,催化2个游离的NTP 形成3’,5’-磷酸二酯键
一、原核生物RNA聚合酶
1、大肠埃希菌RNA聚合酶的组成 (1)全酶(holoenzyme)
由4种(5个)亚基α2ββ’σ组成 (2)核心酶(core enzyme)
作用位置
步骤1 步骤2
200~250
(3)真核生物mRNA转录后加工—剪接
内含子
外显子
DNA
hnRNA
●剪接所需条件
snRNA (U1-U6) + 蛋白质 (核内小分子核酸)
多种snRNP (核内小核蛋白颗粒)
多种snRNPs装配成
剪接体 (参与剪接过程)
4、RNA编辑(RNA editing)
二.真核生物RNA转录后的加工 1、rRNA转录后的加工
真核生物rRNA 的基因
(rDNA)
转录产物
成簇纵列串联排列
高度重复序列DNA
核质:(Ⅲ)--不需加 工
5s rRNA
核仁:(Ⅰ)--加工
5.8s rRNA 28s rRNA 18s rRNA
rDNA 内含子
基因间隔
DNA 转录(DNA Transcription)
转录的起始
转录的起始实际上是RNA聚合酶与启动子相互作 用并形成活性转录起始复合物的过程,整个反 应可分为以下几步: * RNA聚合酶与dsDNA非特异性结合 * RNA 聚合酶全酶与启动子形成封闭复合物 * 封闭复合物异构化,转变成开放复合物 * 第一个磷酸二酯键形成 * 启动子清空
转录的详细机制
翻译后加工
• 为什么要进行翻译后加工? 1) 增加功能性 2) 实现定向和分拣 3) 调节活性 4) 提高机械强度 5) 改变识别
翻译后加工的主要方式
• • • • • • 多肽链的修剪、剪切或剪接 N-端添加氨基酸 氨基酸残基的修饰 二硫键的形成 添加辅助因子(金属离子、辅酶或辅基) 多肽链的折叠和四级结构的形成
蛋白质分子的氨基酸残基能够经历的各种形式的修饰
蛋白质合成的抑制剂
• 许多抗菌素及毒素可抑制蛋白质合成
• 氯霉素,四环素,链霉素只抑制原核细胞 的转译,但不作用于真核细胞 • 亚胺环己酮只抑制真核细胞的转译等
蛋白质翻译后的定向与分拣
• 一般用由Blobel和Dobberstein于1975年提出的信号学 说解释蛋白质的定向和分拣。其主要内容是:各种 蛋白质在细胞中的最终定位由多肽链本身所具有的 特定氨基酸序列决定。这些特殊的氨基酸序列起着 一种信号向导的作用,因此被称为信号序列。在某 种意义上,一个蛋白质分子上的信号序列相当于它 特有的“分子邮政编码”。如果一个蛋白质缺乏任 何一种信号序列,则会留在其“默认”的位置——细 胞液,如参与糖酵解和磷酸戊糖途径的酶以及细胞 骨架蛋白等。 • 根据识别和利用分拣信号的机制,细胞内蛋白质定 向、分拣的途径分为共翻译途径——在翻译延伸还没 有结束的时候就被启动和翻译后途径——需要在翻译 结束以后才被启动。 • 分为识别 、移位和成熟三步
原核生物的转录与调控.ppt
例如:lac基因簇(乳糖操纵子中的三个结构基因)
原核生物操纵子中的全部结构基因从同一个启动子开 始-转半录乳成糖一苷个分多解顺酶反子的mRNA分子。
-半乳糖苷透性酶
Plac
硫代半乳糖苷乙酰转移酶
二、转录水平的调控-操纵子
3. 操纵基因:是原核生物的操纵子中调节蛋白的结合 位点,为控制结构基因转录的DNA序列。
和终止的调控。
机体可以在基因表达过程的任何阶段进行调控,一般以 转录水平上的调控为主。
二、转录水平的调控-操纵子
1. 操纵子
操纵子是原核生物基因结构、表达和调控的基本形式。 一个操纵子包括一个上游的调控区和一个以上的结构基 因组成。 调控区包含启动子和操纵基因两部分。该区控制连锁在 一起的多个基因的转录。
4. 调节基因:仅指参与其他基因表达调控的RNA和蛋 白质的编码基因。
调节基因编码的调节蛋白通过与DNA上的操纵基因结 合而控制结构基因的转录,是基因表达调控的关键。
二、转录水平的调控-操纵子
5. 反式作用因子与顺式作用元件
基因表达的产物(蛋白质或RNA)从合成的场所扩散到目 标场所而发挥作用的过程称为反式作用(trans-acting), 此基因表达产物被称为反式作用因子(trans-acting factor) 。
反式作用因子通常为蛋白质或RNA,其特征为可以从合成 地扩散到目标场所发挥作用。
顺式作用元件(cis-acting factor)是指对结构基因表达 有调节活性的DNA序列,其活性只影响与其自身同处在 一个DNA分子上的基因。顺式作用元件通常不编码蛋白 质,多位于基因旁侧或内含子中。
顺式作用(cis-acting)的概念用于任一不转变为任何其 他形式的DNA序列,它只在原位发挥DNA序列的作用, 仅影响与其物理上相连的DNA序列的活性。
DNA复制转录和翻译-幻灯片(1)
核酸外切酶活性
?
5’ A G C T T C A G G A T A
3’
||||||| ||| |
3’ T C G A A G T C C T A G C G A C 5’
3 5 外切酶活性
辨认错配的碱基对,将其水解-校对
5 3 外切酶活性
切除引物或突变的DNA片段
真核生物的DNA聚合酶
DNA - pol 后随链合成 DNA - pol DNA修复
35 ’’
dCTP
DNA-pol DNA-poDl NA-pDolNA-pol
5
’
dGTP
dTTP
dATP
dATP dGTP
dCTP dTTP
(二)复制的 半不连续性
5
3
解链方向 ’
3
3
5 ’
5
领头链 ( leading strand )
顺着解链方向生成的子链,其复制是连续 进行的,所得到一条连续片段的子链。
引发体(primosome)
引物酶与其他和复制有关的蛋白质形成的复合 物。
DNA连接酶 ( DNA ligase )
连接DNA链 3- OH末端和相邻DNA链5- P 末端,使二者生成磷酸酯键 ,从而把两段相 邻的DNA链连接成完整的链。
ATP
OH P
DNA连接酶在DNA修复、重组、剪接中也起 连接缺口的作用。
功能:
复制终止时,染色体线性DNA末端确有 可能缩短,但通过端粒酶的作用,可以补 偿这种由除去引物引起的末端缩短。
telomerase
端粒酶与药物
hTR和hTERT 核酶 逆转录酶抑制剂 3-叠氮胸苷(AZT)
四、其他复制方式
原核生物与真核生物DNA复制转录和翻译的特征比较 ppt课件

,三种聚合酶都必须在蛋白质转录因子的协助 下才能进行RNA的转录,其RNA聚合酶对转录
启动子的识别也比原核生物要复杂得多。原核 生物的RNA聚合酶可以直接起始转录合成RNA 。
原核与真核生物 翻译的特点
1、翻译的相同点 2、翻译的不同点
PPT模板下载:/moban/ 行业PPT模板:/hangye/
优秀PPT下载:/xiazai/ PPT教程:/powerpoint/
Word教程: /word/ Excel教程:/excel/
资料下载:www. /ziliao/
PPT课件下载:www. /kejian/
范文下载:/fanwen/ 试卷下载:/shiti/
教案下载:www. /jiaoan/
1、转录的相同点
RNA合成方向都是从5’到3’,以DNA双链中 的反义链为模版,在RNA聚合酶催化下,以4 种三磷酸腺苷为原料,根据碱基互补配对原则 ,各核苷酸之间通过形成磷酸二酯键,不需要 引物的参与,合成的RNA带有与DNA编码链相 同的序列。转录的基本过程包括模版识别、转 录起始、通过启动子及转录的延伸和终止。
2、DNA复制的不同点
1)真核生物DNA的合成只是在细胞周期 的S期进行,而原核生物则在整个细胞生长 过程中都可进行DNA合成 ; 2)真核生物每条染色质上有多处复制起始 点,而原核生物只有一个起始点;且真核 生物DNA复制的起始需要起始点复合物( ORC)的参与,而原核生物是由多种蛋白 质有序地作用与复制起始点来引发DNA的 复制过程; 3)真核生物DNA的合成所需的RNA引物 及后随链上合成的冈崎片段的长度比原核 生物要短。
范文下载:/fanwen/ 试卷下载:/shiti/
教案下载:www. /jiaoan/
启动子的识别也比原核生物要复杂得多。原核 生物的RNA聚合酶可以直接起始转录合成RNA 。
原核与真核生物 翻译的特点
1、翻译的相同点 2、翻译的不同点
PPT模板下载:/moban/ 行业PPT模板:/hangye/
优秀PPT下载:/xiazai/ PPT教程:/powerpoint/
Word教程: /word/ Excel教程:/excel/
资料下载:www. /ziliao/
PPT课件下载:www. /kejian/
范文下载:/fanwen/ 试卷下载:/shiti/
教案下载:www. /jiaoan/
1、转录的相同点
RNA合成方向都是从5’到3’,以DNA双链中 的反义链为模版,在RNA聚合酶催化下,以4 种三磷酸腺苷为原料,根据碱基互补配对原则 ,各核苷酸之间通过形成磷酸二酯键,不需要 引物的参与,合成的RNA带有与DNA编码链相 同的序列。转录的基本过程包括模版识别、转 录起始、通过启动子及转录的延伸和终止。
2、DNA复制的不同点
1)真核生物DNA的合成只是在细胞周期 的S期进行,而原核生物则在整个细胞生长 过程中都可进行DNA合成 ; 2)真核生物每条染色质上有多处复制起始 点,而原核生物只有一个起始点;且真核 生物DNA复制的起始需要起始点复合物( ORC)的参与,而原核生物是由多种蛋白 质有序地作用与复制起始点来引发DNA的 复制过程; 3)真核生物DNA的合成所需的RNA引物 及后随链上合成的冈崎片段的长度比原核 生物要短。
范文下载:/fanwen/ 试卷下载:/shiti/
教案下载:www. /jiaoan/
《DNA的复制与转录》幻灯片
连续合成的DNA链一般称前导链,不连续合成的DNA链称 滞后链。
冈崎片断产生的原因
引发体先在前导链上合成一段引物,后转移到滞后链
复制叉移动一段距离后,在滞后链模板上的引物酶合成出引 物,DNA聚合酶结合,开场延伸DNA,由于方向与复制叉 移动方向相反,延伸一段距离后, DNA聚合酶与DNA别离。
DNA聚合酶
大肠杆菌一般有3种DNA聚合酶,分别称为DNA聚合酶I、II、 III,分别行使不同的功能,DNA的复制主要由DNA聚合酶III 催化
DNA聚合酶I:多功能酶,需Mg2+、Zn2+
5’ 3’核苷酸聚合作用,以四种脱氧核苷三磷酸为原料,需 要单链模板,必须有引物游离3’-OH存在
2‘,5’-磷酸二酯键同时释放5’的外显子
外显子1的3’-OH与外显子5’-磷酸基团形成3’,5’-磷酸二 酯键
套索内含子释放
(DnaB)
Sliding clamp subunits
Clamp loader
3’ 5’ exonuclease subunits
腺嘌呤 腺嘌呤
子
逆转录的生物学意义 中心法那么的重要补充 致癌病毒的复制方式,对于相应的疾病的治疗有指导
意义 基因工程中遗传信息的重要获得方式 基因治疗的重要工具 生物进化研究的突破 DNA复制的调控 顺式调控作用 DNA序列的调控作用 反式调控作用 蛋白因子的调控作用
DNA的转录过程
原核生物的转录作用 RNA聚合酶 多亚基酶: 、 、 ’、 无需引物存在 可转录mRNA、tRNA、rRNA 转录起始 启动子:RNA聚合酶识别,结合,并开场转录的
构造基因: -半乳糖苷酶, -半乳糖苷透性酶, -半乳糖苷转乙酰酶
操纵基因:可以和阻遏蛋白可逆的结合,控制构 造基因的表达,与构造基因构成操纵子
冈崎片断产生的原因
引发体先在前导链上合成一段引物,后转移到滞后链
复制叉移动一段距离后,在滞后链模板上的引物酶合成出引 物,DNA聚合酶结合,开场延伸DNA,由于方向与复制叉 移动方向相反,延伸一段距离后, DNA聚合酶与DNA别离。
DNA聚合酶
大肠杆菌一般有3种DNA聚合酶,分别称为DNA聚合酶I、II、 III,分别行使不同的功能,DNA的复制主要由DNA聚合酶III 催化
DNA聚合酶I:多功能酶,需Mg2+、Zn2+
5’ 3’核苷酸聚合作用,以四种脱氧核苷三磷酸为原料,需 要单链模板,必须有引物游离3’-OH存在
2‘,5’-磷酸二酯键同时释放5’的外显子
外显子1的3’-OH与外显子5’-磷酸基团形成3’,5’-磷酸二 酯键
套索内含子释放
(DnaB)
Sliding clamp subunits
Clamp loader
3’ 5’ exonuclease subunits
腺嘌呤 腺嘌呤
子
逆转录的生物学意义 中心法那么的重要补充 致癌病毒的复制方式,对于相应的疾病的治疗有指导
意义 基因工程中遗传信息的重要获得方式 基因治疗的重要工具 生物进化研究的突破 DNA复制的调控 顺式调控作用 DNA序列的调控作用 反式调控作用 蛋白因子的调控作用
DNA的转录过程
原核生物的转录作用 RNA聚合酶 多亚基酶: 、 、 ’、 无需引物存在 可转录mRNA、tRNA、rRNA 转录起始 启动子:RNA聚合酶识别,结合,并开场转录的
构造基因: -半乳糖苷酶, -半乳糖苷透性酶, -半乳糖苷转乙酰酶
操纵基因:可以和阻遏蛋白可逆的结合,控制构 造基因的表达,与构造基因构成操纵子
第五章转录ppt课件
一、E.coli RNA聚合酶
E.coli RNA聚合酶由5个亚基组成(5个 多肽链),即α2ββ′σ
αββ′σ四个亚基的分子量分别为36.5KDa、 150 KDa、160KDa和82 KDa,整个酶 分子的分子量为465KDa
分别是基因rpoA、rpoB、rpoC和rpoD的
产物
RNA聚合酶Ⅲ也存在于核质中,其功 能是合成tRNA和5S rRNA以及转录 Alu序列
在细胞质中也能发现一些RNA聚合酶 Ⅲ,它是从细胞核中渗漏出来的。
三种主要的RNA聚合酶的分子量都在 500 KDa左右(14S-15S),每种酶分子 含有两个大亚基和4~8个小亚基,每 个小亚基的分子量为10 KDa-90KDa
这些名称最早是依据它们从DEAE-纤维素柱上洗脱的 先后顺序而定出来的。后来发现不同生物的三种RNA聚 合酶的洗脱顺序并不相同,因而改用三种不同的RNA聚 合酶对于α-鹅膏蕈碱(α-amanitine)的敏感性不同来 进行区别。RNA聚合酶I基本不受α-鹅膏蕈碱的抑制, 在大于10-3 mol/L时才表现出轻微的抑制作用;RNA聚 合酶Ⅱ对于α-鹅膏蕈碱最为敏感,在10-9-10-8mol/L 浓度下就会被抑制;RNA聚合酶Ⅲ的敏感性介于RNA聚 合酶Ⅰ和Ⅱ之间,在10-5-10-4 mol/L时表现抑制作用。
与RNA聚合酶相结合的一个很小的蛋白质(MW= 10KDa),叫做ω亚基,其功能尚不清楚,有人认 为ω亚基对于RNA聚合酶的结构和功能没有太大的 影响。
原核生物的 RNA聚合酶
亚基 分子量
36512
150618
155613
70263
功能
决定哪些基因被转录 催化功能
DNA的复制转录和翻译.ppt
2)转录起始和延伸(Initiation & Extension)
酶与启动基因的结合 原 DNA局部解螺旋(10-20bp) 核 全酶至转录起始位点,σ释放,转录开始,第一个磷酸二 生 脂键形成(原核) 物 核心酶覆盖双链DNA和RNA复合物,向前推进,边解螺
旋,边释放RNA链,已转录区重螺旋(原核)。
2)连接冈崎片段
在DNA连接酶的催化下,形成最后一个磷酸酯键,将冈崎 片段连接起来,形成完整的DNA长链
原核生物和真核生物DNA复制区别
区别 DNA合成的时期
原核生物 整个细胞生长过程
复制起点数
单个
RNA引物长度 冈崎片段长度
10~16核苷酸 1000~2000核苷酸
前导链与后随链的合成 聚合酶Ⅲ同时控制
真核生物:过程相似,但由RNA聚合酶Ⅱ起始,且需转录因子, 如TBP, CTF等。
3)转录终止(Termination)
原 核 生 物
终止信号(终止子):AA/UGA, UAG 依赖ρ因子的终止子:ρ附着在新生RNA链上,随全 酶至终止子
不依赖ρ因子的终止子:终止序列中富含G·C碱基对 ,其下游6-8个A(PolyA).RNA上的茎环(发夹)结构
mRNA不加工tRNA、rRNA需加工 mRNA、tRNA、rRNA均 加工
3、DNA序列翻译
翻译(Translation):以mRNA为模板,以氨 基酸为底物,在核糖体上通过各种tRNA, 酶和辅助因子的作用,合成多肽的过程。
mRNA: 5’- AUG.GUG. UUU…-3’
密码子
氨基酸: 3’- Try – Val – Phe –.-5’
单肽链的大分子蛋白质,可被特异的蛋白酶水解为两个片段, 其中的大片段称为Klenow fragment,具有5'→3'聚合酶活性和 3'→5'外切酶的活性。
转录ppt(共66张PPT)
RNA 聚合酶
Ⅰ
Ⅱ
Ⅲ
转录
产物
加工
45SrRNA
18SrRNA 28SrRNA
hnRNA tRNA 5SRNA
snRNA
mRNA
利福平
抑制原核生物的RNA聚合酶
鹅膏蕈碱
抑制真核生物的RNA聚合酶
利福平 主要用于治疗结核病、麻风病等
鹅膏蕈碱 鬼笔鹅膏
三、真核生物的转录产物为单顺
反子
与原核生物不同,真核生物一个转 录单位仅生成一个mRNA分子,经翻 译生成一条多肽链
(三)都形成3’, 5’-磷酸二酯键
二、复制与转录的不同点
模板
原料
酶
校读
复制 两条链 dNTP DNA聚合酶
有
转录 一条链
NTP RNA聚合酶
无
配对
产物
引物
复制
A=T GC
子代双
链DNA
需要
转录
A=U T=A
GC
mRNA tRNA rRNA
不需要
第一节 原核生物的转录
一、转录模板 二、RNA聚合酶 三、模板和酶的辨认结合
第 11 章
RNA的生物合成(转录)
DNA DNA DNA
RNA
蛋白质
中心法则
目录
前 言 复制与转录的异同 第1节 原核生物的转录
第2节 真核生物的转录特点
第3节 真核生物转录后加工
前言 复制与转录的异同
一、相同点 二、不同点
一、复制与转录的相同点
(一)服从碱基配对规则
(二)合成方向都是5’-3’
DNA-dependent RNA polymerase (二)合成方向都是5’-3’ (四)腺嘌呤脱氨成为次黄嘌呤 σ亚基从三元起始复合物上脱落后,核心酶的构象随之发生改变,并沿着模板链的3’→5’方向滑行,进入延长阶段 第1节 原核生物的转录 原核生物的RNA聚合酶仅1种,合成全部RNA 主要用于治疗结核病、麻风病等 真核生物rRNA转录后加工 α2 β β’ ω σ称为全酶