
第三十三章 DNA复制
任何一种DNA解链酶都能够结合DNA,这种结合与 DNA序列无关,这是解链酶作用的前提。大多数解链 酶优先结合DNA的单链区域。
解链酶除了能够结合DNA以外,还能够结合NTP,并 同时具有内在的依赖于DNA的NTP酶活性。
所有的DNA解链酶都具有移位酶活性。其移位酶活性 使得它沿着被结合的DNA链单向移动,以不断地解开 DNA双链区域。
酶从与DNA模板结合到与模板解离的这段时间内 催化参入到DNA链上的核苷酸数目。显然,DNA 聚合酶的进行性越高,催化复制的效率就越高。 聚合酶I的进行性平均值为20nt~50nt,远远低于 DNA复制的实际值。
结论:一定有其他DNA聚合酶。生化学家很 快从polA突变体纯化到新的DNA聚合酶
DNA聚合酶I的功能究竟是什么?
Tom Steitz等得到了Klenow酶的晶体结构
Klenow酶的晶体结构模型
切口平移
DNA聚合酶I所具有的5′→3′聚合酶和5′→3′外切酶活性的联合使用可 导致一个具有切口的DNA分子发生切口平移。如果在切口平移反应 中加入放射性标记的dNTP,则放射性标记的核苷酸会参入到重新合 成的DNA链上,从而使DNA的一条链带上同位素标记。
Okazaki的脉冲标记和脉冲追踪的实验结果分析
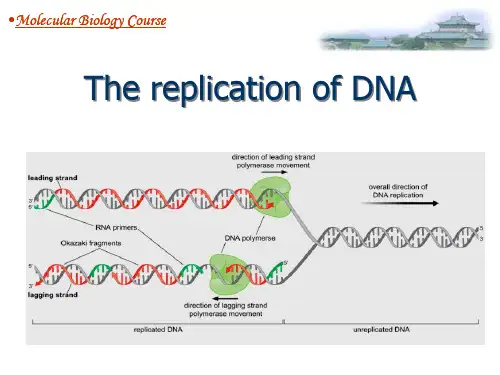
在复制叉中不连续合成的DNA片段称为冈崎片段, 连续合成的DNA子链被称为前导链,不连续合成 的DNA子链被称为后随链或滞后链。
参与DNA复制的主要酶 和蛋白质的结构与功能
① DNA聚合酶 ② DNA解链酶 ③ 单链结合蛋白 ④ DNA引发酶 ⑤ DNA拓扑异构酶 ⑥ DNA连接酶 ⑦ 端聚酶(真核生物特有)
大肠杆菌DnaB蛋白的解链酶活性
单链DNA结合蛋白(SSB)
是一种专门与DNA单链区域结合的蛋白质,为 DNA复制、修复和重组所必需。SSB本身并无 酶活性,但通过与DNA单链区段的结合在DNA 复制、修复和重组中发挥以下几个方面的作用: (1)暂时维持DNA的单链状态,防止互补的 单链在作为复制模板之前重新退火成双螺旋; (2)防止DNA的单链区域自发形成链内二级 结构,以消除它们对DNA聚合酶进行性的影响; (3)包被DNA的单链区段,防止核酸酶对 DNA单链区域的水解;(4)刺激某些酶的活 性。
真核细胞DNA聚合酶α、β、γ、δ和ε的性质和功能
性质 亚细胞定位 引发酶活性 亚基数目 催化亚基的大小(k)
DNA 聚合酶α 细胞核 有
4
160~185
DNA 聚合酶β 细胞核 无
1
40
DNA 聚合酶γ 线粒体基质 无
4
125
DNA 聚合酶δ 细胞核 无
2
125
对dNTPs的Km值(μM) 2~5
按照DNA链的断裂方式,拓扑异构酶被分为I型和II型。I 型在作用过程中,只能切开DNA的一条链,而II型均为寡 聚体蛋白,在作用过程中同时交错切开DNA的两条链,并 能在消耗ATP的同时将一个DNA双螺旋从一个位置经过另 一个双螺旋的裂口“主动运输”到另外一个位置。
II型拓扑异构酶主要参与DNA复制,既可以在DNA分子中 引入有利于复制的负超螺旋,又可以及时清除复制叉前进 中形成的正超螺旋,还能分开复制结束后缠绕在一起的两 个子代DNA分子,其催化的反应依赖于ATP。
生物功能
I
II
III
polA
polB
polC
103
90
130
400
1ቤተ መጻሕፍቲ ባይዱ0
10
16~20
2~5
250~1000
√
√
√
√
×
×
3~200
10 000
500 000
UV敏感、硫酸二 甲酯敏感
无
DNA复制温度敏感型
DNA修复、RNA引 DNA修复 物切除
染色体DNA复制
真核细胞的DNA聚合酶
已在真核细胞中发现至少15种以上的DNA聚 合酶,除了5种发现较早的DNA聚合酶α、β、 γ、δ和ε以外,其他有聚合酶θ、ζ、η、κ、ι、 μ、λ、ψ和ξ,这些新发现的DNA聚合酶一般 缺乏3′-外切酶的活性(θ除外),因此没有校 对的功能,它们主要参与DNA的跨越合成, 以克服损伤对DNA复制的不利影响。
DNA复制的一般特征
① 以原来的DNA两条链作为模板,四种dNTP 为前体,还需要Mg2+
② 作为模板的DNA需要解链 ③ 半保留复制 ④ 需要引物——主要是RNA,少数是蛋白质 ⑤ 复制的方向始终是5′→3′ ⑥ 具有固定的起点 ⑦ 多为双向复制,少数为单向复制 ⑧ 半不连续性 ⑨ 具有高度的忠实性和进行性
Cairns证明大肠杆菌DNA双向复制的实验
Reiji Okazaki的实验
脉冲标记——目的在于即时标记在特定 时段内合成的DNA。
脉冲追踪——目的则是要弄清那些被标 记上的DNA片段后来的去向。
Okazaki的脉冲标记和脉冲追踪的实验
Okazaki的脉冲标记和脉冲追踪的实验结果分析
大肠杆菌SSB与单链DNA结合的协同效应
DNA拓扑异构酶
拓扑异构酶是一类通过催化DNA链的断裂、旋转和重新连 接而直接改变DNA拓扑学性质的酶。此类酶不仅可以解决 在DNA复制、转录、重组和染色质重塑过程中遇到的拓扑 学障碍,而且能够细调细胞内DNA的超螺旋程度,以促进 DNA与蛋白质的相互作用,同时防止DNA形成有害的过度 超螺旋。
其结构十分复杂!!!
大肠杆菌DNA聚合酶III的亚基组成和功能分工
大肠杆菌DNA聚合酶III的结构模型
DNA聚合酶III全酶的滑动钳夹住双螺旋DNA
DNA聚合酶I、II和III的比较
性质 结构基因 分子量(k) 分子数/细胞
Vmax (参入的nt/秒) 3′-外切酶活性 5′-外切酶活性 进行性(nt) 突变体表现型
纯化得到DNA聚合酶I
DNA聚合酶I
一条肽链至少具有三种不同的酶活性! 不可思议!!!
5′→3′外切核酸酶 3′→5′外切核酸酶 5′→3′DNA聚合酶
DNA聚合酶折叠成几个不同的结构域
Hans Klenow 使用枯草杆菌蛋白酶或胰蛋白酶处理 DNA聚合酶I,结果得到大小两个片段:大片段被称 为Klenow片段或Klenow酶,含有大小两个结构域, 其中小结构域具有3′→5′外切酶活性,大结构域具有 5′→3′聚合酶活性;小片段只有5′→3′外切酶活性。
添加碱基还是切除碱基?
DNA聚合酶的聚合和校对
DNA聚合酶家族
已在大肠杆菌中发现5种不同的DNA聚合酶
1. DNAP I: 占聚合酶总活性的90% 2. DNAP II: 在DNA修复中起作用(1999年得到证明) 3. DNAP III: 主要的DNA复制酶 4. DNAP IV: 在DNA修复中起作用(在1999年发现) 5. DNAP V:在DNA修复中起作用(在1999年发现)
复制叉的结构
电镜下真核生物DNA的多个复制叉结构
John Cairns的实验
复制开始时,将大肠杆菌放在含低剂量的[3H]-dT的 培养基中培养几分钟;随后,将细菌转移到含高剂 量的[3H]-dT的培养基中继续培养一段时间;最后, 收集细胞,小心地裂解以抽取其中的染色体DNA进 行放射自显影。如果是单向复制,自显影图谱上银 颗粒的密度应该是一端高、一端低;如果是双向复 制,则应该中间是一段低密度的银颗粒,两侧是高 密度的银颗粒。低密度银颗粒意味着这一段DNA属 于复制起始区,高密度颗粒代表的是后来合成的。
切除引物的酶
RNA引物只是用来起动DNA的复制, 它最终并不存在于被复制的DNA分子 之中,迟早要被除去,实际上,细胞 内有专门的酶负责切除RNA引物。原 核细胞内切除RNA的酶是DNA聚合酶 I或核糖核酸酶H。真核细胞负责切除 RNA引物的酶是RNase HⅠ/FEN1或 FEN1/Dna2。
DNA聚合酶III
“真正”的大肠杆菌DNA复制酶
快:1 000nt/秒/酶 进行性高: >500 000nt 酶量合适 精确 温度敏感型突变体——只能生存在允许温度
(30℃)下,当温度上升到限制温度(45℃) 时,大肠杆菌难以生存。究其原因,是因为编 码聚合酶III α亚基的polC基因发生了突变,致 使该酶对温度变化极为敏感。当环境温度超过 30℃以后,就很容易变性而丧失活性,这时 DNA复制不能正常进行;而在允许温度下,该 酶的活性是正常的,DNA复制也很正常。
在多种需要短DNA合成的过程中起作用 在DNA修复中起主要作用 在DNA复制中,去除RNA引物,并填补随后留下
的空缺。
对DNA聚合酶I更多的认识
为什么具有3′→5′外切核酸酶?
充当校对的功能 去除复制中错配的核苷酸,然聚合酶有机会
重新合成正确配对的核苷酸 聚合酶的活性中心和3′-外切酶活性中心切换?
DNA复制可能的三种方式
由Meselson和Stahl设计证明半保留复 制的实验被誉为生物学最美丽的实验
Meselson 和Stahl的证明DNA半保留复制的实验流程
Meselson 和Stahl的实验结果
Meselson与Stalh在42年以后在最初 他们相遇的一颗树下重逢时的合影
Taylor以蚕豆根尖细胞为材料、使用放射性同 位素证明真核细胞DNA也是半保留复制的实验
DNA复制过程中形成的正超螺旋
DNA拓扑异构酶催化的转酯反应
II型DNA拓扑异构酶的作用机理
DNA引发酶
☺是一种专门用来起动或引发DNA合成 的酶。由于DNA聚合酶本身不能起动 多聚物的合成,只能延伸已经被起动 的多聚物,因此,引发酶是DNA复制 所必需的。因为DNA复制的半不连续 性,故引发酶在前导链上只需引发一 次,而在后随链上则需用引发多次。
5′ 3′
随后的 PPi迅速水解驱动反应的进行
合集下载
DNA复制
当loop被DnaB(解旋酶)打开,在DnaT辅助下 在复制叉处形成 DnaB6•DnaC6•ATP6 DnaB继续解旋,增大解旋的空间, SSB结合到ssDNA上防止退火(Annealing)
拓扑异构酶II在复制叉的上方作用,用来减轻 下方DnaB解旋的压力
The Klenow fragment is the large portion after
cleaving off the 5'-3' exonuclease and has been
used as a polymerase in lab work.
47
Klenow 片段
Klenow fragment
39
拓扑异构酶 Topoisomerase
自然状态下DNA为负超螺旋
拓扑异构酶I用来移除负超螺旋 (热力学过程)
拓扑异构酶II用来增加负超螺旋 (消耗ATP)
过程都是a.剪断DNA链b.重新缠绕 c.封口
不同: I.不需ATP,剪断单链 II.需要ATP,剪断双链
相同: 活性中心为Tyr
拓扑异构酶 I
5’
3’
3’
5’
34
35
冈崎片段 Okazaki fragment
5’ 3’
3’ 5’
36
37
DNA聚合酶III DNA polymerase III DNA聚合酶I DNA polymerase I DNA连接酶 DNA ligase
38
问题: 为什么是5’-3’方向合成? 为什么要用RNA作为起始模板? 如何保证复制的忠实性?
25
DNA的复制方式: 全保留复制 Conservative model
半保留复制 Semiconservative model
《生物化学原理》之DNA复制

第十十一一章 DNA的复制、修复及重组
•・ DNA的复制 •・ DNA的损伤和修复 •・ 遗传重组
↡℩㤐&0#獑 &0#䥥䠀䕊⹇▀叞㤐↡℩獑
RNA
一一、DNA的复制:指亲代DNA链双螺旋解开,分别作为模版, 指导子子代DNA合成的过程。
•・ 半保留复制:DNA复制后产生生的新链中,一一条来自亲代的 DNA,另一一条是新合成的新链。
•・ DNA聚合酶:参与DNA复制的主要酶,它催化四种dNTP 合成DNA双链。 ✦ DNA聚合酶的作用特点:
1.以四种dNTP为底物
2.反 应必须接受模板的指导 3.反应必须有3’-OH的存在 4.反应必须有二二价金金属Mg2+的存在
5.DNA链的合成方方向是从5’➝3’
•・ 复制的起始:DNA复制开始于特定的位置,即DNA的复制 有特定的复制起始点(replication origin)。在起始位点处, DNA双螺旋打开,以两条DNA单链为模版,向两端开始复 制。
双向复制
•・ 复制叉:DNA复制过程中,亲代的DNA双链从复制起点开 始逐步解链,形成一一个分叉状结构,称为复制叉。
和单个酶的直接修复作用。
光修复
•・ 切除修复:指在一一系列酶的催化下,将DNA分子子中受损的 部分切除,并以完整的那条单链为模板,合成切除部分的 过程。
•・ 错配修复:修复在复制过程中错配且没有被校正的碱基。
•・ SOS反应和易错修复:SOS反应是指细胞DNA受到大大面积 损伤或者DNA复制系统受到抑制的情况下的应急效应。
DNA聚合酶Ⅰ的3’➝5’核酸 外切酶活性在DNA复制过 程中起重要的校对作用。
DNA复制

大肠杆菌三种DNA聚合酶比较
DNA聚合酶Ⅰ
结构基因* 不同种类的亚基数 目 相对分子质量 3’→5’外切酶 5’→3’外切酶 聚合速度(核苷酸/ 分) 持续合成能力 功能 Pol A 1 103,000 + + 1,000-1,200 3-200 切除引物,修复
DNA聚合酶Ⅱ
Pol B ≥7 88,000 + - 2,400 1,500 修复
(六)DNA复制的过程:
(以大肠杆菌为例)
复制的起始 复制的延伸: 复制的终止:
复制原点oriC和原点的识别:
DNA的复制有特定的起始位点,叫做复制原点。常用ori C(或o)表示。大肠杆菌的复制原点ori C由245个bp构成,含两 组保守的重复序列:三个13bp的序列(富含A、T的序列)和 四个9bp的序列;许多生物的复制原点也都是富含A、T的区段。
(αβγθτδδ’χΨε),其中(αεθ)称 为核心酶,β2称为夹子,(γ2δδ’χΨ)组成 γ复合物,其主要功能是帮助β亚基夹住DNA, 故称为夹子装配器,该酶DNA合成的持续能力强, 主要与该结构有关。另外,该酶合成速度大,活 性高,缺失时大肠杆菌因DNA复制抑制而致死。 因此认为该酶DNA的真正复制酶。
蛋白质 DNA旋转酶(或拓 扑异构酶) DNA解链酶 单链结合蛋白 引物合成酶 DNA聚合酶Ⅰ 功能 引入或松开超螺 旋 使双链DNA 解链 稳定单链区 合成RNA引物 除去引物并填满 缺口 相对分子量 (×103) 400 65 74 60 109 50 300 100 300 分子/细胞
参与DNA复制 的酶与蛋白因 子总览图
复制中的大肠杆菌染色体放射自显影图
DNA的半保留复制的生物学意义:
DNA的半保留复制表明DNA在代谢上的
第3节 DNA的复制

课前预学区 明确目标 课前准备
目
课中导学区 情境问题 探究体验
录
课堂思学区 学习反思 评价检测
一、对DNA复制的推测 1.半保留复制 (1)提出者:① 沃森和克里克 。 (2)内容:DNA复制时,DNA双螺旋解开,互补的碱基之间的② 氢键 断裂,解开的 ③ 两条单链 分别作为复制的模板,游离的④ 脱氧核苷酸 根据⑤ 碱基互补配对 原则 ,通过形成⑥ 氢键 ,结合到作为模板的单链上。 (3)结果:新合成的每个DNA分子中,都保留了原来DNA分子中的⑦ 一 条链。 2.全保留复制 概念:指DNA复制以DNA双链为模板,子代DNA的双链都是⑧ 新合成的 。
2022
人教版 新教材 必修2
第3章 基因的本质
第3节 DNA的复制
1.通过对探究DNA复制方式的推测及实验的分析,再一次体会假说—演绎法,掌握 科学研究的方法,提升实验探究能力。
2.通过图解分析,构建DNA复制的过程,明确精确复制的原因,达成结构与功能相适 应、模型构建等生命观念和科学思维素养的提升。
对DNA复制的推测及实验验证 活动1 分析假说—演绎法探究DNA半保留 复制方式 1.要想证明DNA的复制方式,关键是什么?
【提示】关键是通过实验区分亲代与子代的DNA。
2.1958年,美国生物学家梅塞尔森和斯塔尔以大肠杆菌为实验材料,运用同位素标记技术, 设计了一个巧妙的实验。结合课本P54“思考·讨论”,回答下列有关问题。
(4)实验第一代只出现一条居中的DNA条带,这个结果排除了哪种复制方式?第二代 出现了中带和轻带两条条带,说明什么? 【提示】全保留复制;说明DNA的复制方式为半保留复制。
DNA半保留复制的实验证据 1.实验方法:同位素标记技术和离心技术。 2.实验原理 (1)DNA的两条链都用15N标记,那么这样的DNA分子密度最大,离心时应该 在试管的底部。 (2)DNA的两条链都没有被15N标记,那么这样的DNA分子密度最小,离心时 应该在试管的上部。 (3)DNA的两条链中只有一条单链被15N标记,那么这样的DNA分子离心时 应该在试管的中部。
DNA的复制PPT课件
结果变性前的杂交分子为一条中密度带,变性后 则分为两条区带,即重密度带(N15-DNA)和低 密度带(N14-DNA)。它们的实验只有用半保留 复制的理论才能得到圆满的解释。
•Molecular Biology Course
(CsCl gradient centrifuge)
N15
DNA
N14
Semi-ConservationReplication
–第三阶段为DNA复制的终止阶段。DNA复制的整个 过程中需要30多种酶及蛋白质分子参加,我们将 在DNA复制的各个阶段着重介绍它们的作用。
•Molecular Biology Course
•Molecular Biology
Course (二)、复制的起始阶段
1、复制的起点 2、复制的方向 3、复制的速度 4、DNA复制起始引发体的形成及所参与的酶和 蛋白质
1、DNA半保留复制的机理 2、DNA的半不连续复制
•Molecular Biology
Course
1、DNA半保留复制的机理
Semi-Conservation Replication
DNA作为遗传物质的基本特点就是在细胞分裂前进行准 确的自我复制,使DNA的量成倍增加,这是细胞分裂的 物质基础。
当用缺乏糖苷酶的大肠杆菌变异株(ung-进行 实验时,尿嘧啶不再被切除。)
此时,新合成的DNA有一半放射性标记出现于岗 崎片断中,另一股直接进入大的片断。由此可 见,当DNA复制时,一条链是连续的,另一条链 是不连续的,因此称为半不连续复制(semidiscontinuous replication) 。
二、复制的起始阶段
•Molecular Biology Course
复制叉( replication fork ):DNA分子中正在进行 复制的分叉部位。它由两条亲代链及在其上新合成的子 链构成。
•Molecular Biology Course
(CsCl gradient centrifuge)
N15
DNA
N14
Semi-ConservationReplication
–第三阶段为DNA复制的终止阶段。DNA复制的整个 过程中需要30多种酶及蛋白质分子参加,我们将 在DNA复制的各个阶段着重介绍它们的作用。
•Molecular Biology Course
•Molecular Biology
Course (二)、复制的起始阶段
1、复制的起点 2、复制的方向 3、复制的速度 4、DNA复制起始引发体的形成及所参与的酶和 蛋白质
1、DNA半保留复制的机理 2、DNA的半不连续复制
•Molecular Biology
Course
1、DNA半保留复制的机理
Semi-Conservation Replication
DNA作为遗传物质的基本特点就是在细胞分裂前进行准 确的自我复制,使DNA的量成倍增加,这是细胞分裂的 物质基础。
当用缺乏糖苷酶的大肠杆菌变异株(ung-进行 实验时,尿嘧啶不再被切除。)
此时,新合成的DNA有一半放射性标记出现于岗 崎片断中,另一股直接进入大的片断。由此可 见,当DNA复制时,一条链是连续的,另一条链 是不连续的,因此称为半不连续复制(semidiscontinuous replication) 。
二、复制的起始阶段
•Molecular Biology Course
复制叉( replication fork ):DNA分子中正在进行 复制的分叉部位。它由两条亲代链及在其上新合成的子 链构成。
DNA复制概述

Replication fork
单林娜 制作
23
• 复制眼(replication eye):电子显微镜 复制眼( ) 下观察正在复制的DNA,复制的区域形如 一只眼睛。
单林娜 制作
24
真核生物的多复制子 多个复制眼
Electron Microscopy of replicating DNA reveals replicating bubbles.
作用下,分别以各单链 DNA分子为模板, 聚合与自身碱基可以互补配对的游离的 dNTP,合成出两条与亲代DNA分子完全相同 的子代DNA分子的过程。
单林娜 制作
4
• 复制子(Replicon,复制单位或复制 复制子(Replicon (Replicon, 元) DNA中含有一定复制起点和复制终
点的复制单位。 • A unit of the genome in which DNA contain a region from origin to terminator • 复制子的长度大小不均,1.3万—90万bp 不等。
---A------A ---T------T
Ungase
尿嘧啶-N-糖基酶 尿嘧啶 糖基酶
ung
A U
A U
denature dump fragment ~ 1200base ~ Okazaki fragment
单林娜 制作
41
以下实验 证实了这个解释 实验 • (1) 在dut- 突变体(dUTPase 缺失)中冈崎片段 比在dut+ 中为短。这是因为U 掺入机会增加; • (2) 在ung- (尿嘧啶N- 糖苷酶缺失)突变体中新 合成的DNA 约有一半由片段组成。这是因为尿嘧 啶N- 糖苷酶缺失,不会切除U 的糖苷链,也就不 会出现AP 位点,所以碱沉淀时不易断裂,从而保 持了半不连续的原貌。
DNA的复制高一生物精品课件(人教版2019必修2)
将遗传信息从亲代传给子代,从而保持遗传信息的连续性。
三、DNA复制的过程
DNA复制的起点和方向 (1)原核生物:单起点双向复制 (2)真核生物:多起点双向复制
在复制速率相同的前提下,图中DNA是从其最右边开始复制的,这种复 制方式提高了DNA复制的效率。
课堂巩固
1.将在含15NH4Cl的培养液中培养若干代的某真核细胞转移到含14NH4Cl的培 养液中培养,让细胞连续进行有丝分裂,并进行密度梯度离心。下列相关说
巩固提升
4.用32P标记了某玉米体细胞(正常体细胞含20条染色体)的DNA分子双链,再将这些细
B 胞转入不含32P的培养基中培养,完成了两次细胞分裂。下列有关叙述错误的是( )
A.在第一次细胞分裂的中期,一个细胞中的染色体总数和被32P标记的染 色体数分别是20和20
B.在第二次细胞分裂的后期,一个细胞中的染色体总数和被32P标记的染 色体数分别是40和40
讨论: 1.碱基互补配对原则暗示DNA的复制机制可能是怎样的?
in the following communications. We were not aware of the details of the results presented there when we devised our structure, which rests mainly though not entirely on published experimental data and stereochemical arguments.
四、DNA复制相关计算
(3)过程:用15N标记细胞的DNA分子,然后将其放到含14N的培养液中进行两次有丝分裂, 情况如图所示:
第一次有丝分裂形成的两个细胞中所有的DNA分子都呈“杂合状态”,即15N/14N-DNA; 第二次有丝分裂形成的子细胞有多种可能性,可能子细胞的所有染色体都含15N,也可能子细胞
高职、专科专用医学生物化学课件--DNA复制
子 (replicon)。 • 复制子是独立完成复制的功能单位。
真核生物多个复制起始点、复制子与复制叉
真核生物的多复制子复制电镜图
三、复制的半不连续性
3
领头链 (leading strand)
5
3
解链方向
随从链 (lagging strand)
5
• 顺着解链方向生成的子链,复制是连续 进行的这股链称为领头链。
基础,但不是绝对的。
二、双向复制 复制时,DNA从起始点(origin)向两个方 向解链,形成两个延伸相反的复制叉,称为 双向复制。
复制时双链打开,分开成两股,各自作
为模板,子链沿模板延长所形成的Y字形的
结构称为复制叉(replication fork) 。
5' 3' 3' 5' 5' 3' 5'
生物化学
Biochemistry
第 九 章
核酸的生物合成
基 因 (gene):
DNA分子中编码蛋白质或RNA的功能 片段,是以碱基排列顺序的方式储存的遗 传信息。 基 因 组(genome): 某一物种拥有的全部遗传物质,从分 子意义上说,是指全部DNA序列。
* 中心法则(the central dogma)
碱基选择与配对
一、原核生物的DNA生物合成
(一)复制的起始
需要解决两个问题: 1. DNA解开成单链,提供模板。
2. 合成引物,提供3-OH末端,形成引发体。
原核生物复制起始的相关蛋白质
蛋白质(基因) 通用名 功能 辨认起始点
DnaA (dnaA) DnaB (dnaB) DnaC (dnaC)
AMP 5’ 3’
第三十三章 反转录病毒
(4)典型AIDS(即免疫缺损期) 有丝分裂 慢性感染→ 微生物抗原 激发因素→增 同种基因细胞Ag 殖性感染→艾滋病相关综合症→各种机会感染 →艾滋病(AIDS,获得性免疫缺陷综合症)
上 腭
下 腭
艾滋病病人与卡波氏肉瘤
特点: (1)潜伏或慢性感染持续存在,通常都有前驱症状, 潜伏期3-5年,5-10年,发病后1-3年死亡。 (2)合并各种机会感染与恶性肿瘤 ①肺部感染 细菌、病毒、原虫、 ②肠炎 致死性 真菌引起 ③神经系统疾病 感染 ④Kaposi肉瘤和恶性淋巴瘤
其他病毒
第一节 狂犬病病毒(rabies virus) 是狂犬病的病原体,在野生 动物及家畜中传播,人被病兽 或带毒动物咬伤而感染。
世界范围内狂犬病的发病概况(2003)
世界范围内未发现狂犬病的地区(2003)
一、狂犬病病毒的生物学性状
the Biological Characteristics of the Rabies Virus
6.抵抗力:弱, 56℃ 10min可被灭活,室温 (20-24℃)存活7天,冻 干血制品,须加热68 ℃ 72小时才能灭活病毒。 对多种消毒剂敏感,如 50%乙醇﹑0.3%双氧水, 10%次氯酸钠﹑10% 漂白粉﹑35%异丙醇﹑ 5%来苏儿等。
二第一节 人类免疫缺陷病毒
(human immunodeficiency virus,HIV)
1983年,法国人(Montagnier 等)首次
分离出淋巴腺病相关病毒(LAV); 1984年,美国人(Gallo等)分离出人类 嗜T淋巴细胞病毒Ⅲ型(HTLV-Ⅲ); 同时Levy及同事也报道了他们对 命名为ARV的逆转录病毒的鉴定; 1986年,国际病毒分类委员会 统一为HIV,为获得性免疫缺陷综合征 (AIDS,艾滋病)的病原体。
DNA的复制课件-高一生物人教版必修2
15NH4Cl
细胞分裂一次
提取DNA离心
亲代
细胞再分裂一次
提取DNA离心
子一代
提取DNA离心
子二代
重带
中带
轻带 中带
实验结果与半保留复制的假说吻合,说明DNA的复制是以半保留复制的方式进行的
二、DNA半保留复制的实验证据
该实验需要进行几次离心观察?
3次
子一代的实验结果,可以排除哪种复制方式?
全保留复制
C.孟德尔预测“F1测交时子代会出现1:1:1:1的性状分离比”属于“演绎推理”
D.梅塞尔森和斯塔尔观察到与演绎一致的现象后,得出“DNA以半保留方式复制”
的结论
1.生物学发展过程中,科学家运用了各种标记技术,并取得了很多
科研成果。下列有关叙述,错误的是( A )
A.1970年科学家用同位素标记法证明了细胞膜的流动性 荧光标记法 B.赫尔希和蔡斯用放射性同位素35S和32P标记的噬菌体分别侵染细 菌,证明了DNA是噬菌体的遗传物质 C.科学家用15N和14N同位素,证明了DNA的复制是半保留的方式进行 D.卡尔文利用14C标记二氧化碳来追踪了光合作用中碳原子的转移途 径
(3)需要消耗的碱基数(脱氧核苷酸数):
设DNA分子中某碱基数为m ①复制n次共需要某碱基的数目= m∙(2n-1)
②第n次复制需要某种碱基的数目 = m∙(2n-2n-1) = m∙2n-1
亲代DNA不需要再 另外消耗碱基
2.1 DNA复制的过程
阅读课本P54思考如下问题:
1.DNA分子复制的概念是什么? 2..DNA分子复制过程需要哪些条件? 3.DNA分子复制过程怎么进行? 4.DNA分子复制的意义?
复制方向
复制方向