
突触可塑性
突触可塑性:多种形式,功能和机制(紫色代表部分重点内容)摘要:不论是来自一堂课所学,一件很有压力的事情或者吃下精神药物,这些形成的感觉都会通过修饰神经的活性和组织特殊的神经回路来影响大脑。
一次经历形成的神经活性修饰大脑功能的主要机制就是通过修饰突触的传递;也就是说:突触可塑性。
这里,我们回顾最近对哺乳动物大脑兴奋性突触的突触可塑性的主要形式的产生机制。
我们也提供那些突触可塑性造成的可能促进的和行为上的功能的例子以及海马区域可塑性是如何导致神经精神紊乱的。
关键词: 长时程增强效应,长时程抑制效应,NMDA受体,AMPA受体,海马,成瘾介绍哺乳动物大脑的一个比较重要和引人注意的特性就是可塑性:通过一次经历修饰神经回路功能形成的神经活性的容量,从而导致接下来想法,感觉和行为的改变。
突触可塑性特指预先存在的突触的突触传递的强度和效能的活性依赖性的修饰,并且一个世纪以来突触可塑性都被认为是大脑将暂时性记忆转变为永久记忆的中心角色。
同时突触可塑性也被认为在神经回路的形成中起到重要作用,并且有证据累积表明突触可塑性的损伤和几种著名的神经精神紊乱相关。
这样子理顺几种任何脑区的突触可塑性的详细分子机制对于理解正常的和病理的脑功能的许多方面的神经基础都很有意义。
了解突触可塑性的多种功能,就会发现有许多种突触可塑性的形式和机制都被描述过了。
通过活动突触传导可以被增强或者抑制,并且这些改变会有一个时间上的延续,从微秒到小时,天或者可能更长的时间。
并且,基本上所有的哺乳动物脑的兴奋性突触都同时表现出一系列的不同突触可塑性的形式。
这里,我们尽量提供一个全面的关于哺乳动物脑兴奋性突触的突触可塑性的著名形式的机制。
简要的回顾突触可塑性的短时程形式后,我们会强调一下近来对细胞机制的理解和长时程增强(LTP)与长时程抑制(LTD)的可能的功能。
短时程突触可塑性:大量形式的短时程的突触可塑性,持续时间从微秒到几分钟,基本上在所观察的所有简单非脊椎动物到哺乳动物的每个突触都发现了(Zucker and Regehr, 2002)。
短时程突触可塑性被认为在下列现象中起主要作用: 感觉输入的短时程适应,行为状态的暂时性改变,短时的记忆形式。
大多形式的短时程突触可塑性都是由短暂的活性的爆发引起,从而引起在突触前膜神经终末Ca2+的暂时性累积。
这个突触前膜Ca2+的增加会反过来导致神经递质释放可能性(p)的改变——通过直接修饰突触小泡胞吐作用的生化过程。
成对刺激易化和抑制当两个刺激在比较短的时间内产生,那么第二个刺激的应答与第一个刺激相比可以被增强或者被抑制(Katz and miledi, 1968; Zucker and Regehr, 2002). 成对刺激抑制在短刺激间隔(小于20ms)时,在所有突触都能被普遍观察到,这最有可能是因为电压依赖Na+或者Ca2+通道的失活,或者突触前终末小泡准备释放池的暂时耗竭。
许多突触在较长的刺激间隔(20-500ms)中表现出成对刺激易化。
对于这种现象的一个简单的解释就是,第一个动作电位时进入细胞内的残留的Ca2+会导致第二次刺激时小泡的额外的释放,但是似乎这里面还涉及到其他的机制。
这些可能涉及到调节突触前膜磷蛋白活性的蛋白激酶的激活。
例如,突触前膜磷蛋白突触蛋白基因被敲除的老鼠会表现出短时程突触可塑性的异常。
突触表现出成对刺激易化还是抑制取决于突触激活的最近的历史。
由于这些形式的突触可塑性很大程度上取决于递质释放可能性(p)的改变,因此以比较高的p起始的突触倾向于抑制第二个刺激的应答(Dobrunz and Stevens, 1997)。
反过来,起始p比较低的突触一般就会表现出第二个刺激应答时p的增加。
坚信这个观点,人为降低p基本上总会引起成对刺激易化的放大甚至成对刺激抑制翻转为易化。
因此,根据突触激活和修饰的最近的历史,同一个突触可以表现出易化或者抑制。
成串刺激的易化和抑制高频(10-200Hz)的成串持续性(200ms-5s)重复或者强直刺激之后可以观察到长时程突触可塑性(Zucker and Regehr, 2002)。
强化和强直后增强(PTP)就描述了递质释放时间从几秒到几分钟的增强过程。
由于刺激时突触前膜内Ca2+的增加,神经递质释放的概率p 也增加。
残留的Ca2+合并接下来单刺激内流的Ca2+直接增强了神经递质的释放,或者导致了突触前终末内蛋白质的生化修饰(Magleby and Zengel,1982; Zucker and Regehr,2002)。
在一些突触内,重复的激活可以导致持续几秒到几分钟的抑制(Betz,1970; Zucker and Regehr,2002)。
在成对脉冲抑制中,抑制一般发生在p比较高的突触中,这被人们解释为或者部分解释为:由于突触小泡准备释放池的暂时耗竭。
突触传递的效能的降低也可以由以下原因造成: 被激活的突触前终末、突触后细胞或者邻近的细胞释放的调节物质,从而导致一个抑制突触前膜释放的信号瀑布。
最后,短时程可塑性突触后膜机制可能与配体门控受体的脱敏有关,从而导致靶神经元对神经递质的敏感性降低。
许多突触抑制中的一个重要特点就是使用依赖性。
高水平的传递和更大的抑制有关,并且基线传递的降低(例如,通过降低胞外Ca2+浓度)可以减轻抑制。
通过突触前受体的传递的修饰大多数突触前终末都拥有很多不同种类的促代谢型G蛋白耦联受体和促离子型受体(MacDermott et al, 1999)。
递质释放的概率p就是断定突触传递效能的一个重要因素,而p 值部分决定于这些受体被结合的程度,而后者则取决于胞外相关受体激动剂的浓度。
虽然如此,通过暂时提高各种突触前神经调质的浓度,突触活性可以进一步增加受体的占用(Thompson et al, 1993;Miller,1998)。
根据它们的特性,这些受体的激活可以增强或者抑制突触的传递。
通过释放一系列不同的神经调质,突触后细胞也可以影响突触前终末递质的释放。
一个普遍的现象就是,当突触后较强去极化时,树突就会释放逆行性信使作用于突触前膜的G 蛋白耦联受体,从而影响递质的释放。
在一些特定的细胞类型中已经被确定的逆行性信使有:多巴胺,强啡肽,谷氨酰胺,GABA,NO,脑衍生神经营养因子(BDNF),催产素。
尽管突触后膜Ca2+通道依赖小泡的融合是逆行性信使释放的一个普遍的机制,逆行性信使也可以通过非小泡的机制释放。
例如,关于介导逆行性信使信号的系统涉及到突触后膜内源性大麻素类的释放,例如:----------------,它们根据需求,通过切割磷脂来合成,并且可以被突触前膜终末的CB1受体识别。
内源性大麻素类释放的机制还不明确,并且这可能还涉及到一个能够易化穿膜的转运体。
通过突触后膜释放大麻素类,这样的逆行性信号传导可以被突触后膜较强的去极化或者促代谢型受体的激活而引发。
同时,已经表明,逆行性信号传导可以在几个脑区暂时性抑制抑制型和兴奋性突触。
重要的是,在纹状体,有一种可以被内源性大麻素类释放所引发的长时程抑制(LTD)的形式。
神经胶质细胞相关的短时程突触可塑性越来越多证据表明神经胶质细胞可能与一些短时程突触可塑性的形式相关。
由于它们和突触很近,星形胶质细胞和突触旁施万细胞可以在位置上很好的调节突触的活动。
它们有确定的清除神经递质的功能,并且很多通过控制这种清除的速度和广度来参与突触的可塑性。
这可以反过来影响突触后膜被激活或者脱敏的程度。
胶质细胞影响突触可塑性的另外一种途径就是:通过感受细胞外的信使,然后释放一些物质反过来直接影响突触的传递效能。
例如,胶质细胞可以表达许多不同的神经递质的受体(例如,谷氨酰胺的受体),当这些受体被激活时,可以释放物质(例如ATP)作用于突触前膜终末从而调节神经递质的释放。
短时程突触可塑性的功能通过对简单有机体(例如,雨虎属)的研究,短时程突触可塑性最初被认为在行为上起到重要作用。
在哺乳动物的大脑,短时程突触可塑性一个重要的结果就是影响突触的信息加工的功能,使这些突触可以表现出有很多特性的过滤器的功能。
例如,起始p比较低的突触在功能上可以作为高通过滤器,这是由于当高频动作电位爆发时它们会易化,而低频的动作电位的爆发将不能以同样的效能传导。
与此相反,起始p比较高的突触在功能上可以作为低通过滤器,这是由于当高频动作电位的爆发时它们会抑制传导,却可以确实地转播低频动作电位的爆发。
突触的滤过特性可以通过改变p来调节。
由于神经调质的释放通过激活突触前膜受体来降低p,而产生过滤功能。
并且它改变了突触的滤过特性,导致易化大于抑制。
这样一来,突触前膜的抑制可以将一个突触从低通过滤器变为高通过滤器。
长时程突触可塑性人们普遍认为,任何类型的经历都会至少部分地修饰后续的行为,通过突触效能的活性依赖的长时程修饰。
大脑将内部和外部发生的事情作为一个复合体进行编码,大量神经元总体的空间-时间模式的活动可以被定义为:神经回路。
定义一个特定神经回路的重要特点就是:构成回路的突触中连接个体神经元的突触比重的模式。
这个假设的推论就是:当一个神经回路中的活动导致一个突触比重模式的长时程的改变时,新的信息(记忆就形成了)就产生了。
这个观点是100年前西班牙诺贝尔获得者Saniago Ramon y Cajal提出的,后来在1940s末被Donald Hebb所发展,他认为脑中相关记忆的形成是通过一个突触修饰的过程,当突触前膜活动与后膜激动相关时,突触修饰加强了联系。
这个提出的关于突触可塑性的功能,形成了发现两个一致性事件的记忆线索,提示了行为现象(例如Pavlovian经典条件反射)的细胞基础。
这种长时程,活性依赖的突触传导效能的改变存在性的实验支持一直是缺乏的,直到1970s早期Bliss和他的同事报道了海马区兴奋性突触的连续性刺激会导致突触传导效能的增强,这种增强可以持续几个小时甚至几天。
在过去三十年,这种现象,最终被定义为长时程增强(LTP),并且开始被人们深入的研究,因为人们普遍认为LTP对于理解记忆形成的细胞和分子机制有重要帮助。
尽管仍然被认为具有代表性,但是现在人们了解到海马区的LTP只是存在于哺乳动物脑中特定回路中几种不同形式长时程突触可塑性的其中一种。
重要的是,明确了,大多数表现出LTP的突触也表现出了一种或几种形式的LTDs。
因此,一个重要的概念就是:兴奋性突触的传递效能可以通过不同的活动形式进行双向修饰。
并且,人们清楚的认识到名词LTP 和LTD描述了这样一个现象,它的机制根据它们作用的神经回路而改变。
最近确定的其他的突触可塑性的形式包括:homeostatic plasticity和metaplasticity. homeostatic plasticity的主要形式就是突触缩放(synaptic scaling), 它描述了:一个给定细胞上的所有突触的传递效能都被活性的长时间改变调节而产生应答。
突触可塑性的生物物理机制与应用研究

突触可塑性的生物物理机制与应用研究第一章突触可塑性的概念和分类突触是神经元之间传递信息的重要结构,突触可塑性是指突触自身或连接其他神经元的能力进行学习和记忆的过程。
突触可塑性的种类有很多种,本章将介绍其中的主要种类。
1.1 短期可塑性短期可塑性是指突触在一定时间内会发生改变,改变后可以恢复到之前的状态。
这种可塑性分为两种:早期和晚期。
早期短期可塑性通常在数秒到数分钟之内发生。
这种可塑性通常由神经递质的释放和突触后响应的改变引起。
例如,在兴奋性突触中,重复刺激会导致短暂的增强(俗称为"后向增强"),这种增强可以持续几秒钟,但不会导致长期更改。
晚期短期可塑性发生在几分钟到几小时之间。
这种可塑性是由于神经递质、受体密度、离子通道和突触传递的信号转导途径发生突触后效应的改变。
例如,在镁离子的存在下,高频刺激可以导致长时间的增强,这种增强可以持续几十分钟,但不会导致永久性的更改。
1.2 长期可塑性长期可塑性是指突触发生持久性改变,可能会持续数小时到数十年之久。
长期可塑性通常发生在大量的突触活动或体验后。
这种可塑性可分为两种主要类型:增强和抑制。
增强性长期可塑性发生在强烈的突触活动后,通常会增加神经递质的释放和突触传递的信号转导途径,以及增加附着于神经递质的受体密度。
增强性长期可塑性通常与学习和记忆有关。
抑制性长期可塑性通常发生在经验量的低活性后,通常会导致神经递质释放和突触传递的信号转导途径的下降。
抑制性长期可塑性通常与逆向学习和遗忘有关。
第二章突触可塑性的实验技术了解突触可塑性的机制需要使用一些实验技术。
下面介绍几种常用的实验技术。
2.1 突触切片实验突触切片实验可以对突触进行操作,提供用于观察其可塑性的条件。
突触切片实验通常是从大脑中取出一部分组织,在显微镜下进行操作,如切片、刺激和膜片钳技术。
这些切片可以用来研究突触前后细胞间连接及其对生理学活动的作用。
2.2 活体实验活体实验是在动物的大脑中进行的。
记忆形成过程中的突触可塑性机制
记忆形成过程中的突触可塑性机制记忆是人类思维和认知能力的核心之一,它使我们能够回忆过去的经历、获取新的知识和技能。
记忆的形成是一个复杂而精确的过程,其中突触可塑性机制发挥着重要作用。
本文将探讨记忆形成过程中突触可塑性的机制,帮助我们更好地理解记忆的神秘世界。
突触可塑性是指突触连接的强度可以改变的一种现象。
突触是神经元之间传递信息的联系点,在控制信息传递过程中起着关键作用。
突触可塑性具有两种主要形式:长期增强(long-term potentiation,简称LTP)和长期抑制(long-term depression,简称LTD)。
LTP是指当突触反复受到刺激时,它的传递效率会增加,即突触连接的强度增强。
LTP通常包括高频刺激引起的短时LTP和持久LTP。
短时LTP主要通过改变突触前神经元释放神经递质的机制来实现,而持久LTP则涉及到突触后神经元中多种细胞内信号通路的激活。
LTP的发生依赖于突触前和突触后神经元之间的相互作用,包括神经递质的释放、突触后细胞内钙离子浓度的升高以及细胞内信号通路的激活。
LTD与LTP相反,是指当突触反复受到低频刺激时,突触传递效率会减弱,即突触连接的强度降低。
LTD的发生依赖于突触前和突触后神经元之间的相互作用,包括神经递质的释放调节、突触后细胞内钙离子浓度的变化以及细胞内信号通路的抑制。
LTP和LTD的相互作用是记忆形成过程中突触可塑性的基础。
LTP的产生可以加强突触的连接,增强特定的神经回路,有助于记忆的保持和巩固。
而LTD的发生则可以减弱某些突触的连接,削弱不必要的信息传递,从而提高记忆的选择性和灵活性。
突触可塑性的机制与神经递质、细胞内信号通路和突触结构的变化密切相关。
神经递质在突触传递过程中扮演着重要角色,它们通过突触前神经元释放,与突触后神经元上的受体结合,进而影响突触连接的强度。
细胞内信号通路则通过激活蛋白激酶和磷酸酶等酶的活性,调节突触连接的强度和稳定性。
突触可塑性

$
Thanks
$
突触可塑性
B7 廖舒敏 刘瑶 郭少燕 孙旭琪
突触可塑性
$
• 运动训练对突触可塑性的影响
• 突触可塑性的研究进展
突触
$
• 突触是神经系统功能活动及传递信息的结构基础,有功能的神经元 间的信息传递必须要有成熟的突触结构。
• 突触功效的提高是通过促进突触前膜释放神经递质和提高突触后膜 的反应性而实现的
• 短期突触可塑性主要包括易化(facilitation),抑制(depression),增
强(potentiation). • 长期突触可塑性主要表现形式为-长时程增强(Long-term potentiation)和 长时程抑制(Long-term depression) 这两者已被公认为是学习记忆活动的细胞水平的生物学基础。
• 突触后可塑性的结构基础是在突触后膜胞质侧的一种超微结构-突触后 致密物(postsynaptic density,PSD)包含有神经递质 受体、 细胞骨架和信号分子
$
• 在 LTP 形成过程中已经发现 PSD 的厚度、 长度与面积增加
运动训练对突触可塑性的影响
•结构的可塑性 1.1突触结构参数 · 突触界面类型及曲率
$
· 突触间隙宽度
· 突触小泡密度 · 突触后膜致密物厚度 · 突触活性带长度 1.2突触线粒体结构和数量 1.3突触数量 •传递的可塑性
2.1突触素
2.2脑源性神经营养因子 2.3NMDA受体(N-甲基-D-天冬氨酸受体)
突触可塑性研究进展
$
• 神经生长相关蛋白 (neuronal growthassociatedprotein ,GAP 43) 和神经细胞黏附因子 (neuralcelladhesionmolecule ,NCAM )与突 触可塑性密切相关
《突触的可塑教学》课件
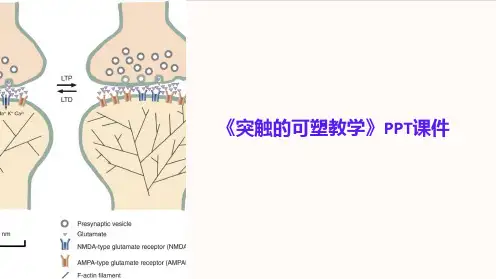
什么是突触?
突触是神经元之间传递信息的地方,分为兴奋性突触和抑制性突触。
突触的可塑性
突触可塑性指突触的连接强度和效率随时间和经验而改变,是学习和记忆的 生理基础。
突触可塑性的应用
教育和培训
突触可塑性在教育和培训中有广泛应用,帮助学生更好地学习和成长。
个性化教育
利用突触可塑性进行个性化教育和差异化教学,满足不同学生的需求。
利用间隔时间进行反复巩固和 复习,加深记忆和理解。
培养学习动机
通过激发学生的内在学习动机, 提高学习的积极性和主动性。
结论
1 有效的教学策略
突触可塑教学是一种有效的教学策略,可以帮助学生取得更好的学习成绩。
2 提高学生的学习成绩和兴趣
突触可塑教学有助于提高学生的学习成绩和兴趣,促进他们的全面发展。
突触可塑教学策略
1
注意力训练
提高学生的注意力集中能力,促进信息的传递和处理。
2
破除固定思维模式
培养学生的创新思维,打破传统的思维模式。
3
练就良好的学习习惯
培养学生良好的学习习惯,提高学习效果和的情境
创造积极的学习环境和情境, 激发学生的学习兴趣和动力。
应用间隙训练
神经科学中的突触可塑性及其意义

神经科学中的突触可塑性及其意义神经科学是研究神经系统功能和结构的学科,突触可塑性则是神经科学中十分重要的研究领域。
突触可塑性是指突触连接的强度和性质随神经系统中的活动而变化的现象,被认为是神经信息传递和学习记忆形成的基础。
本文将阐述突触可塑性的特点、机制以及在神经系统功能、疾病和治疗方面的意义。
一、突触可塑性的特点突触可塑性是指突触连接的强度和性质会随着神经系统中的活动而变化。
这种变化可以持续很长时间,甚至是永久的。
其模式包括增强和抑制。
增强作用是指神经元之间的连接强化,从而使神经元被更容易激活。
抑制作用是指神经元之间的连接变弱,从而使其在之后更难以激活。
突触可塑性是一个高效的神经系统信息传递调节机制,在生物进化过程中具有重要的优势。
例如,大脑可以通过突触可塑性在很短的时间内改变神经元之间的通讯方式,从而对环境做出快速反应,这也是动物在生存和繁衍中不可或缺的生物学基础。
二、突触可塑性的机制突触可塑性的机制主要包括前突触和后突触两个方面。
前突触是指神经元释放到突触前端的神经递质的机制。
细胞内的电流脉冲会引发电压门控的钙通道开放,从而使细胞内的钙离子浓度升高,钙离子能够触发突触前端的囊泡释放神经递质。
神经递质在突触间隙内形成信号,激活相关的拮抗或增强通路。
后突触是指突触后面的神经元为了响应前突触释放的神经递质而释放的信号。
后突触释放的信号主要由第二信使和突触后细胞膜的离子通道控制。
神经递质的作用,通过与神经元中的受体结合而产生影响。
这些受体随时可以被激活或被抑制,从而通过调节神经递质在突触间隙内的浓度和后突触神经元的反应而产生前突触的调节。
三、突触可塑性在神经系统功能、疾病和治疗方面的意义突触可塑性在神经系统功能、疾病和治疗方面的意义具有十分重要的影响。
1. 神经系统功能的意义突触可塑性是神经系统最基本的适应性和学习能力的基础。
在大脑中,突触可塑性是记忆形成和学习的基础。
人们学习新知识时,原有的突触被加强或削弱,从而有效地存储和检索信息。
《突触的可塑性》课件
神经系统疾病
突触可塑性在神经系统疾病 的发展和治疗中起着重要作 用,如神经退行性疾病和精 神障碍。
神经工程学
了解突触可塑性可以为神经 工程学领域的研究和应用提 供重要的指导。
结论
突触可塑性对于神经科学的研究至关重要,进一步的研究将有助于揭示突触可塑性的更多机制和应用。
《突触的可塑性》PPT课 件
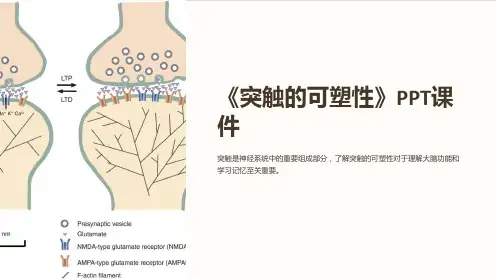
突触是神经系统中的重要组成部分,了解突触的可塑性对于理解大脑功能和 学习记忆至关重要。
பைடு நூலகம்么是突触可塑性
突触可塑性是指突触连接的可变性,它对于学习、记忆和适应环境至关重要。 了解突触的结构和功能有助于理解其可塑性。
短期突触可塑性(STP)
1
表现
短期突触可塑性是临时的,持续时间较短,通常发生在高频刺激下的短时间突触 增强。
突触前神经元释放的神经递质的数量和种类对突触可塑性产生影响。
神经元活动
突触前神经元和突触后神经元之间的活动及其相互作用对突触可塑性起到重要作用。
转运蛋白和囊泡
突触转运蛋白和囊泡的数量和功能也会影响突触的可塑性。
突触可塑性的应用
学习记忆
突触可塑性是学习和记忆的 基础,进一步研究突触可塑 性有助于揭示相关的神经机 制。
2
生理机制
短期突触可塑性与突触前后神经元之间的钙离子浓度变化和神经递质释放相关。
长期突触可塑性(LTP)
1
生理机制
2
长期突触可塑性与突触前后神经元及其 间的分子信号通路之间的改变有关。
表现
长期突触可塑性是持久的,持续时间较 长,通常通过反复刺激突触来增强其传 递信号。
突触可塑性的影响因素
神经递质
神经元可塑性的秘密
神经元可塑性的秘密神经元是构成神经系统的基本单位。
它们以极其复杂的方式相互连接,通过电信号进行信息传递。
然而,神经元并不是静止的实体,而是具有可塑性——即能够适应外界环境并改变其功能和结构的能力。
神经元可塑性的秘密一直是神经科学领域的重要研究方向之一。
可塑性的类型神经元的可塑性可以分为两大类:突触可塑性和细胞可塑性。
突触可塑性突触可塑性指的是突触前后元件之间连接强度发生改变的现象。
具体而言,突触可塑性包括增强突触传输和减弱突触传输两种形式。
增强突触传输(突触增强):当一个突触被高频激活时,突触传输效率会增加。
这种增强可以持续一段时间,并且可以在短时间内产生更大的电流响应。
减弱突触传输(突触抑制):与增强相反,当一个突触被低频激活或者一段时间内没有激活时,突触传输效率会减小。
细胞可塑性细胞可塑性指的是神经元自身特性发生改变的能力。
它涉及到细胞的发育、表达基因、形态结构等方面。
细胞发育:在神经系统发育过程中,神经元会经历不同的阶段。
例如,在婴儿期和青少年期,大脑将会进行快速的发育和重组,以适应新环境。
突触重建:当神经元受到损伤或环境改变时,它们可以通过重新组织、重建或产生新的连接来适应新情况。
表达基因:研究表明,外界刺激可以影响基因表达,并导致神经元特定蛋白质表达量的变化。
这些蛋白质对于调节突触连接和细胞功能至关重要。
神经元可塑性的机制神经元可塑性的机制非常复杂,目前还没有完全解析清楚。
然而,已有许多研究揭示了其中一些关键机制。
突触可塑性机制长时程增益(LTP):LTP是最著名和最广泛研究的突触可塑性机制之一。
当一个突触接收到高频激活时,钙离子通道会打开并导致二级信号路径的改变,进而引起强化效应。
长时程抑制(LTD):与LTP相对应,当一个突触接收到低频激活或一段时间内没有激活时,LTD被诱导并导致突触传输效率降低。
突触结构重构:部分研究表明,在突触可塑性发生时,部分突触可能会增加或减少其数目或大小,并且可以更改有关神经信号传播的部分结构。
突触可塑性的名词解释
突触可塑性的名词解释突触可塑性:是指突触前神经元释放的多巴胺或乙酰胆碱与突触后膜上的一种特异性的神经递质结合而引起的突触后电位,改变了传入冲动的形式和传播速度,进而影响学习和记忆的过程。
上皮神经元的递质是乙酰胆碱和多巴胺,轴突末梢的递质是乙酰胆碱和去甲肾上腺素。
突触传递作用主要是通过改变突触后膜上受体和离子通道对递质的敏感性而实现的,这些受体主要分布在突触后膜和胞浆中,包括许多与递质浓度和离子流动密切相关的离子通道,其中主要包括: h。
但并非全部的突触小泡都能脱颗粒,因为突触后膜上还存在着抑制递质的能力,叫做突触后膜的“门控”系统,其中最主要的是胆碱能受体,它们对于低级胆碱的摄取具有高度的选择性。
另外,突触后膜上还有许多对多巴胺具有高度亲和力的受体,它们与递质结合后可以直接引起膜对na的通透性增加。
由此可见,虽然突触后膜上没有“门”的概念,但当兴奋到达时,可导致整个细胞内ca2内流而致突触后膜对na的通透性增强。
根据突触形成的原理,突触传递可以被归纳为以下几个步骤: 1、递质与突触前膜上特异的受体相结合,引起膜对递质的通透性增强;2、通透性增强使离子内流,而后将突触后膜上的受体与膜上的特异性离子通道结合;3、离子通道将改变膜电位,从而激活下游的钙离子通道和钾离子通道,使后者打开;4、上述的突触后膜改变最终导致细胞外液中的钙离子大量内流,使突触后膜去极化;5、最终是细胞内钙离子大量内流导致动作电位的产生。
突触传递就是以上五个过程的循环反应。
2、抑制,是指细胞[gPARAGRAPH3]会因各种原因引起,一部分对特定离子或递质敏感的突触前膜上的受体的数目减少或功能减弱,从而引起递质与突触后膜上的受体结合减少或消失,甚至完全不能结合,这种状态称为突触的抑制。
比较常见的例子如下:(1)氨基酸类递质抑制( GABAA)当突触前膜上含有代谢性递质(谷氨酸等)时,突触后膜的运动性神经元中的GAM受体数目会减少,突触后膜对递质的敏感性降低,从而使突触后膜的电位改变,最终使突触后膜兴奋性降低,呈现不易兴奋状态,称为突触后膜的抑制。
神经科学中的突触可塑性研究
神经科学中的突触可塑性研究神经科学是研究生物神经系统如何控制行为的科学。
突触是神经元之间连接的关键点,它是神经系统功能的基本单位。
突触可塑性研究是神经科学的一个重要分支,它探究了神经突触连接随时间和环境变化的能力。
突触可塑性的定义突触可塑性是指突触神经元之间的连接强度可以随时间和环境变化的能力。
这意味着突触可以通过一些刺激,在长时间的过程中来改变其传递信息的强度。
例如,长期强化(LTP)和长期抑制(LTD)就是突触可塑性的两种形式。
LTP和LTD简介LTP和LTD是突触可塑性的两种形式。
LTP会增强突触中的某种神经递质的传递效果,这样使得神经元之间的连接更强。
LTD 则会削弱突触中的某种神经递质的传递效果,这样使得神经元之间的连接更弱。
这种调整可以帮助神经元之间更加精细地互动,以达到正确的响应。
突触可塑性的意义突触可塑性的意义在于神经元能够通过学习和记忆来改变连接的强度。
例如,当我们学习一个新技能时,我们的神经元之间的连接可能会改变,这样我们就可以更好地完成任务。
同样的,当我们忘记一件事情时,我们神经元之间的连接也可能会改变,这样我们就可以更加容易地忘记这个记忆。
神经可塑性与神经疾病突触可塑性的研究对于神经疾病的治疗也有重要的意义。
例如,阿尔茨海默病(AD)就是突触可塑性受到损害的疾病。
研究人员通过研究病理性LTP和LTD的过程,已经开始着手研发用于治疗AD的新药物。
这些药物可能会改变神经可塑性的动力学或改善病人的神经可塑性,从而帮助病人恢复正常的神经功能。
突触可塑性研究的进展随着突触可塑性研究的发展,研究人员已经提出了许多对于突触可塑性的机制的分析方法。
其中一种方法是神经元的行为模拟。
通过模拟神经元的活动,研究人员可以更好地了解突触可塑性的机制,包括LTP、LTD和突触清理。
我们现在已经可以对神经系统的运作机制以及神经系统对人类行为的控制方式有更深入的了解。
随着未来神经科学的不断发展,我们可以期待更多突触可塑性相关的发现的出现,这些发现将推动我们更深入地了解大脑,并开发出更好的神经疾病治疗方法。
神经科学研究中的突触可塑性现象
神经科学研究中的突触可塑性现象突触可塑性是指神经元之间的连接在学习和记忆过程中发生变化的现象。
这种现象是神经科学研究中的重要课题,对于我们理解大脑是如何存储和加工信息至关重要。
突触可塑性主要包括长时程增强(LTP)和长时程抑制(LTD)两种形式,这些变化可以持续从几分钟到几年不等。
突触可塑性的发现是在20世纪60年代由神经科学家Tim Bliss和Terje Lømo通过对海兔的突触进行电生理实验而得出的。
他们发现,通过高频刺激突触,可以使突触传递的电信号增强,这种增强可以持续数小时到数天。
这个发现开创了突触可塑性研究的先河,引发了全球范围内的科学家对于这一现象的关注和研究。
在突触可塑性的研究中,神经科学家们探索了多种机制和分子信号调节突触可塑性的过程。
其中一个重要的机制是NMDA受体介导的钙离子内流。
NMDA受体是一种离子通道,当发生突触传递时,需要同时存在刺激性神经递质的释放以及突触膜上的去极化,才能使NMDA受体打开。
这时,钙离子会进入突触细胞,激活一系列的信号转导通路,导致突触可塑性的发生。
此外,神经递质的释放和突触水平的可塑性也密切相关。
典型的神经递质包括谷氨酸、γ-氨基丁酸(GABA)和乙酰胆碱等。
这些神经递质的释放受到突触前和突触后神经元的相互作用和调节。
当兴奋性神经递质释放增加时,突触可塑性往往会增强,而当抑制性神经递质释放增加时,突触可塑性往往会减弱。
这种神经递质调节的平衡关系对于神经元网络的正常功能非常重要。
突触可塑性的研究不仅帮助我们理解学习和记忆的机制,也有助于揭示许多神经系统疾病的发生机制。
例如,突触可塑性的异常可能与阿尔茨海默病、帕金森病以及自闭症等疾病的发生和发展有关。
通过研究突触可塑性,我们可以寻找改善这些疾病的治疗方法,为神经系统疾病的治疗和预防提供新的思路和策略。
近年来,随着神经科学研究的不断深入,突触可塑性以及与之相关的机制和分子通路得到了更加详细和广泛的研究。