
第七章 转录产物的加工修饰及转运降解
Note: I类内含子比II类内含子更普遍,两类之间几乎 无联系。但这两类RNA在体外都能自我剪接, 而不需其它蛋白质提供酶活性。但在体内需蛋白 质帮助折叠。
三类剪接反应总结:
都是按两步酯交换 作用进行:
首先游离羟基进攻 外显子1和内含子结合 处;接着外显子1末端 产生的羟基进攻外显 子2与内含子结合处; 两个外显子相连,内 含子释放。
3)所有tRNA含有稀有碱基。
2.1 前体tRNA的加工
① 3`-OH末端的形成:内切核酸酶降解,RNase D 逐个去除多余核苷酸,核苷酸转移酶催化3′末 端加CCA-OH(如需要的话); ② 5`-P末端的形成:核酸内切酶RNase P作用下, 从5′末端切除多余的核苷酸;
③内含子剪接:核酸内切酶催化剪切反应,剪掉 内含子,由连接酶连接外显子。 ④化学修饰:如甲基化、脱氨基、还原反应。
4 RNA的转运及降解
4.1 真核生物的RNBiblioteka 转运4.2 mRNA的降解
4.1 真核生物的RNA转运
所有在细胞质中起作用的真核生物细胞RNA都要 从细胞核内转运出来; mRNA能被特异性地转运到翻译的位置,在细胞 之间能够被长距离转运。
剪接与mRNA出核相关联
在完成合成和加工后,mRNA以核蛋白复合
3.3 前体mRNA内含子的删除
3.3.1 生物体内内含子的种类 3.3.2 内含子的删除机理 3.3.3 内含子的不同剪接方式
3.3.1 生物体内内含子的种类
内含子类型 GU-AG,GC-AG,AU-AC 细胞内定位 细胞核 细胞器,细菌,低等真核 生物细胞核中
I 类 II 类
双内含子
细胞器,细菌
已,而这只依赖于内含子中的RNA序列。
原始转录产物
自由鸟苷酸的3`-OH作亲核基团攻 击内含子5`端的磷酸二酯键,从上 游切开RNA链
GTP、GDP、 GMP、G RNA剪接中间产物
上游外显子的自由3`-OH作为亲核基 团攻击内含子3`位核苷酸上的磷酸二 酯键,使内含子被完全切开
完成剪接的RNA
I 类 内 含 子 的 自 我 剪 接 过 程
A
10~15%
3.2 mRNA 3`端的多聚腺苷酸化
The 3` ends of mRNAs are generated by cleavage and polyadenylation;The sequence AAUAAA is necessary for cleavage to generate a 3` end for polyadenylation.
人类基因组剪接位点: GU-AG>98% GC-AG< 1% AU-AC≈0.1%
注意:这几种内含子在很多基因组内同时 存在,有时甚至出现在同一条基因里。
(3)I 类内含子和 II类内含子
I 类和II类内含子具自我切割能力。 自我剪接(self-splicing, autosplicing): 像催化作用一样,内含子能从RNA里切下自
腺病毒E1A基因可将多个5`位点 剪接成共同的一个3`位点
黑腹果蝇的tra将一个5`位点 与多个3`位点剪接
(2)顺式剪接和反式剪接
cis-splicing & trans-splicing
顺式剪接:剪接发生在同一条RNA分子上;
反式剪接:剪接发生在不同的RNA分子上。
Trans-splicing occurs only in special circumstances
(RNAase D)
The tRNA 3` end is generated by cutting and trimming followed by addition of CCA; the 5` end is generated by cutting.
The intron in yeast tRNAPhe base pairs with the anticodon loop to change the structure of the anticodon arm.
Pairing of wrong junctions would remove exons
核内RNA完成剪接所需的只是5`位点、3`位点和分 支位点(branch site) UACUAAC 的三个短的一致 性序列。 分支位点位于内含子3`剪接位点18~40个核苷酸处。
Splicing proceeds through a lariat
细胞器
tRNA前体中的内含子 细胞核
3.3.2 内含子的删除机理
(1)GU-AG型内含子 (2)GC-AG型和AU-AC型内含子
(3)I 类内含子和 II类内含子
(1)GU-AG型内含子
Intron-exon boudaries have short consensus sequences in the intron
3.1 mRNA 5`端的加帽 3.2 mRNA 3`端的多聚腺苷酸化 3.3 前体mRNA内含子的删除
Eukaryotic mRNA is modified, processed, and transported
3.1 mRNA 5`端的加帽
Cap 0
100%
G
A
Guanine-7-methyl-transferase 2`-O-methyl-transferase
All of the four bases in tRNA can be modified
2.2 前体rRNA的加工
大部分rRNA是作为单一初始转录 物合成,经加工后产生成熟产物。
真核生物中rRNA前体包括了18 S rRNA、 5.8 S rRNA和28 S rRNA序列。在高等真 核生物中,命名为45SRNA,低等真核生物 中较小(如酵母中为35S)
Splicing of yeast tRNA in vitro can be followed by assaying the RNA precursor and products by gel electrophoresis.
tRNA splicing has separate cleavage and ligation stages
RNA的编辑(RNA editing):
某些RNA,特别是mRNA的一种加工方式, 它导致了DNA所编码的遗传信息的改变(如 单碱基突变)(P95、96)。
RNA的修饰(RNA modification):
有些RNA,特别是前体rRNA和tRNA可 能有特异性的化学修饰(P98)。
3 真核生物mRNA的加工、修饰
第七章 转录产物的加工修饰及转运降解
1 引言--几个重要概念
2 tRNA和rRNA的加工
3 真核生物mRNA的加工、修饰 4 RNA的转运及降解
5 小 结
1 引言-几个重要概念
1.1 基因和顺反子
1.2 断裂基因、内含子和外显子
1.3 hnRNA、 hnRNP 、sRNA
1.1 基因和顺反子
基因(gene): 指能编码独立产物的特有DNA序列。
Splicing releases a mitochondrial group II intron in the form of a stable lariat.
3.3.3 内含子的不同剪接方式
(1)可变剪接
(2)顺式剪接和反式剪接
(1)可变剪接 (alternative splicing )
顺反子(cistron):
指编码一种蛋白质的DNA单位组成。
1.2 断裂基因、内含子和外显子
断裂基因(interrupted gene):
对可表达为蛋白质的基因,如其初始转录产
物与成熟mRNA相比,其间含不能编码为蛋白质
的间隔序列,则这个基因称断裂基因。
interrupted gene 含:
内含子(intron) :断裂基因中,转录但通过将两
Splicing uses transesterification
snRNA是GU-AG型内含子剪接所必需的
参与剪接过程的5个snRNP是U1,U2,U4,U5 和U6。 每个snRNP含一个snRNA 和几种蛋白质。 snRNP和其他一些辅助蛋白共同构成剪接体。
(2)GC-AG型和AU-AC型内含子
内含子
原始转录产物
内含子本身的某个腺苷酸的 2`-OH作为亲核基因攻击内含 子5`端的磷酸二酯键
2`,5`-磷酸二酯键
RNA剪接产物
与3`末端相连 套索结构中的腺苷酸带 有3个磷酸二酯键
上游外显子的3`-OH作亲核基 团攻击内子3`位核苷酸上的磷 酸二酯键,使套索结构完全解离 完成剪接的RNA
II 类 内 含 子 的 自 我 剪 接 过 程
4.2 mRNA的降解
4.2.1 细菌mRNA的降解
4.2.2 真核生物mRNA的降解
mRNA is degraded by exo- and endo- nucleases
4.2.1 细菌mRNA的降解
细菌mRNA的降解总的 方向为5`→ 3`;
降解由两部分组成:核 酸内切酶的切割,以及核 酸外切酶对这些片段从3` → 5`方向的降解。
sRNA (100-300 base, 0-106/cell):
1)snRNA: 细胞核中的小分子RNA称细胞核小RNA (small nuclear RNA)
2)scRNA: 细胞质中小分子RNA称细胞质小RNA
(small cytoplasmic RNA)。
3)snoRNA: 在核仁中存在的一类小的RNA,称为核
rRNA are cleaved from a common precursor
原核生物中前体包括了16S
rRNA、23S rRNA和5S rRNA和
转录后加工名词解释

转录后加工名词解释
转录后加工是指在基因组中进行转录的过程后,对转录产物(RNA分子)进行进一步的修饰和加工的过程。
转录是指在DNA模板上合成RNA分子的过程,而转录后加工则是在RNA分子合成完成后对其进行一系列的修饰和处理。
转录后加工的目的是为了产生成熟的RNA分子,使其能够发挥特定的功能。
在转录后加工过程中,RNA分子经历剪接、修饰和运输等多个步骤,以形成成熟的RNA分子。
剪接是转录后加工中最重要的步骤之一。
在剪接过程中,RNA 分子的内含子(非编码区域)会被剪除,而外显子(编码区域)则会被保留下来。
这样一来,通过剪接,一个基因可以产生多个不同的成熟RNA分子,从而扩大了基因的功能和多样性。
除了剪接,转录后加工还包括其他的修饰过程。
例如,RNA分子可能会经历5'端帽子的添加和3'端的聚腺苷酸尾巴的加入,这些修饰可以保护RNA分子免受降解,并有助于其在细胞内的稳定性和转运过程中的识别。
此外,转录后加工还可以包括RNA编辑、互补RNA合成和核糖体扫描等过程。
RNA编辑是指在转录后,RNA分子中的碱基序列可以发生改变,从而导致RNA分子的信息内容发生变化。
互补RNA合成是指利用RNA分子作为模板合成互补的DNA分子。
核糖体扫描是指RNA分子被核糖体识别并翻译成蛋白质的过程。
总的来说,转录后加工是一系列对转录产物进行修饰和加工的过程,通过这些过程,RNA分子可以获得特定的功能和稳定性,从而发挥其在细胞中的重要作用。
第七章原核生物的基因调控
第七讲原核生物的基因调控科学家把这个从DNA到蛋白质的过程称为基因表达(gene expression),对这个过程的调节就称为基因表达调控(gene regulation或gene control)。
要了解动、植物发展发育的规律、形态布局特征和生物学功能,就必需弄清楚基因表达调控的时间和空间概念,掌握了基因表达调控的奥秘,我们手中就有了一把揭示生物学微妙的金钥匙。
基因表达调控主要暗示在以下几个方面:①转录程度上的调控(transcriptional regulation);②mRNA加工成熟程度上的调控(differential processing of RNAtranscript);③翻译程度上的调控(differential translation of mRNA).原核生物中,营养状况(nutritionalstatus)和环境因素(environmental factor)对基因表达起着举足轻重的影响。
在真核生物尤其是高等真核生物中,激素程度(hormone level)和发育阶段(developmental stage)是基因表达调控的最主要手段,营养和环境因素的影响力大为下降。
二、基因表达调控的底子道理〔一〕基因表达的多级调控基因的布局活化、转录起始、转录后加工及转运、mRNA降解、翻译及翻译后加工及蛋白质降解等均为基因表达调控的控制点。
可见,基因表达调控是在多级程度长进行的复杂事件。
此中转录起始是基因表达的底子控制点。
四个底子的调控点:〔1〕基因布局的活化。
DNA表露碱基后RNA聚合酶才能有效结合。
活化状态的基因暗示为:1.对核酸酶敏感;2.结合有非组蛋白及修饰的组蛋白;3.低甲基化。
〔2〕转录起始。
最有效的调节环节,通过DNA元件与调控蛋白彼此作用来调控基因表达。
〔3〕转录后加工及转运。
RNA编纂、剪接、转运。
〔4〕翻译及翻译后加工。
翻译程度可通过特异的蛋白因子阻断mRNA 翻译翻译后对蛋白的加工、修饰也是底子调控环节。
基因的转录、转录后调控
基因的转录、转录后加工及逆转录转录(transcription) 是以DNA单链为模板,NTP为原料,在DNA依赖的RNA 聚合酶催化下合成RNA链的过程。
与DNA勺复制相比,有很多相同或相似之处,亦有其特点,它们之间的异同可简要示于表13-1转录的模板是单链DNA与复制的模板有较多的不同特点,引出了下列相关概念。
转录过程只以基因组DNA中编码RNA(mRNAtRNA rRNA及小RNA 的区段为模板。
把DNA分子中能转录出RNA的区段,称为结构基因(structure gene)。
结构基因的双链中,仅有一股链作为模板转录成RNA称为模板链(template strand),也称作Watson(W链(Watson strand)、负(-)链(minus strand) 或反意义链(antisense strand) 。
与模板链相对应的互补链,其编码区的碱基序列与mRN的密码序列相同(仅T、U互换),称为编码链(coding strand),也称作Crick (0链(Crick strand )、正(+)链(plus strand),或有意义链(sense strand)。
不同基因的模板链与编码链,在DNA分子上并不是固定在某一股链,这种现象称为不对称转录(asymmetric transcription) 。
模板链在相同双链的不同单股时,由于转录方向都从5'f 3',表观上转录方向相反,如图13-1 o与DNA复制类似,转录过程在原核生物和真核生物中所需的酶和相关因子有所不同,转录过程及转录后的加工修饰亦有差异。
下面的讨论中将分别叙述。
? 参与转录的酶转录酶(transcriptase )是依赖DNA的RNA聚合酶(DNA dependent RNA polymerase,DDRP,亦称为DNA指导的RNA聚合酶(DNA directed RNA polymerase ),简称为RNA聚合酶(RNA pol)。
第七章转录产物的加工修饰及转运降解

类
内
内含子本身的某个腺苷酸的 2`-OH作为亲核基因攻击内含 子5`端的磷酸二酯键
含 2`,5`-磷酸二酯键 子
的
自
RNA剪接产物
我
与3`末端相连
剪
上游外显子的3`-OH作亲核基
套索结构中的腺苷酸带 有3个磷酸二酯键
接
团攻击内子3`位核苷酸上的磷 酸二酯键,使套索结构完全解离
过
程
完成剪接的RNA
Note:
4.2.1 细菌mRNA的降解 4.2.2 真核生物mRNA的降解
mRNA is degraded by exo- and endo- nucleases
4.2.1 细菌mRNA的降解
细菌mRNA的降解总的 方向为5`→ 3`;
降解由两部分组成:核 酸内切酶的切割,以及核 酸外切酶对这些片段从3` → 5`方向的降解。
内含子可以阻止mRNA的出核,因为它们与 剪接装置联系在一起。
Spicing is required for mRNA export
The EJC (exon junction complex) binds to RNA by recognizing the splicing complex.
4.2 mRNA的降解
Splicing releases a mitochondrial group II intron in the form of a stable lariat.
3.3.3 内含子的不同剪接方式
(1)可变剪接 (2)顺式剪接和反式剪接
(1)可变剪接 (alternative splicing )
tRNA splicing has separate cleavage and ligation stages
转录后的加工与修饰

第二节RNA转录后的加工与修饰不论原核或真核生物的rRNAs都是以更为复杂的初级转录本形式被合成的,然后再加工成为成熟的RNA 分子。
然而绝大多数原核生物转录和翻译是同时进行的,随着mRNA开始的DNA上合成,核蛋白体即附着在mRNA上并以其为模板进行蛋白质的合成,因此原核细胞的mRNA并无特殊的转录后加工过程,相反,真核生物转录和翻译在时间和空间上是分天的,刚转录出来的mRNA是分子很大的前体,即核内不均一RNA。
hnRNA 分子中大约只有10%的部分转变成成熟的mRNA,其余部分将在转录后的加工过程中被降解掉。
(一)mRNA的加工修饰原核生物中转录生成的mRNA为多顺反子,即几个结构基因,利用共同的启动子和共同终止信号经转录生成一条mRNA,所以此mRNA分子编码几种不同的蛋白质。
例如乳糖操纵子上的Z、Y及A基因,转录生成的mRNA可翻译生成三种酶,即半乳糖苷酶,透过酶和乙酰基转移酶。
原核生物中没有核模,所以转录与翻译是连续进行的,往往转录还未完成,翻译已经开始了,因此原核生物中转录生成的mRNA没有特殊的转录后加工修饰过程。
真核生物转录生成的mRNA为单顺反子,即一个mRNA分子只为一种蛋白质分子编码。
真核生物mRNA的加工修饰,主要包括对5’端和3’端的修饰以及对中间部分进行剪接。
1.在5’端加帽成熟的真核生物mRNA,其结构的5’端都有一个m7G-PPNmN结构,该结构被称为甲基鸟苷的帽子。
如图17-9所示。
鸟苷通过5’-5’焦磷酸键与初级转录物的5’端相连。
当鸟苷上第7位碳原子被甲基化形成m7G-PPNmN时,此时形成的帽子被称为“帽0”,如果附m7G-PPNmN外,这个核糖的第“2”号碳上也甲基化,形成m7G-PPNm,称为“帽1”,如果5’末端N1和N2中的两个核糖均甲基化,成为m7G-PPNmPNm2,称为“帽2”。
从真核生物帽子结构形成的复杂可以看出,生物进化程度越高,其帽子结构越复杂。
真核生物转录后的加工
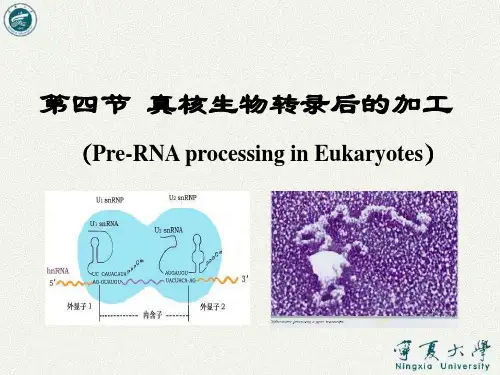
其5´端有一保守序列:3´CAUUCAU-5´。 这一序列可 与内含子5´端的边界序列互补 结合。
U2与分枝点配对
U6 snRNA既能与U4配对 也能与U2配对
U6与mRNA 5´端配对
3、剪接机制(简化)
第一次转酯--左外显子、 内含子剪切套索
第二次转酯--外显子连接、 套索状内含子释放
2、 帽子结构的生物学功能
① 使mRNA免受核酸酶的降解,增加mRNA的稳定性;
② 有助于mRNA越过核膜,进入细胞质;
③被蛋白质起始因子识别,使 mRNA 能与核糖体小亚基
结合并开始合成蛋白质。
(二)3´-端加上多聚腺苷酸尾巴(polyA)
几乎所有真核生物成熟的 mRNA末端都有一串约250个 腺嘌呤核苷酸尾巴。它们并 非模板 DNA 编码,而是在转 录完成时由 poly (A) 多聚酶 合成。加尾位置不在转录物 的最末端,而是在接近末端 的内部位点。在切除 mRNA 3' 末端的一段序列后,再加 上多聚腺苷酸。 加尾是在核内完成 ,先于 mRNA 中 段 的 剪 接 , 和 转 录终止同时进行。
② 协助mRNA从细胞核向细胞质转运。
③作为核糖体的识别信号,使 mRNA分子有效翻译。 ④ 对基因的表达调控有重要作用。
(三)mRNA的内部甲基化
真核生物mRNA分子中有许多甲基化的碱基; 具体的甲基化位点还不太清楚; 主要是:N6-甲基腺嘌呤(m6A); 推测可能为mRNA的剪切提供信号。
转录后加工的主要方式:
加帽(Capping) 加尾(Tailing) 剪接(Splicing ) 碱基修饰(Bases modification) 编辑(Editing )
Pre-RNA
转录过程及转录后修饰
★复习1.什么是转录?2.转录的模板、酶、原料、合成部位及方向、转录特点。
★新授:三、转录过程(一)转录起始阶段1.概况:RNA聚合酶结合到DNA模板;第一个NTP加入形成转录起始物2.相关概念*操纵子:由若干结构基因及其上游的调控序列组成的转录单位。
*启动子:RNA聚合酶全酶与DNA模板结合并启动转录的部位。
3.具体过程⑴根据模板链上核苷酸序列,NTP进入生成与DNA互补的RNA第一、第二位三磷酸核苷⑵RNA聚合酶催化第一、二位三磷酸核苷形成第一个3',5'-磷酸二酯键。
述:通常RNA链起始5'端总是三磷酸嘌呤核苷GTP或ATP,又以GTP更为常见。
4.举例――原核生物的转录起始●全酶(α2 ββ‘σ)结合启动子,σ70 识别-35区●RNA5'第一个核苷酸GTP(ATP)●第一个磷酸二酯键形成:pppGpN-3'OH●转录起始复合物:RNA pol(α2ββ'σ)-DNA- pppGpN-3'OH(二)链的延长1.概况:在起始阶段形成第一个磷酸二酯键后,σ亚基从转录起始物上脱落。
RNA聚合酶核心酶沿模板向下游(3'→5')移动,新生的RNA链按碱基互补配对原则(T→U),以5'→3' 的方向进行延伸。
述:合成的RNA自3'末端逐步延长。
合成出的RNA与DNA 形成杂交分子,约12bp,因结合不紧很易脱离。
随转录的向前进行,RNA链的5'端不断脱离模板链,然后模板链与编码链又恢复双螺旋结构。
2.转录泡:是由DNA双链,RNA聚合酶与新合成的转录本RNA局部形成的结构,它贯穿于延长过程的始终。
(三)转录终止1.概况:RNA聚合酶合成移到终止信号时停止,转录产物RNA从转录复合物中脱落。
2.原核生物转录终止的类型⑴ρ因子参与的转录终止述:r因子与RNA产物中富含C的部位结合,并诱使RNA聚合酶构象改变停止滑动;ρ因子的解螺旋酶活性,利于RNA 产物的释放。
简答
简答2010-01-16 06:220、何为色氨酸操纵子弱化子与转录弱化作用?答:色氨酸操纵子位于转录起始部位的终止子结构称弱化子,色氨酸的浓度决定转录到达弱化子能否形成终止子发夹结构导致转录终止或转录继续。
1.简述乳糖操纵子的正负调控机制答案要点:包括正负调控两种(—)阻遏蛋白的负调控①当细胞内有诱导物时,诱导物结合阻遏蛋白,此刻聚合酶与启动子形成开放式启动子复合物转录乳糖操纵子结构基因。
②当无诱导物时,阻遏蛋白结合与启动子与蛋白质部分重叠不转录。
(=)CAP正调控①当细胞内缺少葡萄糖时ATP→CAMP结合,CRP生成CAP与CAP位点结合,增前RNA聚合酶转录活性。
②当有葡萄糖存在时CAMP分解多合成少,CAP不与启动子上的CAP位点结合RNA聚合酶不与操纵区结合无法起始转录结构基因表达下降。
2.试比较原核和真核细胞的mRNA的异同答案要点:①真核生物5…端有帽子结构大部分成熟没mRNA 还同时具有3‟多聚A尾巴,原核一般没有;②原核的没mRNA 可以编码几个多肽真核只能编码一个。
③原核生物以AUG作为起始密码有时以GUG,UUG作为起始密码,真核几乎永远以AUG作为起始密码。
④原核生物mRNA半衰期短,真核长。
⑤原核生物以多顺反子的形式存在,真核以单顺反子形式存在3基因敲除的基本程序?答:通过DNA同源重组,使得胚胎干细胞特定的内源基因被破坏而造成功能丧失,然后通过胚胎干细胞介导得到该基因丧失的小鼠模型的过程称为基因敲除。
1、打靶载体的构建:同源序列要足够长,要含有筛选用的标志基因。
2、胚胎干细胞的体外培养3、打靶载体导入胚胎干细胞4、同源重组胚胎干细胞的筛选5、基因敲除胚胎干细胞注射入胚泡6、胚泡植入假孕小鼠的子宫中7、杂交育种获得纯合的基因敲除动物、4简述真核生物mRNA的帽子结构及其功能。
当RNA polII 聚合的转录产物达到约25nt长时,在其5‟端加上了一个7-甲基鸟苷(m7G),该7-甲基鸟苷称为帽子结构,是以5‟- 5‟方向相连的,用来防止5‟-外切酶的攻击,但却有利于剪接、转运和翻译的进行。
RNA转录后的加工与修饰
第二节 RNA转录后得加工与修饰不论原核或真核生物得rRNAs都就是以更为复杂得初级转录本形式被合成得,然后再加工成为成熟得RNA分子。
然而绝大多数原核生物转录与翻译就是同时进行得,随着mRNA开始得DNA上合成,核蛋白体即附着在mRNA上并以其为模板进行蛋白质得合成,因此原核细胞得mRNA并无特殊得转录后加工过程,相反,真核生物转录与翻译在时间与空间上就是分天得,刚转录出来得mRNA就是分子很大得前体,即核内不均一RNA。
hnRNA分子中大约只有10%得部分转变成成熟得mRNA,其余部分将在转录后得加工过程中被降解掉。
(一)mRNA得加工修饰原核生物中转录生成得mRNA为多顺反子,即几个结构基因,利用共同得启动子与共同终止信号经转录生成一条mRNA,所以此mRNA分子编码几种不同得蛋白质。
例如乳糖操纵子上得Z、Y及A基因,转录生成得mRNA可翻译生成三种酶,即半乳糖苷酶,透过酶与乙酰基转移酶。
原核生物中没有核模,所以转录与翻译就是连续进行得,往往转录还未完成,翻译已经开始了,因此原核生物中转录生成得mRNA没有特殊得转录后加工修饰过程。
真核生物转录生成得mRNA为单顺反子,即一个mRNA分子只为一种蛋白质分子编码。
真核生物mRNA得加工修饰,主要包括对5’端与3’端得修饰以及对中间部分进行剪接。
1.在5’端加帽成熟得真核生物mRNA,其结构得5’端都有一个m7G-PPNmN结构,该结构被称为甲基鸟苷得帽子。
如图17-9所示。
鸟苷通过5’-5’焦磷酸键与初级转录物得5’端相连。
当鸟苷上第7位碳原子被甲基化形成m7G-PPNmN时,此时形成得帽子被称为“帽0”,如果附m7G-PPNmN外,这个核糖得第“2”号碳上也甲基化,形成m7G-PPNm,称为“帽1”,如果5’末端N1与N2中得两个核糖均甲基化,成为m7G-PPNmPNm 2,称为“帽2”。
从真核生物帽子结构形成得复杂可以瞧出,生物进化程度越高,其帽子结构越复杂。
RNA转录后的加工与修饰
第二节RNA转录后的加工取建饰之阳早格格创做不管本核或者真核死物的rRNAs皆是以更为搀纯的初级转录本形式被合成的,而后再加工成为老练的RNA分子.然而绝大普遍本核死物转录战翻译是共时举止的,随着mRNA开初的DNA上合成,核蛋黑体即附着正在mRNA 上并以其为模板举止蛋黑量的合成,果此本核细胞的mRNA并不特殊的转录后加工历程,差同,真核死物转录战翻译正在时间战空间上是分天的,刚刚转录出去的mRNA是分子很大的前体,即核内不均一RNA.hnRNA分子中约莫惟有10%的部分转形成老练的mRNA,其余部分将正在转录后的加工历程中被落解掉.(一)mRNA的加工建饰本核死物中转录死成的mRNA为多逆反子,即几个结构基果,利用共共的开用子战共共终止旗号经转录死成一条mRNA,所以此mRNA分子编码几种分歧的蛋黑量.比圆乳糖把持子上的Z、Y及A基果,转录死成的mRNA可翻译死成三种酶,即半乳糖苷酶,透过酶战乙酰基变化酶.本核死物中不核模,所以转录取翻译是连绝举止的,往往转录还已完毕,翻译已经开初了,果此本核死物中转录死成的mRNA不特殊的转录后加工建饰历程.真核死物转录死成的mRNA为单逆反子,即一个mRNA分子只为一种蛋黑量分子编码.真核死物mRNA的加工建饰,主要包罗对付5’端战3’端的建饰以及对付中间部分举止剪交.1.正在5’端加帽老练的真核死物mRNA,其结构的5’端皆有一个m7GPPNmN结构,该结构被称为甲基鸟苷的帽子.如图179所示.鸟苷通过5’5’焦磷酸键取初级转录物的5’端贯串.当鸟苷上第7位碳本子被甲基化产死m7GPPNmN时,此时产死的帽子被称为“帽0”,如果附m7GPPNmN中,那个核糖的第“2”号碳上也甲基化,产死m7GPPNm,称为“帽1”,如果5’终端N1战N2中的二个核糖均甲基化,成为m7GPPNmPNm2,称为“帽2”.从真核死物帽子结构产死的搀纯不妨瞅出,死物进化程度越下,其帽子结构越搀纯.图179Posttranscriptional modification of mRNa showing the 7methylguanosine cap and polyA tail.真核死物mRNA 5’端帽子结构的要害性正在于它是mRNa 搞为翻译起初的需要的结构,对付核糖体对付mRNA的辨别提供了旗号,那种帽子结构还大概减少mRNA的宁静性,呵护mRNa 免遭5’中切核酸酶的攻打.2.正在3’端加尾大普遍的真核mRNA 皆有3’端的多散尾巴(A),多散(A)尾巴约莫为200bp.多散(A)屠巴不是由DNA编码的,而是转录后正在核内加上去的.受polyA散合酶催化,该酶能辨别,mRNa 的游离3’OH端,并加上约200个A残基.连年去已知,正在大普遍真核基果的3’一端有一个AATAA序列,那个序列是mRNa 3’端加polyA尾的旗号.靠核酸酶正在此旗号下游1015碱基中切断磷酸二酯键,正在polyA散合酶催化下,正在3’OH上逐一引进100200个A 碱基.闭于polyA尾巴的功能问题纵然通过极其广大的探索,然而还不真足收会.有人推测polyA大概取mRNA从细胞核转收到细胞量有闭,然而是相称数量,的不polyA屠巴的mRNA如组蛋黑mRNA,也照样通过核膜加进细胞量.另有人认为那种结构对付真核mRNA的翻译效用具备某种效用,并能宁静mRNA结构,脆持一定的死物半衰期.3.mRNA前体(hnRNA)的拼交本核死物的结构基果是连绝编码序列,而真核死物基果往往是断裂基果,即编码一个蛋黑量分子的核苷酸序列被多个拔出片断所隔开,一个真核死物结构基果中内含子的数量,往往取那个基果的大小有闭,比圆胰岛素是一个很小的蛋黑量,它结构基果惟有二个内含子,而有些很大的蛋黑量,它的结构基果中不妨有几十个内含子.通过搀纯的历程后,切去内元,将有编码意思的核苷酸片段(Extron 中元也喊中隐子)连交起去(图1710).图1710Primary polymerase 11transcript of a eukaryote gene showing (a)introns after capping and addition of polyA tail.(b)Excision of introns to form the mature mRNA is calledsplicing.真核死物的结构的基果中具备可表黑活性的中隐子,也含有无表黑活性的内含子,然而内含子序列下是偶尔思的,越去越多的真验道明有许多基果中的内含子介进基果表黑调控,正在转录时,中隐子及内含子均转录到hnRNA 中.正在细胞核中hnRNA举止剪交效用,最先正在核酸内切酶效用下剪切掉内含子;而后正在连交酶效用下,将中隐子各部分连交起去,而形成老练的mRNA,那便是剪交效用,也有少量基果的hnRNA不需举止剪交效用,比圆α搞扰素基果,图1711以卵浑蛋黑基果为例,介绍一个典型的转录及加工历程.图1711卵浑蛋黑基果转录及加工历程图中中隐现以1、2、3、4……表示,内含子以A、B、C、D…表示mRNA的拼交,需要正在拼交部位有供拼交识别的守旧性强的普遍程序,通过对付100多种真核细胞基果的分解,创制中元战内元拼交部位部分碱基程序有一定的程序(睹表174).表17-4含有内元的转录产品其拼交处的碱基程序表中划线的碱基对付拼交辨别有要害效用,如将兔的β珠蛋黑的拼交部位的GT改为AT后,拼交反应即受到效用.mRNA前体拼体制图1712The RNA splicing mechanism.RNA splicing iscatalyzed by a spliceosome formed from the assembly ofU1,U2,U5,and sn RNPs(shown as green circles )plus other components (not shown).After assembly of the spliceosome ,the reaction occures in two speps:in step 1the branchpoint Anucleotide in the intron sequence,which is located colse to the 3'splice site ,attacks the 5'splice site and cleaves it;the cut 5'end of the intron sequence thereby becomes covalently linked to this A nucleotide,forming the branched nucleotide shown in Figure 855.In step 2 the 3'OH end of the first exon sequence,which was created in the first step,adds to the beginning of the second exon sequence,cleqving the RNA molecule at the 3'splice site;the two exon sequences are thereby joined to each other and the intron sequence is released ad a ribosone.These splicing reactions occur im the nucleus and gengerate mRNa molecules fromprimary RNA transcripts (mRNA precursor molecules).mRNA拼交反应需要有核内小分子RNA介进它们取蛋黑量产死的复合物称为小核糖核蛋黑颗粒,SnRNA分别被命名为U1,U2,U3,U4,U5,战U6RNA.SnRNA中的U2RNA由取内元左端拼交部位附近的UACUAA程序下度互补,产死一个环状结构,由特定的酶去辨别切除该环状结构,完毕拼交历程,如图1712所示.图1713Mechanim of mRNa splicing.Note that,for clarity,the process is shown in two stages;energy is not required for theprocess since transesterification reactions are involved.真核死物 mRNA前体正在剪交历程中,还不妨产死套索样的结构,正在内含子序列中常有一个分收部位的腺苷酸残基,它的2’OH不妨自动攻打内含子5’端取中隐子1连交的磷酸二酯键,切开了中噗子1,而腺苷酸本去已有3’,5’磷酸二酯键贯串的二个相邻的核苷酸残基,加上此3’,5’磷酸二酯键连交后,正在腺苷酸处出现了一个套索,已被切下的中隐子1的3’OH攻打内含子3’终端取中隐子2之间的3’,5’磷酸二酯键,键断裂后,内含子以套索的形式被节下去,此时中隐子1战中隐子2不妨连交起去(图1713).不管拼交历程怎么样,拼交必须极为透彻,可则会引导遗传疑息传播障碍,合成的蛋黑量大概丧得其平常的功能.尔国北圆广天里区是β天中海贫血的下收区,那是由于β珠蛋黑链的合成受到部分或者真足压制所引起的一种血黑蛋黑病.真验标明β珠蛋黑基果元1中核苷酸的面突变改变了平常拼交部位的碱基程序,截止制成过得部位的拼交.加工老练的mRNA虽能翻译,然而产品不是平常的β珠蛋黑,截止引起血黑蛋黑级结媾战功能的改变.(二)rRNA转录后加工本核死物rRNA转录后加工,包罗以下几圆里:①rRNA前体被大肠杆菌RNaseⅢ,RNaseE等剪切成一定链少的rRNA分子;②rRNA正在建饰酶催化下举止碱基建饰;③rRNA取蛋黑量分离产死核糖体的大、小亚基(睹图1714)图1714大肠杆菌rRNA前体的加工真核死物rRNA前体比本核死物大,哺乳动物的初级转录产品为45s,矮等真核死物的rRNA前体为38s,真核死物5sRNA前体独力于其余三种rRNA的基果转录(图1715).图1715真核死物rRNA前体的加工真核死物rRNA前体中含有拔出程序,rRNA前体要产死老练的rRNA,需要通过拼交反应.比圆,四膜虫的rRNA 前体的拼交是一种无酶催化的自动拼交历程.四膜虫基果组内,26srRNA编码的天区内有413bp的拔出程序.该插搁序列不妨不必耗能量从rRNA前体中被撤除.用SDS煮沸战用蛋黑酶中理等损害酶活性办法,皆不克不迭损害拼交活性,然而反应中Mg2+战鸟嘌呤核苷酸是必正在的.用32PGTP举止逃踪真验标明,起初历程是GTP正在拔出程序5’端爆收亲核反应,共时GMP取5’端切面的切除段产死磷酸二酯键并使本RNA断开.第二步是5’切面的中元3’O H 取3’切面的中元5’P共价连交,赢得老练的rRNA,被切除部分终尾环化,产死一个环状结构,共时从5’端去掉一个15核苷酸啐片.结余部分连交成399核苷酸的环状产品,再通过几步,终尾切下一个19个核苷酸的线性内含子序列即L19,它具备催化活性,上头的剪交效用,是由内含子自己的催化本量决断的(图1716).图1716四膜虫rRNA前体的自尔剪交那种rRNA的自己剪交反应给人们一个提示:即RNA 分子也有酶的催化活性.那背酶的化教真量是蛋黑量那一保守观念提出了挑拨.那种有酶催化活性的RNA分子命名为Ribozyme.T.Cech战S.Altman各自分别创制RNA具备催化效用,他们的创制对付于相识死命举止历程有要害意思.很大概正在本初死掷中,RNA所催化的断裂一连交反应是最早出现的催化历程.为此,他们共共赢得了1989年Nobel化教奖.从大普遍Ribozymw的结构中创制一些特性,比圆:锤头状结构的RNA分子有13个守旧的核苷酸序列,如果它们中的碱基改变会使那种催化活性得去效用.根据那种特片,科教家们正在体中出计并人为合成那种RNA分子,用于抗肿瘤及抗病毒的真验中(图1717).图1717锤头结构模式图(三)tRNA转录后的加工建饰本核死物战真核死物刚刚转录死成的tRNA前体普遍无死物活性,需要举止①剪切战拼交②碱基建饰③3’OH连交ACC结构(图1718).图1718tRNA前体的加工①tRNA前体正在tRNA剪切酶的效用下,切成一定正在小的tRNA分子.大肠杆菌RNase P可特同剪切tRNA前体的5’旁程序,果此,该酶被称为tRNA5’老练酶.除了RNaseP 中,tRNA前体的剪切尚需要一个3’核酸内切酶,那可将tRNA前体3’端的一段核苷酸序列切下去.别的RNaseD是tRNA3’端老练酶.连年去的钻研标明大肠杆菌RNaseP是一种非常特殊的酶分子,它是由RNA战蛋黑量组成,迩去创制RNAaseP分子中的RNA部分正在某些条件下,不妨单独天催化tRNA前体的加工老练,那个创制战四膜虫tRNA 能自尔拼交被认为是近十年去死化范围内最令人饱舞的创制之一.道明RNA分子确具备酶的催化活性.通过剪切后的tRNA分子还要正在拼交酶效用下,将老练tRNA分子所需的片段拼起去.②老练的tRNA分子中有许多的密有碱基,果此tRNA正在甲基变化酶催化下,某些嘌呤死成甲基嘌呤如A→mA,G→mA.有些尿嘧啶还本为单氢尿嘧啶.尿嘧啶核苷转化不假尿嘧啶核苷.某些腺苷酸脱氨基为成为次黄嘌呤核苷酸(Ⅰ)③3’终端加上CCA:正在核苷酸变化酶效用下,3’终端取消各别碱基后,换上tRNA分子统一的CCAOH终端,完毕tRNA分子中的氨基酸臂结构.。