
核小体结构
一、核小体的基本结构
核小体是真核染色质最基本的重复结构单元,除了成熟的精子之外。
它们是真核DNA 最小的打包结构,细胞核内染色体最基本的结构,在控制基因表达方面有着很重要的作用。
它们大概由146个DNA的碱基对以及四对被称为组蛋白的蛋白质组成,当用电子显微镜观察的时候,它们就好像是成串DNA上的水珠。
Don、Ada Olins以及Roger Kornberg在1974年提出的核小体假设是了解真核状态基因表达的一个范例。
组成核小体的蛋白被称为组蛋白H2A, H2B, H3和H4,它们是组成核小体的核心结构,环绕着它们DNA被包裹起来,而组蛋白H1位于核小体的底部,与核小体DNA和连接DNA相互衔接的地方,并沿着DNA延伸到衔接的部位。
通过电子显微镜观察破裂的间期细胞流出的染色质,可以看到染色质纤维呈非连续性颗粒状,就像一条细线上串联着许多有一定间隔的小珠,这些小珠状颗粒被称之谓核小体。
通过酶学方法及对颗粒成分的化学分析,核小体的面目才得以展现。
用一种能使DNA降解的小球菌核酶(micro coccal nuclease)处理提取的染色质,可以得到单个的核小体颗粒.也就是说,这种核酸内切酶将颗粒之间的细线──"裸露"的DNA切断了.在一定酶切条件下,颗粒中所包含的DNA长度总是稳定在200bp左右.DNA片段大小通过凝胶电泳很容易鉴定出来.对染色质进行部分酶解处理,使之产生一系列不同长度的DNA片段,结果发现这些片段之间有一个共同的"阶差",而此"阶差"值恰好等于单个核小体的DNA片段大小,即200nbp左右。
从上述结果不难看出,每个核小体中包含200bp左右DNA片段.以密度梯度离心法制备核小体单体,对其中的蛋白质进行化学分析得知:每一个单体中含有H2A、H2B、H3和H4各二分子(它们构成一个八聚体),H1一分子.而从核小体多聚体、三聚体、四聚体等)获得的分析结果是:相邻多聚体之间的DNA"阶差"等于核小体单体中的DNA长度(200bp左右),且多聚体分子量总是单体分子量的整倍数.通过对多种真核染色体的研究都验证了这一事实,从而得出了核小体是染色体的基本结构单位的结论.核小体重复单位是在所有真核生物中具有普遍意义的染色体基本结构,不同生物(或同种生物的不同细胞)的核小体,其DNA片段长度的有所差别,一种细胞通常有特定的平均值,一般为180--200bp.每一核小体所含的DNA与组蛋白的量大致相等.
二、核小体的功能
染色体的包装实际上是指细胞核DNA在双螺旋基础上的进一步结构变化,巨大的DNA 链要包装成染色体需经多层次的结构变化才能实现.这些结构变化总的看是更高层次的超螺
旋形成.上面讨论的核小体,可视为染色体DNA的一级包装,即由直径2nm的DNA双螺旋链
绕组蛋白形成直径11nm的核小体"串珠"结构.若以每碱基对沿螺旋中轴上升距离为0.34nm 计,200bpDNA(一个核小体的DNA片段)的伸展长度为68nm,形成核小体后仅为11nm(核小体直径),其长度压缩了6-7倍.在低离子强度和去H1组蛋白的条件下,电镜下可清晰地看到染色体一级包装的核小体纤维。
若增大离子强度,并保留H1,通过电镜可观察到10nm纤维会折转成较粗的30nm纤维,这种纤维即染色体DNA的二级包装,目前较公认的二级包装结构模型是螺线管纤维(solenoidalfiber).它是由核小体纤维盘绕形成的一种中空螺线管,其外径为30nm,
每圈含6个核小体,因此,螺线管的形成使DNA一级包装又压缩小6倍.若以充分伸展的DNA 双螺旋论,每个螺线管包含了408nm(6×68nm)长度的DNA链,而每圈螺线管的长度几乎等于
核小体直径,即11nm,故染色体的二级包装相当于将DNA长度压缩了近40倍.H1组蛋白在维持毗邻核小体的紧密度及核小体纤维折转形成螺线管中起了重要作用.
除了在细胞核里面给DNA之间的紧密结合提供支架之外,核小体对于转录也有着很重要的调节作用,在转录启动的初期,核小体能阻止RNA聚合酶接近细胞不需要的成长区域。
当细胞的需求发生改变的时候,染色质重组因子能改变核小体的部位以永续它们的接近。
核小体同时还是染色质边界的标志,通过调节它们中心组蛋白的N-末端能够携带表型遗传信息。
三、核小体中心的结构
除了少许差异,核小体在染色质上基本上200个碱基对重复出现一次。
核小体的中心
包含约146个碱基对组成的双螺旋DNA,这些碱基对在四对组氨酸上形成1.65个左手超螺旋。
另外50个碱基对组成衔接DNA将核小体的中心结构分开。
四对组蛋白(H2A, H2B, H3和H4)有着类似的结构,包含3个分开的alpha螺旋。
在溶液中,这些组蛋白各自形成对,被称为双体或者组蛋白对。
对H3和H4,它们进一步形
成四聚物。
核小体的形成最初源于H3和H4组成四聚体与双螺旋DNA的结合,随后才是
H2A-H2B双体的结合。
从晶体结构中可以看出,核小体八聚体和双螺旋DNA每个10个碱基对即有一个结合点。
每个组蛋白对有3个部位与DNA结合. 每对组蛋白的中心结合点是由其中单个组蛋白
各自形成alpha螺旋与双螺旋DNA的磷酸基团形成氢键。
核小体由核心颗粒(coreparticie)和连接区DNA(linkerDNA)二部分组成.这二部分结构也是通过核酸酶解实验而确定的.核小体单体被小球菌核酸酶处理后,随着时间延长,其降解产
物(DNA片段)会逐渐缩短,从200bp降至146bp至此变为很难进一步降解的稳定状态.对此稳定降解产生进行分析,证明它是由146bp的DNA片段和H2A、H2B、H3和H4各二分子组成,这种结构称为核心颗粒(见图1-19b).而H1总是随着核心颗粒的形成而消失,通常是在
DNA被降解至160bp以后,提取物中H1丢失,提示H1位于"裸露"DNA与核心颗粒的毗邻区.
核心颗粒外,"裸露"的DNA长度为60bp左右,称为连接区DNA.连接区DNA的长度在不同物种差异较大,其范围在10--140bp.
生物物理的有关研究说明,DNA盘绕在组蛋白八聚体的周围,呈很有规律的螺旋状.虽然DNA双链分子位于核心颗粒的外围,但DNA与组蛋白八聚体的这种相互作用,对保护DNA 链免受细胞核中核酸酶的消化十分重要.根据上述结果,我们对核小体的结构可作这样的描述:染色质中的DNA双螺旋链,等距离缠绕组蛋白八聚体形成众多核心颗粒,各颗粒之间为带有H1组蛋白的连接区DNA.这种组成染色质的重复结构单位就是核小体。
[1]核心颗粒外观呈椭圆形,轴比为0.5,颗粒直径11nm,高5.5nm.绕颗粒的DNA长度为
50nm(146bp),连接区DNA长度为20nm(约60bp).
[2](H2A.H2N.H3.H4)2构成的致密八聚体位于颗粒中央,外绕1.75圈左走向的DNA链,每圈约85bpDNA,螺旋间距为2.8nm.组蛋白主要为α-螺旋,处于DNA双螺旋的大沟中.靠静电引力与DNA保持稳定结合.由于空间构象的关系,缠绕在蛋白八聚体上的DNA链并非所有部分都与组蛋白结合.
[3]相邻核心颗粒由连接区DNA连接,其伸展长度约20nm,据认为天然状况下由于核小体是紧挨着的,此一空间距离可能并不存在.H1组蛋白结合在靠核心颗粒的连接区DNA上.
四、核小体和基因调控
核小体是染色质的基本结构单位。
体内外实验均证实, 核小体为基因转录的一个通用抑制子(general repressor)。
由于缺少H4组蛋白,核小体不能形成的酵母细胞系中, 很多基因变
为组成型表达,而在正常的细胞株系中, 它们均处于抑制状态。
但大量的实验结果证明, 核小体的形成和在染色质的精确定位为真核基因的表达所必需。
在MMTVLTR启动子中, 两个GR结合位点(第-175和-83)相距92bp, 由于核小体的形成, 它们正好位于核小体的同一侧面, 在空间上非常接近, 这显然有利于GR的结合, 因而
对基因的诱导表达有利。
果蝇hsp26启动子中,第-51位和第-34位为热休克转录因子(heat shock transcription factor, HSTF) 的识别位点, 由于在第-330至-140区段形成一个核小体,也使得HSTF两个位点在
空间上非常接近。
相似的情况也存在于果蝇ADH(alcohol dehydrogenase)基因和青蛙的卵黄
原基因。
卵黄原基因DNA的-300至-140区段与组蛋白结合形成核小体,转录促进因子(stimulatory transcription factors)、雌激素受体和NF1的结合点分别位于该核小体两侧的-300至-330 和-120至-110位, 核小体的形成或该区段的人工缺失, 均可以使该基因的转录量提
高5~10倍。
因此, 核小体的形成及其在染色质上的精确定位有以下两方面的作用:(1) 提供一个框架(scaffold), 使转录因子之间的信息传递更有效; (2) 染色质结构的不均一性,即其某些区域不形成核小体, 从而保证了转录因子易于接近染色质模板。
染色质是真核生物遗传物质的载体, 真核基因的表达调控显然与染色质的结构改变有关。
染色质的结构在具有转录活性的基因区域确实与基因活性惰性区域有很大的不同,同时, 其结构也存在不均一性,即在启动子或增强子区存在DNaseI超敏感点, 它们为基因的表达
调控所必需。
染色质的重要组成成分-组蛋白,在真核基因的表达调控中也起着非常重要的作用,核小体的形成和正确定位为基因的时空表达提供了重要保证。
虽然这里只简单介绍染色质的结构和部分组成成分与基因表达的关系,但仍然可以领悟染色质结构和功能的高度一致。
核体的概念

核体的概念核体是生物细胞中的一个重要结构,是细胞核中的基本组成单位。
它由核糖核酸(RNA)和蛋白质组成,承担着维持细胞内遗传信息的稳定性和表达,进而调控生物体的生长、发育和分化等重要生命活动。
核体是由两个主要组分组成的:核糖体RNA(rRNA)和蛋白质。
在核体中,rRNA 通过与蛋白质相互作用,在核体的不同部位形成了特定的结构。
根据这些结构的组合方式和大小,核体可以分为核小体和大核体。
核小体是核体中最基本的结构单位,由一条小的单链rRNA分子和大约80种不同的蛋白质组成。
在真核细胞中,每个细胞核通常含有几百到几千个核小体。
核小体被认为是蛋白质合成的主要场所,它们通过rRNA与蛋白质的相互作用,促进了核糖体的形成。
此外,核小体还参与了DNA的复制、修复和DNA损伤应答等重要生物学过程。
大核体是核体中较大的结构单位,由一个或多个核小体组成。
它们通常位于核小体的周围,并与核膜、核纤层和染色质等细胞核组分相互作用。
大核体在细胞核内的位置和构成会发生动态变化,与细胞核内重要的生物学过程密切相关,比如转录、剪接和翻译等。
在特定的细胞内环境下,大核体还能够调控某些基因的表达,从而对细胞生理状态和功能发挥重要作用。
除了核小体和大核体外,细胞核中还存在其他一些核体相关的结构,如核小小体和用于蛋白质翻译的多肽酶体。
核小小体是一种由RNA和蛋白质组成的结构,与核糖体和大核体不同,核小小体主要参与与rRNA的修饰和成熟有关的生物学过程。
而多肽酶体(proteasome)则负责细胞内蛋白质的降解,通过其特定的蛋白酶活性,调控了细胞内蛋白质的稳态平衡。
综上所述,核体是细胞核中的重要结构,通过核糖体RNA和蛋白质的相互作用,参与了核糖体的合成和其他重要生物学过程。
核体的组成和功能在不同类型的细胞和生物体中可能存在差异,但它们在维持细胞内遗传信息稳定性和调控基因表达等方面都发挥着重要的作用。
研究核体的结构和功能对于深入理解细胞核的生物学过程和细胞活动的调控机制具有重要意义。
第2节核酸的分子结构
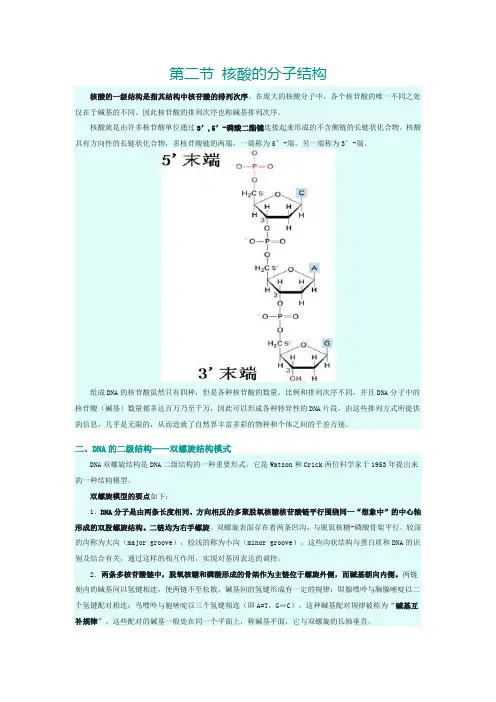
第二节核酸的分子结构核酸的一级结构是指其结构中核苷酸的排列次序。
在庞大的核酸分子中,各个核苷酸的唯一不同之处仅在于碱基的不同。
因此核苷酸的排列次序也称碱基排列次序。
核酸就是由许多核苷酸单位通过3’,5’-磷酸二酯键连接起来形成的不含侧链的长链状化合物。
核酸具有方向性的长链状化合物,多核苷酸链的两端,一端称为5’-端,另一端称为3’-端。
组成DNA的核苷酸虽然只有四种,但是各种核苷酸的数量、比例和排列次序不同,并且DNA分子中的核苷酸(碱基)数量都多达百万乃至千万,因此可以形成各种特异性的DNA片段,由这些排列方式所提供的信息,几乎是无限的,从而造就了自然界丰富多彩的物种和个体之间的千差万别。
二、DNA的二级结构——双螺旋结构模式DNA双螺旋结构是DNA二级结构的一种重要形式,它是Watson和Crick两位科学家于1953年提出来的一种结构模型。
双螺旋模型的要点如下:1.DNA分子是由两条长度相同、方向相反的多聚脱氧核糖核苷酸链平行围绕同一“想象中”的中心轴形成的双股螺旋结构。
二链均为右手螺旋。
双螺旋表面存在着两条凹沟,与脱氧核糖-磷酸骨架平行。
较深的沟称为大沟(major groove),较浅的称为小沟(minor groove)。
这些沟状结构与蛋白质和DNA的识别及结合有关,通过这样的相互作用,实现对基因表达的调控。
2.两条多核苷酸链中,脱氧核糖和磷酸形成的骨架作为主链位于螺旋外侧,而碱基朝向内侧。
两链朝内的碱基间以氢键相连,使两链不至松散。
碱基间的氢键形成有一定的规律:即腺嘌呤与胸腺嘧啶以二个氢键配对相连;鸟嘌呤与胞嘧啶以三个氢键相连(即A=T,G≡C)。
这种碱基配对规律被称为“碱基互补规律”。
这些配对的碱基一般处在同一个平面上,称碱基平面,它与双螺旋的长轴垂直。
正因为两链间的碱基是互补的,所以两链的核苷酸排列次序也是互补的,即两链互为互补链。
当知道一条链的一级结构,另一条互补链也就被确定。
简述核小体的基本结构。
简述核小体的基本结构。
核小体是染色体的基本结构单位,由 DNA 和组蛋白构成。
组蛋白是一类蛋白质,它们围绕着 DNA 分子形成核小体,并在染色体的组装中扮演了重要的角色。
核小体的基本结构如下:
1. 核小体是由组蛋白 H1 结合的。
2. 组蛋白 H1 结合在 DNA 的磷酸基团上,并将其从核小体的核心中释放出来。
3. 一组组蛋白 (包括 H2A、H2B、H3 和 H4) 围绕着 DNA 分子形成核小体。
4. 每个核小体的核心由 8 个组蛋白分子组成,这些组蛋白分子形成了一个称为组蛋白八聚体的复合物。
5. 大约 200 个核小体排列成染色体的基本结构,每个核小体之间的距离约为 1.5 微米。
6. 核小体之间的 DNA 片段被称为染色质,这些染色质片段在细胞内发挥着重要的作用,例如存储和传递遗传信息。
总结起来,核小体是染色体的基本结构单位,它们在细胞内发挥着重要的作用,是细胞内遗传信息存储和传递的关键结构。
核小体

第十九章核小体染色质(Chromatin)具有压缩结构,其中的大部分DNA序列结构上难以接近且无功能活性,仅少数是活性序列。
染色质的一般结构如何?活性序列与非活性序列之间又有什么区别?有关基因物质高包装比(Packing ratio)的研究表明,DNA不能被直接包装成染色质的最终结构,因而必然存在分级包装过程。
在所有真核生物中,染色质的基本亚单位(Subunit)有相同的组成类型。
核小体(Nucleosome)包含200bp的DNA,与小的基本蛋白质的组成八聚物组织成串珠(Bead)状。
此处蛋白质成分是组蛋白(Histone)。
它们形成一个内在核心颗粒,DNA缠绕于其表面。
核小体在核分裂间期常染色质和异染色质与有丝分裂期间的染色体中都是稳定不变的成分。
核小体提供一级结构,其包装比是6,其组成和结构易于描述。
二级结构是由一系列核小体盘绕成螺旋并排列形成30nm纤维,在间期染色质和有丝分裂染色体中都可见到(见图18.9),且使染色质中DNA的包装比高达40。
这种纤维结构还需要其它蛋白质,但目前尚未确定。
最终的包装比由三级结构决定,即纤维自身的包装。
这使异染色质的全包装比达到1000,通过内部周期性改变包装成有丝分裂染色体,使全包装比达到10,000。
通常,异染色质在有丝分裂期和间期包装比为10,000。
我们需要通过对这些包装水平的研究去揭示包装周期、复制和转录的特征。
假设其它蛋白质的加入,或已存在的染色体蛋白质修饰,都包含染色质结构的改变。
我们不知道控制周期性包装的独特目的。
复制和转录都需要DNA解链,必须有非折叠的结构允许相关酶对DNA作用。
这很可能涉及各级结构的改变。
当染色质复制时,核小体在两个子链上都必须重新形成。
与探究核小体自身如何形成一样,我们必须知道染色质中的其它蛋白质发生了什么。
因为复制打开了染色质的结构,同时提出了获得特殊结构位点的问题与改变结构的可能性。
染色质的蛋白质含量是DNA的2倍多。
《细胞生物学》题库参考答案
《细胞生物学》题库参考答案第九章细胞核与染色体一、名词解释1、亲核蛋白一般都含有特殊的氨基酸序列,这些内含的特殊短肽保证了整个蛋白质能够通过核孔复合体被转运到细胞核内,这段具有“定向”,“定位”作用的序列被命名为核定位序列或核定位信号(NLS)。
2、染色质是指间期细胞核内由DNA,组蛋白,非组蛋白以及少量RNA组成的线性复合结构,是间期细胞遗传物质存在的形式。
染色体是指细胞在有丝分裂或减数分裂过程中,由染色质聚缩而成的棒状结构。
3、二级结构是指两条多核苷酸链反向平行盘绕所生成的双盘旋结构。
4、非组蛋白主要是指染色体上与特异DNA序列相结合的蛋白质,所以又称序列特异性DNA 结合蛋白。
5、核型是指染色体在有丝分裂中期的表型,包括染色体数目、大小、形态特征等。
6、用核酸酶与高盐溶液对细胞核进行处理,将DNA、组蛋白和RNA抽取后发现核内仍残留有纤维蛋白的网架结构,将其称之为核基质。
因为它的基本形态与胞质骨架很相似,又与胞质骨架体系有一定的联系,因此也称为核骨架。
7、一个生物储存在单倍染色体组中的总遗传信息,称为该生物的基因组(genome)。
8、常染色质(euchromatin)是指核内染色质纤维折叠压缩程度低,处于伸展状态,用碱性染料染色时着色浅的那些染色质。
9、异染色质(heteromatin)是指核内染色质纤维折叠压缩程度高,处于聚缩状态,用碱性染料染色时着色深的那些染色质。
10、结构异染色质(constitutive heterochromatin)是指各种类型的细胞,除复制期以外,在整个细胞周期均处于聚缩状态,DNA包装比在整个细胞周期中基本没有较大变化的异染色体。
11、兼性异染色质(facultative heterochromatin)是指某些细胞类型或一定的发育阶段,原来的常染色质聚缩,并丧失基因转录活性,变为异染色质。
12、端粒酶(telomerase)是一种核糖核蛋白复合物,具有逆转录酶的性质,一物种专一的内在的RNA作模板,把合成的端粒重复序列在加到染色体的3′端。
核小体
人们接着用化学交联、高盐分离组蛋白,以及X衍射等方法进一步研究组蛋白多聚体的结构、排列以及怎样和DNA结合的,从而建立了核小体模型。1984年Klug和Butler进行了修正。核小体的构造可用图表示:
核小体
每一个核小体结合的DNA总量为200bp左右,一般在150~250变化范围(micrococcal nuclease)轻微消解染色质而得知的。连接两个核小体的连接DNA(linker DNA)是最容易受到这种酶的作用,因此微球菌核酸酶在连接DNA处被切断,此时每个重复单位的DNA长约200bp,而且是和五种组蛋白相结合,保持着核小体的结构。也就是“绳珠”结构的绳被切断,剩下一个一个的“珠”。
电泳的结果和电镜观察到“绳珠”结构之间是什么样的关系呢?Kornberg和Thomas 1974年用实验回答了这一问题。他们先用小球菌核酸酶稍稍消化一下染色质,切断一部分200核苷酸对单位之间的DNA,使其中含有单体、二聚体、三聚体和四聚体等。然后经离心将它们分开。每一组再通过凝胶电泳证明其分子大小及纯度。然后分别用电镜来观察各组的材料;结果单体均为一个100Å的小体,二聚体则是两个相联的小体,同样三聚体和四聚体分别由三个小体和四个小体组成,表明200核苷酸的电泳片段长度级差正好是电镜观察到的一个:“绳珠”单位,他们称其为核小体(nucleosome)或核粒,提出了染色质结构的“绳珠”模型。
所属学科:
生物化学与分子生物学(一级学科);酸与基因(二级学科)
定义2:
组成真核细胞染色体的基本结构单位,由组蛋白和大约200个bp的DNA组成的直径约10 nm的球形小体。其核心由H2A、H2B、H3和H4四种组蛋白各两个分子组成八聚体构成。
所属学科:
细胞生物学(一级学科);细胞结构与细胞外基质(二级学科)
染色质的结构域
染色质的结构域染色质是存在于细胞核中的一种复杂的蛋白质-DNA复合体。
它在细胞的遗传信息传递、基因表达和染色体结构的维持中扮演着重要的角色。
染色质的结构域是指在染色质上具有特定功能和结构的区域,它们在维持染色质的整体结构和功能方面起着关键作用。
本文将介绍染色质的几个重要结构域,包括核小体、染色质环、顶体和异染色质。
1. 核小体核小体是染色质的基本单位,由DNA和多种蛋白质组成。
每个核小体大约由146对碱基的DNA绕绕在一个八聚体的核小体组蛋白核心上形成,核小体组蛋白由H2A、H2B、H3和H4四种互补的组蛋白亚基组成。
核小体通过DNA上的连接片段(linker DNA)相互连接,形成一个线性排列的结构。
核小体的主要功能是将长的DNA分子紧密地组织起来,使得染色质能够在细胞核中有效地储存和传递遗传信息。
2. 染色质环染色质环是染色质的另一种结构形态,它是核小体的高级组织形式。
染色质环是由多个核小体依次排列形成的,相邻的核小体之间通过连接片段相连。
染色质环的形成和稳定受到多种蛋白质的调控。
染色质环的形成使得染色质更加紧密地组织在一起,有利于细胞核内遗传信息的传递和基因表达的调控。
3. 顶体顶体是染色质的一个特殊结构域,它由DNA和一种叫做顶酶的酶类蛋白质组成。
顶体的主要功能是解决染色质的超螺旋问题。
DNA 在染色质中常常会出现过度缠绕的情况,顶体能够通过切割DNA 链条和重新连接来解决这个问题,使得染色质能够更好地进行复制、转录和修复等生物学过程。
4. 异染色质异染色质是染色质的一种特殊状态,它与基因的表达和染色质结构的调控密切相关。
异染色质通常是指在染色质上存在的一些特殊的化学修饰和蛋白质结合,这些修饰和结合可以影响基因的表达和染色质的结构。
例如,DNA甲基化是一种常见的染色质修饰方式,它可以抑制基因的转录。
而一些蛋白质如组蛋白去乙酰化酶(HDAC)则能够与染色质结合,使得染色质更加紧密和不易转录。
细胞生物学 第10章 细胞核与染色体
可变的连接组蛋白(linker histone)即H1。
H1是多样性,具有属(genus)和组织特异性
染色质中的组蛋白与DNA的含量之比为:1∶1。
2. 组蛋白
(2) 功能
核小体组蛋白作用是与DNA组装成核小体
H1不参加核小体的组建, 在构成核小体时起连
接作用,并赋予染色质以极性。
3. 非组蛋白
三、染色质包装的结构模型
(一)染色质包装的多级螺旋模型(multiple coiling model)
但是在电镜下观察用温和方法分离的染色质是直径30nm的
纤维,这种纤维的形成有两种解释:①由核小体螺旋化形
成,每6个核小体绕一圈,长度压缩6倍;②由核小体纤维
Z字形折叠而成,长度压缩40倍。
对运输颗粒大小的限制。
是一个信号识别与载体介导的过程,需消耗
ATP,表现出饱和动力学特征
具有双向性。
爪蟾卵母细胞核质蛋白质注射实验
二、核孔复合体
2. 主动运输 (1) 亲核蛋白运输机制
基本概念
亲核蛋白:在细胞质内合成后,需要或能够进入细胞核 内发挥功能的一类蛋白质 核定位信号(nuclear localization signals,NLS):存在于亲 核蛋白内,具有定向、定位作用的特殊氨基酸序列。 输入蛋白(importin):仅有核定位信号的蛋白质自身不能 通过核孔复合体,它必须与水溶性的NLS受体结合才可 穿过NPC,这种受体称为输入蛋白。
新核膜来自旧核膜������ 核被膜的去组装是非随机的,具有区域特异性 (domain-specific)。������ 核被膜的解体与重建的动态变化受细胞周期调 控因子的调节,调节作用可能与核纤层蛋白、 核孔复合体蛋白的磷酸化与去磷酸化修饰有关。
细胞生物学复习题(精简版)
物质
胞吞泡的大小
转运方式
胞吞泡形成机制
胞饮作用
溶液
小于150 nm
连续的过程
网格蛋白和接合素蛋白
吞噬作用
大颗粒
大于250 nm
受体介导的信号触发过程
微丝和结合蛋白
6、内质网的主要功能有哪些?
(1)内质网(ER)是细胞内蛋白质与脂类合成的基地,几乎全部脂类和多种重要蛋白都在内质网合成的。
(2)糙面内质网(rER):蛋白质合成,蛋白质的修饰与加工,新生肽的折叠与组装。
⑤组蛋白与DNA之间的相互作用主要是结构性的,基本不依赖于核苷酸的特异序列;
⑥核小体沿DNA的定位受不同因素的影响。
(2)支持该模型的实验证据:
①铺展染色质的用电镜观察到解聚的染色质呈11nm串珠状结构。
②用非特异性微球菌核酸酶消化染色质,酶解片段片段是以200 bp为单位。
③应用X射线衍射、中子散射和电镜三维重建技术,发现了核心组蛋白八聚体的结构。
(1)为细胞的生命活动提供相对稳定的内环境;
(2)选择性的物质运输;
(3)提供细胞识别位点,并完成细胞内外信息跨膜传递;
(4)为多种酶提供结合位点,使酶促反应高效而有序地进行;
(5)介导细胞与细胞、细胞与基质之间的连接;
(6)细胞膜参与形成具有不同功能的细胞表面的特化结构。
12、细胞的信号传递是高度复杂的可调控过程,请简述其基本特征。
(2)活性染色质的4种核心组蛋白与非活性染色质相比较,乙酰化程度高;
(3)活性染色质的核小体组蛋白H2B,很少被磷酸化;
(4)核小体组蛋白H2A很少有变异的形式;
(5)组蛋白H3的变种H3.3只在活跃转录的染色质中出现;
(6)HMG14和HMG17只存在于活性染色质中,与DNA结合。
原核生物和真核生物的染色体结构
第二章原核生物和真核生物的染色体结构第一节:大肠杆菌的染色体与大多数细菌一样,大肠杆菌的染色体DNA呈环状,长度大约是1 mm。
大肠杆菌细胞长约2 μm,宽约0.5~1μm。
游离的大肠杆菌染色体DNA将形成无规则的螺旋,其体积大约是细菌细胞的1000倍。
细菌染色体DNA必须经过高度压缩才能适应细胞的体积。
细菌的染色体DNA聚集在一起,在细菌细胞内形成一个较为致密的区域(compact structure),称为类核(nucleoid)。
细菌的染色体DNA形成50-100个环(loops),每个环的长度是50~100 Kb。
环的两端以某种方式固定在蛋白质核心上(scaffold),因此每一个环在拓扑学上是一个独立的结构域(domains )。
第二节:真核生物的染色体和染色质真核生物的基因组DNA被包装成具有一定形态结构的染色体。
每一个染色体具有一条巨大的线性DNA分子。
在真核生物的染色体中,DNA与被称为组蛋白的碱性结合蛋白相结合。
由DNA和组蛋白构成的复合体称为染色质(chromatin)。
一、组蛋白真核细胞中含有5种组蛋白(histones)-H1,H2A,H2B,H3和H4。
组蛋白的氨基酸组成十分特殊,富含带正电的氨基酸,赖氨酸(lysine)和精氨酸(arginine)。
各种组蛋白中有超过20%的氨基酸残基是赖氨酸和精氨酸。
H2A,H2B,H3和H4是相对较小的蛋白质,分子量一般为11~15 KDa,组蛋白H1的分子量约为20 KDa。
组蛋白带正电,它们能够与DNA分子上带负电的磷酸基团通过静电引力(electrostatic attraction)结合在一起。
这种静电引力显然是稳定染色质最主要的因素。
把不同来源的组蛋白混合在一起通常能够实现染色质的重建。
因为,除了H1,来自不同有机体的组蛋白都十分相似。
二、核小体把染色体分离出来,并使其逐渐解压缩,然后在电子显微镜下观察处于不同压缩状态的染色体,发现染色质的基本结构是一种11 nm粗的纤维,就像一根细线上串联着许多有一定间隔的小珠状结构。