
三点测交与染色体作图
(a)
b
c
2125
(+)
+
+
2207
(a)
+
c
273
(+)
b
+
265
(a)
+
+
217
(+)
b
c
223
(+)
+
c
5
(a)
b
+
3
5318
பைடு நூலகம்
非重组 重组 重组 重组
b
18.39 c
3. 绘制染色体图
三点测交与染色体作图
将三个基因包括在一次交配中, 分析测交子代结果,计算出重组值。
表4-2 abc/+++ × abc/abc 测交后代的数据
试验序号 1 2 3 4 5 6 7 8
合计
表型 abc +++ a+c +b+ a++ +bc ++c ab+
实得数 2125 2207 273 265 217 223 5 3 5318
符合(coefficient of coincidence,C;或 称并发系数)
实际获得的双交换类型的数目(或频率) 与理论上期望得到的双交换的类型的数目 (或频率)的比值称为符合系数。
实际双交换值 □符合系数(C)=
理论双交换值
-- 理论双交换值= 两个单交换频率的乘积
干扰值(I)= 1 - C
第三章 连锁遗传分析 与染色体作图
第一节 连锁和交换现象 第二节 交换值及其计算 第三节 伴性遗传研究 第四节 基因定位与染色体作图 第五节 连锁遗传规律的应用
本章学习重 点
遗传的染色体学说 伴性遗传现象的解析 连锁值和交换值的计算 三点测交绘制染色体图
作业:
Page 61:3,4,5
计算方法:
1. 归类; 2. 确定基因在染色体上的直线位置; 3. 计算重组值,确定图距; 4. 绘制染色体图。
1. 归类:实得数最高的为亲本类型(1,2);实 得数最低的为双交换类型(7,8);其余4组为 单交换类型。
序号
表型
实得数
备注
1
abc
2125
2
+++
2207
亲本型
3
a+c
273
单交换I型
3.计算重组值确定图距
Rf(b-c) =[(273+265+5+3)/5318]×100%
=10.26% (10.26 cM)
(a)
b
c
2125
(+)
+
+
2207
(a)
+
c
273
(+)
b
+
265
(a)
+
+
217
(+)
b
c
223
(+)
+
c
5
(a)
b
+
3
5318
非重组 重组 重组 重组
b
10.26 c
b 10.26 c 8.4 a
18.39 ≠ 18.66
实际上a-b间重组配子总数应为 : 273+265+217+223+2×5+2×3=994
Rf(a-b) =(994/5318)×100% =18.66% (18.66cM)
干扰和符合
干扰(interference,I;或称干涉) : 遗传学上把实际观察到的双交换值与理论上 期望得到的双交换值不符的现象称为干扰;
3.计算重组值确定图距
Rf(a-c) =[(217+223+5+3)/5318]×100%
=8.4% (8.4 cM)
(a)
b
c
2125
(+)
+
+
2207
(a)
+
c
273
(+)
b
+
265
(a)
+
+
217
(+)
b
c
223
(+)
+
c
5
(a)
b
+
3
5318
a
8.4
c
非重组 重组 重组 重组
3.计算重组值确定图距
4
+b+
265
5
a++
217
6
+bc
223 单交换II型
7
++c
8
ab+
5 双交换型
3
合计
5318
2. 确定基因在染色体上的直线位置
用双交换型与亲本类型相比较,发现只 有基因c变换了位置,可以断定这3个基因的 排列顺序是a c b。
亲本型: a b c + ++
双交换型:+ + c a b+
a
c
b
实际双交换值=(8/5318)100%=0.15% 理论双交换值=8.4%×10.2%=0.86% 符合系数(C) = 0.15% / 0.86% =0.17 干扰值(I) = 1 - 0.17 = 0.83 = 83%
符合系数反映了干扰作用的大小。上 例中的数据表明有83%的双交换被干 扰掉了。既染色体一个区段的交换干 扰了另一个区段的交换。
果蝇的三点测交与遗传作图
基因图距就是通过基因间重组值的测定而得到的。
如果基因座位相距很近,重组率与交换率的值相等,直 接将重组值作为基因图距;如果基因间相距较远,两个基 因间往往发生两次以上的交换,必须进行校正,来求出基 因图距。
三点测交:用三杂合体和三隐性个体杂交,获得三因子杂种 (F1),再使F1与三隐性基因纯合体测交,通过对测交后代 表现型及其数目的分析,分别计算三个连锁基因之间的交换值, 从而确定这三个基因在同一染色体上的顺序和距离。通过一次 三点测验可以同时确定三个连锁基因的位置,即相当于进行三 次两点测验,而且能在试验中检测到所发生的双交换。
2、7d后,释放杂交亲本(一定要干净); 3、再过4-5天,F1成蝇出现,在处死亲本7天后,集中观
察记录F1表型及性别。 4、选取5对F1代果蝇,转入一新培养瓶,于25℃培养,
其余F1代果蝇处死; 5、7d后,处死F1亲本; 6、再过5d,F2成蝇出现,开始观察记录,连续统计7d,
观察眼色,翅形及刚毛形态。正交只需统计雄性个体。
三隐性个体为白眼(w)、小翅(m)、焦刚毛(sn3), 这三个基因都位于X染色体上。
三、实验仪器设备:
体视显微镜、恒温培养箱、培养瓶、麻醉瓶、 毛笔、滤纸、培养皿
四、实验原理:
位于同一条染色体上的基因是连锁的,而同源染色体上 的基因之间会发生一定频率的交换,使子代中出现一定数 量的重组型。
重组型出现的多少反映出基因间发生交换的频率的高低。
其雌性个体F2代个体的表型如何?
交
P:
m sn3 w
×
++ +
m sn3 w
【学习】第四章连锁遗传分析与染色体作图-第三章连锁遗传分析与染色体作图(1)

要点:
(1). 减数分裂前期的粗线期,非姊妹染色 单体之间由于在粗线期发生交换(crossing over) 而在双线期出现交叉(chiasma)。
整理课件
整理课件
(2). 相互连锁的两个基因之间如发生交换,会 导致这两个基因发生重组。
A
4、互引相和互斥相
(1)相引是两个基因位于同一条染色体上, 相斥则反之。
(2)同源染色体在减数分裂时发生交换 ( crossing-over )
(3)位置相近的因子相互连锁。(孟德尔遗传 的随机分离与相引Science,191134.384)
整理课件
5、 交换
1).交换的机制: Janssens, 1909
人类 果蝇
整理课件
7、连锁交换定律
摩尔根
遗传学第三大定律:连锁交换定律。
内容:
处在同一染色体上的两个或多个基因联合 在一起传入子代的频率大于重新组合的频率. 重组类型的产生是由于配子形成时,同源染色 体的非姊妹染色单体间发生了局部交换的结果。
整理课件
8、三大遗传定律的关系
1. 分离定律是自由组合定律和连锁交换定律的基础; 2. 自由组合定律和连锁交换定律是生物体遗传性状发 生变异的主要机制; 3. 自由组合与连锁交换的区别:
B 交换 A
b
a
b
a
B
发生过交换的性母细胞产生的配子,只有一半是 重组子,另一半是亲组合型。
A
B
复制
A A
B 交换 B
A A
B b
a
b
a
b
aB
a
b
a
b
交换的特点: 整理课件
三点测验课件.ppt

四、实验数据的分析方法 1. 确定子代表型、基因型及各类型的数量 2. 确定位于中间位置的基因 3. 计算交换率 4. 确定基因的顺序及它们之间的遗传距离
三点测验
一、概念:仅用一次杂交及一次测交实验即可以确定三个基因 之间的顺序及其它们之间遗传距离
二、三点测验理论基础:
理论基础:基因之间的交换率确定基因之间的遗传距离
(黄 正 白)
双
y+
交
(橙
换
y
组
(黄
合计(Total)
ec+ w 正 白)
ec w+ 棘眼 红)
子代数目 百分比 交换(Crossing over) (Number)(Percentage)发于区域
y-ec ec-w y-w
4759 4685
9444 94.44%
80
150
70
1.50%
207
400
y-ec y-w ec-w
其工作量增加了3倍。
有没有更简单的办法来确定这三个基因之间的顺序及遗传距离?
三点测验
• 概念:仅用一次杂交及一次测交实验即可以确定三个基因 之间的顺序及其它们之间遗传距离
三点测验设计及子代类型
P
x
杂交 Cross
F1
x
测交
Testcross
F2 亲本类型 单交换类型 单交换类型 双交换类型
三点测验
一、概念:仅用一次杂交及一次测交实验即可以确定三个基因 之间的顺序及其它们之间遗传距离
二、三点测验理论基础:
理论基础:基因之间的交换率确定基因之间的遗传距离
三、三点测验设计
1.杂交 材料选择:
P
遗传学实验报告——果蝇杂交实验
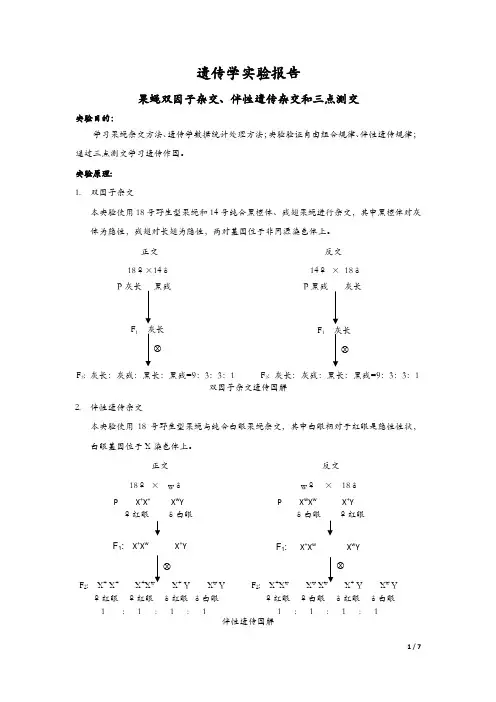
遗传学实验报告果蝇双因子杂交、伴性遗传杂交和三点测交实验目的:学习果蝇杂交方法、遗传学数据统计处理方法;实验验证自由组合规律、伴性遗传规律;通过三点测交学习遗传作图。
实验原理: 1. 双因子杂交本实验使用18号野生型果蝇和14号纯合黑檀体、残翅果蝇进行杂交,其中黑檀体对灰体为隐性,残翅对长翅为隐性,两对基因位于非同源染色体上。
正交 反交18♀×14♂ 14♀ × 18♂双因子杂交遗传图解 2. 伴性遗传杂交本实验使用18号野生型果蝇与纯合白眼果蝇杂交,其中白眼相对于红眼是隐性性状,白眼基因位于X 染色体上。
正交 反交18♀ × w ♂ w ♀ × 18♂伴性遗传图解F 1⊗F 2: 灰长:灰残:黑长:黑残=9:3:3:1P灰长黑残F1⊗ F 2: 灰长:灰残:黑长:黑残=9:3:3:1 灰长P 黑残P X +X + X w YP X w X w X+YF 1: X +X w X +YF 1: X +X w Xw Y⊗ ⊗F 2: X + X + X +X + Y X w Y ♀红眼 ♀红眼 ♂红眼 ♂白眼 1 : 1 : 1 : 1 F 2: X +X w X w X X + Y X w Y ♀红眼 ♀白眼 ♂红眼 ♂白眼 1 : 1 : 1 : 1♀红眼♂白眼 ♂白眼♀红眼3. 三点测交本实验使用6号纯合白眼、卷刚毛、小翅果蝇与18号野生型果蝇杂交,获得F 1代后再自由交配即可获得具有8种表型的测交F 2代。
白眼、卷刚毛、小翅均为X 染色体上的隐性性状。
P 6号♀(wsnm/wsnm ) × 18号♂(+++/Y)白卷小红直实验材料:18号野生型果蝇 ,14号纯合黑檀体、残翅果蝇,白眼果蝇,6号纯合白眼、卷刚毛、小翅果蝇;麻醉瓶、酒精灯、玻璃板、毛笔、培养管、酒精棉球、乙醚、解剖镜 实验步骤:1. 杂交前提前将装有不同表型果蝇培养管中的成年果蝇全部放出,确保8-10小时后培养管中的雌果蝇都是刚刚孵化的处女蝇。
遗传学3连锁与染色体作图共62页

1、合法而稳定的权力在使用得当时很 少遇到 抵抗。 ——塞 ·约翰 逊 2、权力会使人渐渐失去温厚善良的美 德。— —伯克
3、最大限度地行使权力总是令人反感 ;权力 不易确 定之处 始终存 在着危 险。— —塞·约翰逊 4、权力会奴化一切。——塔西佗
5、虽然权力是一头固执的熊,可是金 子可以 拉着它 的鼻子 走。— —莎士 比
6、最大的骄傲于最大的自卑都表示心灵的最软弱无力。——斯宾诺莎 7、自知之明是最难得的知识。——西班牙 8、勇气通往天堂,怯懦通往地狱。——塞内加 9、有时候读书是一种巧妙地避开思考的方法。——赫尔普斯 10、阅读一切好书如同和过去最杰出的人谈话。——笛卡儿
Thank you
பைடு நூலகம்
三点测交与染色体作图
置。
遗传规律
03
通过三点测交实验结果,可以分析基因之间的遗传规律,如独
立遗传、连锁遗传等。
染色体作图结果分析
染色体结构
通过染色体作图,可以观察染色体的形态和结构,了解染色体变 异和异常。
基因位置
染色体作图可以确定基因在染色体上的位置,为基因定位提供依 据。
染色体数目和组型
通过染色体作图,可以分析染色体数目和组型,了解染色体数目 变异和染色体组型异常。
测交在遗传学研究中具有重要意义,可以帮助科学家了解基 因型与表现型之间的关系,验证基因的分离定律和独立分配 定律等遗传学规律。
三点测交的原理
三点测交是一种特殊的测交方法,用于检测三个基因位点 的遗传规律。通过将待测个体与三个隐性基因位点的纯合 子进行杂交,观察后代的表现型,可以推断待测个体在三 个基因位点上的基因型。
染色体作图的方法
遗传作图
利用遗传标记和遗传连锁信息,构建染色体图谱。
物理作图
利用分子生物学技术,如荧光原位杂交(FISH)等,直接确定染色体上基因的物理位置。
03
三点测交与染色体作图 的关联
三点测交在染色体作图中的应用
验证基因定位
三点测交可以用来验证基因在染色体上的位置,通过比较不同基因型个体的表型,可以确定基因在染 色体上的相对位置。
06
案例研究
案例一:某遗传疾病的染色体分析
总结词
详细描述
通过三点测交技术,分析某遗传疾病的染色 体异常情况,为疾病的诊断和治疗提供依据。
某遗传疾病患者经过三点测交技术分析,发 现其染色体存在异常,如染色体数目异常或 结构异常,这些异常可能导致疾病的发生。 通过进一步研究这些异常的染色体,可以深 入了解疾病的遗传机制,为疾病的诊断和治 疗提供依据。
果蝇的三点侧交和基因作图-陈东经-09351064-基地班
果蝇的三点侧交和基因作图陈东经(中山大学生命科学学院2009级生物技术与应用基地班广州 510275)摘要:本实验通过同一染色体上3个非等位基因的交换行为来验证基因在染色体上呈直线排列。
先用野生型果蝇(长翅、直刚毛、红眼)与三隐性果蝇(短翅、卷刚毛、白眼)杂交,制成三因子杂种,再把雌性杂种与三隐性个体测交,得到8种不同的表型。
关键词:果蝇、三点测交、遗传作图引言:三点测交是基因连锁作图的经典方法, 由于其实用性强, 广泛地应用于基因定位的研究工作。
本实验利用野生果蝇(长翅、直刚毛、红眼)与三隐性果蝇(短翅、卷刚毛、白眼)杂交,制成三因子杂种,再把雌性杂种与三隐性个体测交,经过数据处理,绘制出遗传学图,再计算相应的并发率和干涉。
实验目的1.学习和掌握用“三点测交”进行基因定位的方法。
2.了解绘制遗传学作图的原理和方法。
3.加深对重组值、遗传学图、双交换值、并发率和干涉等概念的理解。
实验仪器和试剂1.仪器、用具恒温培养箱、电炉、培养瓶、麻醉瓶、解剖镜、毛笔、镊子。
2.试剂乙醚、丙酸、乙醇棉球、琼脂、酵母、红糖。
实验材料黑腹果蝇(Drosophila melanogaster)品系;野生型果蝇(+++)长翅、直刚毛、红眼;三隐性(m sn3 w)短翅、卷刚毛、白眼。
方法与步骤1.收集和挑选3隐性品系处女蝇,同时也收集和挑选野生型雄蝇。
2.把挑选到的雌蝇和雄蝇,各3~5只,用毛笔扫进空白培养瓶中杂交,贴好标签,放于25摄氏度培养箱培养。
3.经7~8 d出现F1幼虫,倒干净亲本成虫并处死。
4.再经7 d,F1成蝇出现,将成蝇倒进消毒过的空瓶适度麻醉,可以观察到F1雌蝇全部是野生型的,雄蝇全部是3隐性的。
然后选20~30对F1果蝇,放到新的培养瓶中继续杂交,每瓶5~6队。
5.7 d后F2幼虫出现,这是要把F1成蝇全部倒出并处死。
6.再继续培养7 d,F2成蝇出现,可以开始观察。
实验结果表1 三点测交试验F2性状观察和统计测交后代表型观察数重组发生在m~sn3m~w w~ sn3sn3 w m 445+ + + 356+ w + 139+ +sn3+ m 71+ +sn3+ + 11 + ++ w m 6+ ++ + m 64+ +sn3w + 104+ +总计1057 185 239 227 重组值/% 17.5 22.6 21.5计算基因间的重组值:m-sn3间的重组值=185/1057×100%=17.5%m-w间的重组值=239/1057×100%=22.6%w-sn3间的重组值=227/1057×100%=21.5%画遗传图如下:m 17.5 sn3 21.5 w| | || 22.6 |图1 X染色体上的3基因的定位通过计算双交换值就会发现m-sn3 与w-sn3间的重组值之和大于m-w之间的重组值。
遗传学实验实验七果蝇的三点测交
三点测交实验的预期结果
在三点测交实验中,预期结果是根据基因之间的相互作用关系和遗传规律 来预测的。
通过观察杂交后代的表型和死亡情况,可以推断出基因之间的互作关系, 例如是否为连锁关系、是否为互补关系等。
预期结果也可以用于验证实验假设和理论模型,为进一步的研究提供指导 。
引入先进技术
随着科技的发展,基因编辑、高通量测序等新技术在遗传学领域的 应用越来越广泛,希望未来能够将这些技术引入到实验中。
加强跨学科合作
遗传学与生物信息学、统计学等多个学科密切相关,希望未来能够加 强跨学科合作,推动遗传学研究的深入发展。
07
CATALOGUE
参考文献
参考文献
发表时间:2018年
遗传学实验实验七 果蝇的三点测交
contents
目录
• 实验目的 • 实验原理 • 实验材料 • 实验步骤 • 实验结果与分析 • 实验总结与展望 • 参考文献
01
CATALOGUE
实验目的
理解三点测交实验原理
验证基因的连锁关系
通过三点测交实验,可以验证两个或多个基 因是否连锁在一起,以及它们在染色体上的 排列顺序。
提高实验技能
实验过程中,我们提高了实验操 作技能,学会了使用显微镜、培 养箱等实验器材,以及如何处理 和记录实验数据。
培养团队合作精神
实验需要小组合作完成,通过与 同学协作,我们培养了团队合作 精神和沟通能力。
对未来遗传学实验的展望
探索更多遗传学实验
希望未来能够开展更多遗传学实验,如基因定位、基因克隆等,以 便更深入地了解基因的结构和功能。
得出结论,验证实验原理
染色体作图
第二步 , 由以上可知 , 测交子 代有 8种表现 型 , 中 I I表 现型为 亲 其 和 1
本型 , 多于其他表 现型 , ( 2 可知 3个基 因为 连锁遗传 。 远 据 表 )
24 .. 定 3 2确 个基 因 的排列顺 序 。Ⅶ 和 VI两种重 组型个 体最 少 。 I I 是 双交 换重组 型 。由双 交换 型与 亲本型对 比,可 知 s h是位 于 3 个基 因 的中 间 。 3 因的排列顺 序是 :—S —w【 即 基 c h 】 。 2 _ -3确定 基因间 的距离 。 4
由 以上 可知 3 基 因的连 锁遗传 图为 : 个
c . 36 S h 2 0 w x '
可见两点 测验手续烦 琐. 进行三次 杂交和三 次测交 , 需 如果 两对连 锁基 因间距 离较远 , 的值往往偏低 。因为其 间有双交换 , 以要用 三点测验法 。 测 所
2 三点测验 .
染 色体作 图最常用 的方法是 三点测 验。三 点测验 以三对基 因为基本 单
位 , 过一 次杂 交和一 次测 交 , 通 同时确定 三对 基 因在染 色体 上 的位 置和 排 列顺 序。用 三点测验来 进行染 色体作 图的思路是 : 21判断 三基 因是 否为连 锁基因 ?判断的依据 ( 下表 2 : . 如 )∞
8 4 94 7
24 39 2 O 91 5 9 9 2 1 26 l 5 60 78
离的大 小。 即重 组率去 掉%, 位为厘摩 (M)1 单 e (%重组 率为一个 遗传 图距 ,
也称 l 摩 )表示 基 因间的相对距 离。 厘 ,
1两点测 验 .
在 常规 遗传作图 中, 两点测验法是基 因定位方法 。最基本 的方 法是 以两 对基因为基本单位来 计算重组率 , 以求得基因问的距离从 而进行 定位 的。 例 如 : 米 种子 的有 色 ( ) 无色 ()非糯 ( ) 糯 (x 胚乳 , 玉 C与 c, Wx与 w) 饱满 (h 与皱粒 (h 是 3对等 位基 因, 确定 3 基 因间 的位 置 , 两点 测验 S) s) 要 个 用
遗传学-第三章-连锁互换与基因作图B
一、连锁与互换现象 二、连锁互换与基因作图
三、有丝分裂中染色体的分离与重组 四、连锁群
三点测交(three-point testcross)与染色体作图
为了进行基因定位,摩尔根和他的学生Sturtevant改 进了上述两点测交,创造了三点测交方法,即将3个 基因包括在同一次交配中。进行这种测交,一次实验 就等于3次两点试验。
2125 2207 273 265 217 223
5 3
非重组 重组 重组 非重组
ec—ct间重组率 =(273+265+217+223)/5318 =18.4%=18.4cM
4、绘染色体图 ec 10.2
cv
8.4 ct
18.组值时都利用了双交换值, 可是计算ec—ct时没把它计在内,因为它们间双交换的 结果并不出现重组。所以ec—ct之间的实际双交换值应 当是重组值加2倍双交换值。即18.4%+2×0.1%=18.6%。
(ec) ct + (+) + cv (ec) + cv (+) ct + (ec) + + (+) ct cv (+) + + (ec) ct cv
2125 2207 273 265 217 223
5 3
非重组 非重组 重组 重组
ct—cv间重组率 =(217+223+5+3)/5318 =0.084=8.4%=8.4cM
1 有丝分裂重组的发现
了解
以前介绍的连锁互换及三点测交均为减 数分裂时性细胞中的情况。
但果蝇等二倍体生物体细胞中也会发生 非姊妹染色单体间的交换。