
酵母双杂交(自激活)
Suppose we have two proteins...
X
Y
and the question, do these two protein bind each other?
One way of answering this question is to use the yeast two hybrid method.
Yeast two-hybrid system:
a genetic assay for detecting protein-protein interactions
Regulation of gene expression in yeast
transcription activator
activation domain
阳性克隆的筛选: 阳性克隆的筛选:
将在SD/-Trp培养基上长出的酵母菌落转移到 培养基上长出的酵母菌落转移到SD/-His培 将在 培养基上长出的酵母菌落转移到 培 养基上进行筛选。30℃培养2天,检查生长情况。 养基上进行筛选。 ℃培养 天 检查生长情况。
对生长状态较好的单克隆进行β-半乳糖苷酶活性分析。 对生长状态较好的单克隆进行 半乳糖苷酶活性分析。 半乳糖苷酶活性分析
Yeast two-hybrid system:
a genetic assay for detecting protein-protein interactions
Regulation of gene expression in yeast
transcription activator
activation domain
Y
thus forming a functional transcription activator...
X
Y
do we get expression of the reporter?
reporter gene
His, β-gal
一般情况下, 一般情况下,单独的 BD 可以与 GAL4 上游活化序列( 上游活化序列 ( GAL UAS) 结合 , 但不能 ) 结合, 引起转录。然而,将一段具有转录激活活性 引起转录。然而,将一段具有转录激活活性 的转录因子基因构建到BD载体上 , 若其表 载体上, 的转录因子基因构建到 载体上 达产生的 BD 单独与 UAS 结合也可以引起 下游报告基因的转录, 下游报告基因的转录,那么就称之为酵母双 杂中的自激活现象 反过来, 自激活现象。 杂中的自激活现象。反过来,可以利用这种 自激活现象来验证某个转录因子是否具有转 录激活活性。 录激活活性。
自激活原理
GAL4BD Transcription factors
X
X
reporter gene
His, β-gal
YPDA培养基 培养基
YPDA 蛋白胨 酵母提取物 琼脂 0.2%ade 葡萄糖 液体 500ml 10g 5g —— 10ml 10g 固体 100ml 2g 1g 2g 2ml 2g
GAL4分子的 可以同上游激活序列 分子的BD可以同上游激活序列 分子的 (upstream activating sequence,UAS)结合。 结合。 结合 AD则能激活 则能激活UAS下游的基因进行转录。 下游的基因进行转录。 则能激活 下游的基因进行转录 单独的BD和 都不能激活 都不能激活UAS的下游 单独的 和AD都不能激活 的下游 基因, 基因,它们之间只有通过某种方式结合 在一起才具有完整的转录激活功能。 在一起才具有完整的转录激活功能。
DNA binding doFra bibliotekainUAS (upstream activation sequence)
transcription machinery
gene
Do these proteins bind?
Y
X
X
X Y
our two hybrid proteins bind!
yes, we have expression of the reporter indicating that the proteins bind!
0.2g ade定容至 100ml → 0.2%的ade母液
pH 6.5
灭菌 121℃ 15min ℃
正对照: 正对照:pGAL4 负对照: pBD-GAL4 负对照:
酵母菌株感受态细胞制备: 酵母菌株感受态细胞制备: 感受态细胞制备
1. 将-70℃下冻存的酵母菌在 平板上划线, ℃下冻存的酵母菌在YPAD平板上划线,倒置于 ℃培养 天。 平板上划线 倒置于30℃培养2-3天 2. 挑取 个大菌落(直径2-3mm)于1.5ml YPAD液体培养基中,剧烈震 挑取2-4个大菌落(直径 液体培养基中, 个大菌落 ) 液体培养基中 液体培养基中( 荡5min,打散菌落,接种于 ,打散菌落,接种于50ml YPAD液体培养基中(250ml三角 液体培养基中 三角 瓶),230-250转/min,30℃培养 ), 转 , ℃培养18-24hr。 。 需达到1.5。若不到,再培养1~2hr,若还不到, 3. 取菌液测定其 600值,需达到 。若不到,再培养 取菌液测定其OD ,若还不到, 换单克隆重摇。 换单克隆重摇。 4. 取50ml菌液于 菌液于300mlYPAD培养基中(1-2L大三角瓶), ℃, 培养基中( 大三角瓶), 菌液于 培养基中 大三角瓶),30℃ 230rpm,摇培3hr,至 OD600值为 ,摇培 值为0.4~0.6。 , 。 5. 4000rpm 5min 于常温收集菌体,重复一次。 于常温收集菌体,重复一次。 6. 室温下 室温下1000g离心 离心5min,去上清,加入 超纯水清洗悬浮3次 离心 ,去上清,加入50ml 超纯水清洗悬浮 次。 7. 1000g离心 离心5min,弃上清,用新配的 重悬细胞, 离心 ,弃上清,用新配的1.5ml 1×TE/LiAc重悬细胞,置冰 × 重悬细胞 上,即成为酵母感受态细胞。 即成为酵母感受态细胞。 现做现用, (只能现做现用,不能贮存,室温只能放置 只能现做现用 不能贮存,室温只能放置1-2hr)。 )。
β-半乳糖苷酶活性分析 半乳糖苷酶活性分析(酵母克隆滤纸显色分析) 半乳糖苷酶活性分析
1. 取2ml的Z缓冲液 缓冲液/X- gal溶液润透 张滤纸; 溶液润透2张滤纸 的 缓冲液 溶液润透 张滤纸; 2. 小心取一张滤纸覆盖于生长有转化子的平皿上,用涂布棒小心赶出气 小心取一张滤纸覆盖于生长有转化子的平皿上, 使滤纸尽可能与酵母菌接触( 泡,使滤纸尽可能与酵母菌接触(1min); ); 3. 用一根针在滤纸上刺个小孔以标记菌落位置,用镊子轻轻取出滤纸, 用一根针在滤纸上刺个小孔以标记菌落位置,用镊子轻轻取出滤纸, 沾有菌的面朝上置液氮中10s,夹出滤纸,室温解冻;重复3次 沾有菌的面朝上置液氮中10s,夹出滤纸,室温解冻;重复3次; 4. 沾有菌的面朝上,紧贴于预先用Z缓冲液 沾有菌的面朝上,紧贴于预先用 缓冲液 缓冲液/X-gal溶液润透过的那张滤纸 溶液润透过的那张滤纸 同时吸掉多余的Z缓冲液 缓冲液/X-gal溶液; 溶液; 上,同时吸掉多余的 缓冲液 溶液 5. 沾有菌的面朝上,纸间不要有气泡,放置于30℃温箱 沾有菌的面朝上,纸间不要有气泡,放置于 ℃温箱3-8h,观察酵母 , 的颜色变化。 的颜色变化。
酵母双杂交(自激活)
一、原理
真核生物的转录因子是由两个可以分开的、 真核生物的转录因子是由两个可以分开的、 功能上相互独立的结构域(domain)组成的。 组成的。 功能上相互独立的结构域 组成的 酵母的转录激活因子GAL4,在N端有一个 , 酵母的转录激活因子 端有一个 个氨基酸组成的DNA结合域 结合域(DNA 由147个氨基酸组成的 个氨基酸组成的 结合域 binding domain,BD),C端有一个由 端有一个由113个 , 端有一个由 个 氨基酸组成的转录激活域 转录激活域(transcription 氨基酸组成的转录激活域 activation domain,AD)。 。
DNA binding domain
UAS (upstream activation sequence)
transcription machinery
gene
Yeast two-hybrid system:
a genetic assay for detecting protein-protein interactions
酵母转化
1. 鲑鱼精 DNA(20µg/µl)沸水中煮 ( )沸水中煮20min,冰上冷却 ,冰上冷却10min。 。 2. 加入 加入100µl酵母感受态细胞、1~2µl构建质粒(约200ng)、 酵母感受态细胞、 构建质粒( )、100µg鲑 酵母感受态细胞 构建质粒 )、 鲑 鱼精、 鱼精、600µl TE-LiAc-PEG,变速涡旋 ,变速涡旋10s~1min至混匀。 至混匀 3. 30℃,200rpm/min,恒温摇床振荡 ℃ ,恒温摇床振荡30min。 。 4. 加入 加入70µl DMSO,温和颠倒混匀。 颠倒混匀。 ,温和颠倒混匀 5. 42℃水浴热休克15min,后冰浴 ℃水浴热休克 ,后冰浴10min。 。 6. 常温下,3000rpm离心 常温下, 离心10s;弃上清(去干净),用0.5ml 1×TE重悬 ),用 离心 ;弃上清(去干净), × 重悬 细胞。( × 室温只能放置 室温只能放置1~2hr) 细胞。( 1×TE室温只能放置 ) 7. 将转化后的酵母培养于 将转化后的酵母培养于SD/-Trp培养基上,30℃倒置培养约 天,直 培养基上, ℃倒置培养约3-5天 培养基上 至出现菌落。 至出现菌落。
酵母双杂实验步骤

2.1.1酵母双杂交2.1.1.1Gateway入门克隆设计Gateway引物时,在上游引物的5'端加上B1序列:GGGG-ACA-AGT-TT G-TAC -AAA-AAA-GCA-GGC-TNN-,下游引物的5'端加上B2序列:GGGG-ACC-ACT-TT G-T AC-AAG-AAA-GCT-GGG-TN-。
其中,5'-GGGG序列是保护碱基,防止引物的重要部分被降解,下划线加粗的部分是在整个的Gateway克隆中可以保存下来的序列,3'端的碱基N是为了保证经过入门载体构建目的载体时阅读框的正确性,一般建议为C。
通过PCR扩增获得带有att B位点的基因片段,扩增体系和条件见3.2.2.2,其中将退火温度改为65℃。
获得扩增产物后对其进行回收纯化,测定纯化后DNA 的质量和浓度后进行下一步的BP反应,反应体系如下:att B-PCR产物(≥10 ng/μL)1-7μLpDONR221 (150 ng/μL)1μLTE buffer, pH 8.0 补足8μL将上述混合物加入离心管中,加入2μL BP反应酶,加入之前需将其在涡旋仪上轻轻振荡两次,所有组分混匀离心后,25℃反应1h,加入1μL蛋白酶K后,混匀离心,37℃反应10min终止BP反应,将BP反应产物参照3.2.2.6进行转化,由于pDONR221载体为Kan抗性,所以选用含有50μg/mL Kan抗生素的LB平板进行阳性克隆筛选,参照3.2.2.7检测阳性克隆,然后根据3.2.2.8中的方法提取重组质粒,测定质量和浓度后送至测序公司进行测序。
进行BP反应时,需注意以下几项:(1)对于BP反应来说,最高效的是采用线性的att B-PCR产物和超螺旋的att P入门载体;(2)为了提高BP反应的效率,可以将建议的25℃反应1h适当延长至4-6h,可以将效率提高2-3倍,或者延长至过夜反应,可以将效率提高5-10倍,对于长片段克隆来讲,适当的延长反应时间是非常必要的;(3)提高体系中PCR产物的量可以增加反应效率,但每10μL体系中PCR产物最好不要超过250ng。
酵母双杂实验操作手册和注意事项
酵母双杂(Yeast two-hybrid)实验操作手册和注意事项一. 酵母双杂的原理1989年,Song和Field建立了第一个基于酵母的细胞内检测蛋白间相互作用的遗传系统。
很多真核生物的位点特异转录激活因子通常具有两个可分割开的结构域,即DNA特异结合域(DNA-binding domain,BD)与转录激活域(Transcriptional activation domain ,AD)。
这两个结构域各具功能,互不影响。
但一个完整的激活特定基因表达的激活因子必须同时含有这两个结构域,否则无法完成激活功能。
不同来源激活因子的BD区与AD结合后则特异地激活被BD结合的基因表达。
基于这个原理,可将两个待测蛋白分别与这两个结构域建成融合蛋白,并共表达于同一个酵母细胞内。
如果两个待测蛋白间能发生相互作用,就会通过待测蛋白的桥梁作用使AD与BD形成一个完整的转录激活因子并激活相应的报告基因表达。
通过对报告基因表型的测定可以很容易地知道待测蛋白分子间是否发生了相互作用。
酵母双杂交系统由三个部分组成:(1)与BD融合的蛋白表达载体,被表达的蛋白称诱饵蛋白(bait)。
(2)与AD融合的蛋白表达载体,被其表达的蛋白称靶蛋白(prey)。
(3)带有一个或多个报告基因的宿主菌株。
常用的报告基因有HIS3,URA3,LacZ和ADE2等。
而菌株则具有相应的缺陷型。
双杂交质粒上分别带有不同的抗性基因和营养标记基因。
这些有利于实验后期杂交质粒的鉴定与分离。
根据目前通用的系统中BD来源的不同主要分为GAL4系统和LexA系统。
后者因其BD来源于原核生物,在真核生物内缺少同源性,因此可以减少假阳性的出现。
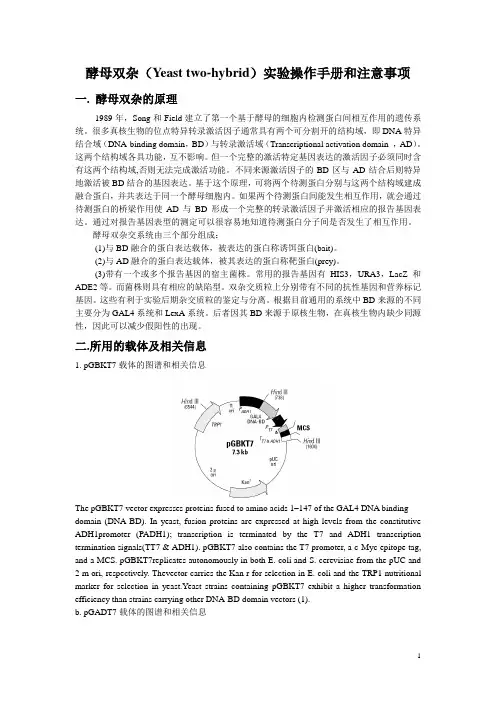
二.所用的载体及相关信息1. pGBKT7载体的图谱和相关信息The pGBKT7 vector expresses proteins fused to amino acids 1–147 of the GAL4 DNA binding domain (DNA-BD). In yeast, fusion proteins are expressed at high levels from the constitutive ADH1promoter (PADH1); transcription is terminated by the T7 and ADH1 transcription termination signals(TT7 & ADH1). pGBKT7 also contains the T7 promoter, a c-Myc epitope tag, and a MCS. pGBKT7replicates autonomously in both E. coli and S. cerevisiae from the pUC and 2 m ori, respectively. Thevector carries the Kan r for selection in E. coli and the TRP1 nutritional marker for selection in yeast.Yeast strains containing pGBKT7 exhibit a higher transformation efficiency than strains carrying other DNA-BD domain vectors (1).b. pGADT7载体的图谱和相关信息pGADT7-T encodes a fusion of the SV40 large T-antigen (a.a. 86–708) and the GAL4 AD (a.a. 768–881). The SV40 large T DNA (GenBank LocusSV4CG) was derived from a plasmid referenced in Li & Fields (1993) and was cloned into pGADT7 using the EcoR I and Xho I sites. pGADT7-T has not been sequenced.三.实验主要流程A.需要准备的药品和设备1.两种酵母菌种(AH109,Y187)2.酵母培养所需的药品: Yeast nitrogen base without amino acidsAgar (for plates only)sterile 10×Dropout Solution单缺-T,-L(clontech公司)二缺-T/-L (clontech公司)四缺-T/-L/-Ade/-His(clontech公司)3.酵母转化所需的药品: 10×TE buffer10×LiAc40%PEGcarrier DNA4.酵母显色所需要的药品: x- -GAL5.其他仪器设备: 30℃恒温培养箱30℃摇床.水浴锅分光光度计B.DNA-BD和DN-AD fusion protein 载体的分别构建。
酵母双杂交ad自激活验证步骤

酵母双杂交ad自激活验证步骤
酵母双杂交(Yeast Two-Hybrid)是一种常用的蛋白质相互作用研究技术。
下面是酵母双杂交AD自激活验证的步骤:
1. 构建酵母双杂交AD靶蛋白的表达载体:将目标蛋白的编码序列克隆到酵母双杂交AD表达载体中,将其与AD激活域相连,以使目标蛋白能够激活报告基因的表达。
2. 转化AD靶蛋白表达载体到酵母菌株中:通过酵母转化方法将AD靶蛋白表达载体导入酵母菌中,使其能够表达目标蛋白并激活报告基因。
3. 培养转化后的酵母菌株:将转化后的酵母菌株分别培养在选择性培养基上,其中包含AD靶蛋白表达载体所对应的选择性标记物,以筛选出成功转化的酵母菌株。
4. 鉴定AD自激活:通过观察报告基因的表达情况,若转化后的酵母菌株在选择性培养基上形成克隆,表明AD靶蛋白具有自激活能力。
此时需要通过相应的对照实验来确认AD靶蛋白的自激活性质。
需要注意的是,酵母双杂交中AD自激活验证的结果需要慎重解读,因为自激活可能会产生误报。
因此,在进行酵母双杂交实验时,通常需要配对对照实验来排除自激活的影响,以确保结果的准确性。
OsRUS2.1酵母双杂交猎物载体的构建及其细胞毒性和自激活作用检测

OsRUS2.1酵母双杂交猎物载体的构建及其细胞毒性和自激活作用检测潘家强;侯学文【摘要】采用 PCR 技术扩增水稻根UV‐B 敏感基因2.1(ROOT UV‐B S EN S IT IV E 2.1,RUS2.1)四个不同片段[OsRUS2.1(1‐1317),OsRUS2.1(1‐138),OsRUS2.1(139‐879),OsRUS2.1(880‐1317)],连接到 T 载体pMD18‐T‐Simple 上,测序无误后分别亚克隆到猎物表达载体 pGADT7上.结果表明:四个OsRUS2.1基因片段的表达载体构建成功,读码框正确;分别转化这四个猎物表达载体于酵母感受态细胞 Y187中,用 LacZ 、M EL1活性检测法和营养缺陷型培养基SD‐Leu‐DO 培养法进行自激活检测和毒性检测,结果表明构建的四个OsRUS2.1不同片段的猎物表达载体对酵母菌株 Y187均没有转录激活活性和毒害作用,可用于后续研究.%Four fragments of rice(Oryza sativa)ROOT UV‐B SENSIT IV E 2 .1(OsRUS2 .1) ,OsRUS2 .1(1‐1317) , OsRUS2 .1(1‐138) ,OsRUS2 .1 (139‐879) ,OsRUS2 .1 (880‐1317) ,were amplified by PCR from cloned OsRUS2 .1 plasmid ,and were ligated with pMD18‐T‐simple vector ,then transformed to E .coli TOP10 competent cell .The posi‐tive clones were selected and sequenced .The confirmed fragments were subcloned to prey vector pGADT 7 .The four constructed pGADT7 prey vectors were further confirmed by enzyme digestion and sequencing . The confirmed 4 types of pGADT7 prey vectors were transformed to Y187 yeast c ompetent cells .The self‐activation and toxicity of the plasmids to host yeast Y187 were detected by LacZ and MEL1 activity assays and culturing in auxotroph medium SD‐Leu ‐DO .Results showed that the fourconstructed plasmids had no self‐transcriptional a ctivity and not toxicity to yeast strain Y187 ,and they could be used in the following yeast two‐hybrid experiments .【期刊名称】《广西植物》【年(卷),期】2013(000)001【总页数】6页(P76-81)【关键词】水稻根对敏感基因 2.1;猎物载体;酵母双杂交;自激活;毒性检测【作者】潘家强;侯学文【作者单位】华南农业大学生命科学学院分子植物生理研究室,广州 510642;华南农业大学生命科学学院分子植物生理研究室,广州 510642; 华南农业大学生命科学学院植物功能基因组与生物技术重点实验室,广州 510642【正文语种】中文【中图分类】Q782UV-B是太阳辐射的组成部分,它能够穿过大气层到达地表,但到达地表的UV-B 辐照强度与季节、云层厚度以及大气层臭氧含量有关。
《酵母双杂交筛选FKBP38相互作用蛋白及SQSTM1-p62功能初步研究》范文

《酵母双杂交筛选FKBP38相互作用蛋白及SQSTM1-p62功能初步研究》篇一酵母双杂交筛选FKBP38相互作用蛋白及SQSTM1-p62功能初步研究一、引言蛋白质与蛋白质之间的相互作用在生命活动中扮演着至关重要的角色。
为了更好地了解蛋白质的生物功能及其在生命过程中的作用机制,研究者们需要深入了解其与其它蛋白质的相互作用关系。
本实验通过酵母双杂交技术,对FKBP38(肽基脯氨酰顺反异构酶)相互作用蛋白及其与SQSTM1/p62(自噬相关蛋白)的功能进行了初步研究。
二、材料与方法1. 材料本实验所需材料包括酵母菌株、FKBP38和SQSTM1/p62基因及其片段、引物等。
所有试剂均为高纯度、高质量。
2. 方法(1)构建酵母双杂交系统:将FKBP38基因克隆至酵母双杂交载体中,并利用自激活检测方法进行检测。
同时,对SQSTM1/p62与FKBP38之间的相互作用进行检测。
(2)筛选相互作用蛋白:利用酵母双杂交系统筛选与FKBP38相互作用的蛋白,并对筛选到的蛋白进行验证。
(3)初步研究SQSTM1/p62功能:通过免疫共沉淀、自噬流分析等方法,研究SQSTM1/p62在细胞中的功能及与FKBP38的相互作用关系。
三、实验结果1. 酵母双杂交系统构建及相互作用检测本实验成功构建了FKBP38的酵母双杂交系统,并验证了FKBP38与SQSTM1/p62之间的相互作用关系。
通过筛选,我们得到了一系列与FKBP38相互作用的蛋白。
2. 相互作用蛋白的筛选与验证经过筛选和验证,我们成功鉴定出若干个与FKBP38相互作用的蛋白。
这些蛋白在细胞内发挥着不同的生物功能,为进一步研究FKBP38的生物功能提供了新的线索。
3. SQSTM1/p62功能初步研究(1)免疫共沉淀实验结果显示,SQSTM1/p62与FKBP38在细胞内存在相互作用关系。
(2)自噬流分析结果表明,SQSTM1/p62参与了自噬过程的多个环节,如自噬体形成、自噬体与溶酶体的融合等。
酵母双杂交系统步骤

酵母双杂交系统的步骤酵母双杂交法的原理:典型的真核生物转录因子,如GAL4、GCN4、等都含有二个不同的结构域:DNA结合结构域和转录激活结构域。
前者可识别DNA上的特异序列,并使转录激活结构域定位于所调节的基因的上游,转录激活结构域可同转录复合体的其他成分作用,启动它所调节的基因的转录。
酵母双杂交法的步骤:1. 阳性克隆的筛选2. 用质粒自然分选法筛除只含有AD-文库杂合子的克隆3. 酵母杂合试验确定真阳性克隆4. 阳性克隆的进一步筛选和确证5. 对双杂交系统阳性结果的进一步研究6. 阳性克隆的筛选7. 用质粒自然分选法(Natural Segregation)筛除只含有AD-文库杂合子的克隆8. 酵母杂合试验(Yeast Mating)确定真阳性克隆9. 阳性克隆的进一步筛选和确证扩展资料:酵母双杂交系统能在体内测定蛋白质的结合作用,具有高度敏感性。
主要是由于:1、采用高拷贝和强启动子的表达载体使杂合蛋白过量表达。
2、信号测定是在自然平衡浓度条件下进行,而如免疫共沉淀等物理方法为达到此条件需进行多次洗涤,降低了信号强度。
3、杂交蛋白间稳定度可被激活结构域和结合结构域结合形成转录起始复合物而增强,后者又与启动子DNA结合,此三元复合体使其中各组分的结合趋于稳定。
4、通过mRNA产生多种稳定的酶使信号放大。
同时,酵母表型,X-Gal及HIS3蛋白表达等检测方法均很敏感。
在研究蛋白质的结构功能特点、作用方式过程中,有时还要通过突变、加抑制剂等手段破坏蛋白质间的相互作用。
针对实际工作中的这种需要,Vidal等人发展了所谓的逆双杂交系统(reverse two-hybrid system)。
这项技术的关键是报道基因URA3的引入。
URA3基因在这里起到了反选择的作用,它编码的酶是尿嘧啶合成的关键酶。
橡胶树14-3-3蛋白基因的酵母双杂交诱饵载体的构建及自激活和毒性检测
1 C l g fAgoo ,Hann U i ri,Hak u 5 0 2 ol e o rnmy e ia nv st e y io 7 2 8 2K y l oa r o r i lCo i eh o g, n t A r u ue I tu r i l i c n e e b r o To c r Bo cn l y Mi s y o gi l r n i t o T pc o i c a tyf pa p t o ir f c t , s t ef o a B s e ad Boeh ooy hn s a e r ia A r u ua Sine,Ha o 71 1 n i c nlg,C ieeAcd myo To cl gi h r c cs i u 5 1 0 t f p c l e k
He e r sl n i i a tTwo h b i y t m n d n i c to f t p ab a i e ss n Ye s i — y rd S se a d I e t a i n o s i f I To i i n t n m o s Ac i a i n Efe t x ct a d Au o o y u tv to f c s
热 带 作 物学 报 2 1 ,3 ( ) 4 — 4 0 1 2 2 :2 0 2 4
C i ee J u a fT o ia o h n s o m lo rpe lCr
橡胶树 1 — — 4 3 3蛋 白基 因的酵 母双 杂交诱饵载体 的 构 建及 自激活和 毒性检测
杨 子平 一,李 辉 亮 z ,郭 冬 ,彭 世 清
酵母双杂实验步骤
2.1.1 酵母双杂交2.1.1.1 Gateway入门克隆设计Gateway引物时,在上游引物的5'端加上B1序列:GGGG-ACA-AGT-TTG-TAC -AAA-AAA-GCA-GGC-TNN-,下游引物的5'端加上B2序列:GGGG-ACC-ACT-TTG-T AC-AAG-AAA-GCT-GGG-TN-。
其中,5'-GGGG序列是保护碱基,防止引物的重要部分被降解,下划线加粗的部分是在整个的Gateway克隆中可以保存下来的序列,3'端的碱基N是为了保证经过入门载体构建目的载体时阅读框的正确性,一般建议为C。
通过PCR扩增获得带有attB位点的基因片段,扩增体系和条件见3.2.2.2,其中将退火温度改为65℃。
获得扩增产物后对其进行回收纯化,测定纯化后DNA 的质量和浓度后进行下一步的BP反应,反应体系如下:将上述混合物加入离心管中,加入2μL BP反应酶,加入之前需将其在涡旋仪上轻轻振荡两次,所有组分混匀离心后,25℃反应1h,加入1μL蛋白酶K后,混匀离心,37℃反应10min终止BP反应,将BP反应产物参照3.2.2.6进行转化,由于pDONR221载体为Kan抗性,所以选用含有50μg/mL Kan抗生素的LB平板进行阳性克隆筛选,参照3.2.2.7检测阳性克隆,然后根据3.2.2.8中的方法提取重组质粒,测定质量和浓度后送至测序公司进行测序。
进行BP反应时,需注意以下几项:(1) 对于BP反应来说,最高效的是采用线性的attB-PCR产物和超螺旋的attP入门载体;(2) 为了提高BP反应的效率,可以将建议的25℃反应1h适当延长至4-6h,可以将效率提高2-3倍,或者延长至过夜反应,可以将效率提高5-10倍,对于长片段克隆来讲,适当的延长反应时间是非常必要的;(3) 提高体系中PCR产物的量可以增加反应效率,但每10μL体系中PCR产物最好不要超过250ng。
酵母双杂交自激活
蛋白质相互作用在细胞生物学和疾病中的作用。
此外,酵母双杂交系统还可以用于筛选新的药物靶点或鉴定新
03
的治疗策略。
酵母双杂交系统的优缺点
优点
酵母双杂交系统具有高灵敏度和特异性,能够检测到低亲和力的相互作用。此外 ,它还具有高通量和高可重复性的特点,可以同时检测多个蛋白质之间的相互作 用。
缺点
然而,酵母双杂交系统也存在一些局限性。例如,它可能受到酵母细胞内其他因 素的影响,导致假阳性结果。此外,由于酵母细胞与人类细胞存在差异,因此某 些在酵母细胞中检测到的相互作用可能无法在人类细胞中重现。
蛋白质的相互作用可以通过多种方式进 在酵母双杂交实验中,了解蛋白质之间 行,例如通过蛋白质的直接接触或通过 的相互作用有助于预测自激活的可能性, 与它们相关的其他分子之间的相互作用。 并采取措施避免或减少这种现象的发生。
基因表达水平的影响
基因表达水平对酵母双杂交自激活也有重要影响。当一个基因的表达水平过高时, 它可能会产生过多的蛋白质,导致自激活。
2
该系统基于两种基本的酵母转录因子,即GAL4 和STE12,它们可以分别与DNA结合并激活转录。
3
当一个转录因子与另一个转录因子结合时,它们 可以形成一个杂合二聚体,从而激活转录。
酵母双杂交系统的应用
01
酵母双杂交系统被广泛应用于研究蛋白质之间的相互作用,特 别是在信号转导和转录调控领域。
02
它可以帮助科学家确定蛋白质相互作用的结构基础,以及研究
酵母双杂交自激活
目录
• 酵母双杂交系统简介 • 酵母双杂交自激活的发现与确认 • 酵母双杂交自激活的影响因素
目录
• 酵母双杂交自激活的调控策略 • 酵母双杂交自激活的实际应用 • 未来展望与研究方向
酵母双杂交实验原理
酵母双杂交实验是一种用于研究蛋白质之间相互作用的实验方法,它基于真核生物调控转录起始过程的机制。
酵母双杂交实验主要通过检测两个蛋白质在酵母细胞中的相互作用,从而揭示它们在生物体内的功能和相互作用。
酵母双杂交实验原理如下:
1. 构建重组质粒:首先,将目标蛋白质的表达载体与酵母双杂交系统中的启动子、激活子等调控元件进行重组,得到重组质粒。
2. 转化酵母细胞:将重组质粒转化到酵母细胞中,使目标蛋白质在酵母细胞中表达。
3. 筛选融合蛋白:利用选择性培养基,筛选出成功表达目标蛋白质的酵母细胞。
4. 鉴定蛋白质互作:将筛选出的酵母细胞进行混合、共培养,观察转录激活效应。
如果两个蛋白质之间存在相互作用,它们会结合在一起,形成完整的转录激活因子,从而激活报告基因的转录。
通过检测报告基因的表达水平,可以判断蛋白质之间是否发生相互作用以及作用强度。
5. 结果分析:根据实验结果,分析蛋白质之间的相互作用,进一步研究它们在生物体内的功能和调控机制。
目前常用的酵母双杂交系统有LexA系统和Gal4系统两种。
LexA系统基于原核蛋白LexA的DNA结合域和转录激活域,而Gal4系统则利用了酵母转录激活因子GAL4的DNA结合域和转录激活域。
这两种系统在实验操作和应用范围上略有不同,但均具有较高的灵敏度和特异性。