
酵母双杂交实验流程(精).doc
模块七蛋白质之间的相互作用1.实验目的本实验以重组质粒和酵母细胞为材料, 学习检测蛋白质相互作用的基本原理和技术方法。
主要介绍酵母双杂交的基本原理与操作技术 ; 让学生了解和掌握酵母双杂交系统的应用 ; 掌握酵母感受态的制备的基本原理和主要的操作步骤。
2.实验原理1989 年Fields 和Song 等人根据当时人们对真核生物转录起始过程调控的认识(即细胞内基因转录的起始需要转录激活因子的参与,提出并建立了酵母双杂交系统。
该系统作为发现和研究活细胞体内的蛋白质与蛋白质之间的相互作用的技术平台 ,近几年得到了广泛的运用和发展。
相比于其它蛋白质筛选系统,酵母双杂交系统具有以下优点:(1 检测在真核活细胞内进行 ,在一定程度上代表细胞内的真实情况。
(2 作用信号是在融合基因表达后, 在细胞内重建转录因子的作用而给出的 ,省去了纯化蛋白质的繁琐步骤。
(3 检测结果是基因表达产物的积累效应,因而可检测存在于蛋白质之间的微弱或暂时的相互作用。
(4 酵母双杂交系统可采用不同组织、器官、细胞类型和分化时期材料构建cDNA 文库 ,能分析细胞质、细胞核及膜结合蛋白等多种不同亚细胞部位及功能蛋白。
(5 通过mRNA 产生多种稳定的酶使信号放大。
同时,酵母表型、X-Gal 及HIS3 蛋白表达等检测方法均很敏感。
酵母双杂交系统也具有一定的局限性。
首先 , 经典的双杂交系统分析蛋白间的相互作用定位于细胞核内,因而限制了该系统对某些细胞外蛋白和细胞膜受体蛋白的研究。
酵母双杂交系统的另一个局限性是“假阳性”。
在酵母双杂交系统建立的初期阶段 ,由于仅仅采用β-半乳糖苷酶这一单一的报告基因体系,这种报告基因的表达往往不能十分严谨地被控制,因此容易产生假阳性。
由于某些蛋白本身具有激活转录的功能或在酵母中表达时发挥转录激活作用, 使DNA 结合结构域融合蛋白在无特异激活结构域的情况下也可被激活转录。
另外某些蛋白表面含有对多种蛋白质的低亲和力区域 , 能与其他蛋白形成稳定的复合物,从而引起报告基因的表达,产生“假阳性”结果。
产生“假阴性”结果的原因可能有许多蛋白质间的相互作用依赖于翻译后加工如糖基化、磷酸化和二硫键形成 , 还有些蛋白的正确折叠和功能有赖于某些非酵母蛋白的辅助等。
现在的酵母双杂交系统大都采用多种报告基因 ,如 AH109 酵母株含有三类报告基因— ADE2 、 HIS3、 MEL1/lacZ, 这三类报告基因受控于三种完全不同、异源性的 GAL4- 反应元件和三类启动子元件 -GAL1 、 GAL2 以及 MEL1( 如图 6-1-1 。
通过这种方法就消除了两类最主要的假阳性 ,一类是融合蛋白可以直接与 GAL4 结合位点结合或者是在结合位点附近结合所带来的假阳性 ; 另一类是融合蛋白和某种转录因子结合后再结合到特定的 TA TA 盒上所带来的假阳性。
ADE2 一种报告基因就已经能够提供较强的营养选择压力 ,这时选择性地使用 HIS3 报告基因 ,一来可以降低假阳性率 ;二来可以控制筛选的严格性 (如果需要筛选与诱饵蛋白具有较强结合的蛋白 ,就可以同时使用 ADE2、 HIS3 两种报告基因 ; 如果只需要筛选与诱饵蛋白具有中等强度或较弱结合的蛋白 , 就可以使用 ADE2 或 HIS3 两者中的一种。
MEL1 和 lacZ 分别编码α-半乳糖苷酶和β-半乳糖苷酶 ,可以作用于相应的底物X-α-Gal 和X- β-Gal 使酵母变蓝。
其中, α-半乳糖苷酶是外分泌酶,在酵母表面就能直接检测到 ; β-半乳糖苷酶是内分泌酶 , 需要将酵母破碎后才能检测到。
用蓝斑显示酵母细胞内两个蛋白的相互作用的方法不仅具有较高的敏感性,而且蓝斑的深浅还可以反映两个蛋白相互作用的强弱。
随着酵母双杂交系统的广泛应用 , 这一系统得到了不断的完善及改进 , 除了经典的双杂交系统以外,同时也衍生出单杂交系统、三杂交系统、反向酵母双杂交系统、 hSos/Ras募集系统 (hSos/Ras recruitment systems、泛素分裂系统 (Split-ubiquitin systems、双诱饵系统 (Dual-bait systems等一系列相关系统 ,根据这些系统的不同特点 ,可以分别应用于蛋白质与 DNA 、 RNA 的相互作用、蛋白质复合体之间的相互作用、膜蛋白质之间的相互作用、筛选阻断蛋白间相互作用的药物等一系列领域 ,对经典的酵母双杂交系统起到了很好的补充,并有力地推动了酵母双杂交系统的发展与应用。
酵母双杂交系统的原理是利用转录激活因子在结构上是组件式的, 即这些因子往往由两个或两个以上相互独立的结构域构成,其中有 DNA 结合结构域 (DNA binding domain, DB 和转录激活结构域(activation domain, AD ,它们是转录激活因子发挥功能所必需的。
单独的DB 虽然能和启动子结合,但是不能激活转录。
而不同转录激活因子的DB 和 AD 形成的杂合蛋白仍然具有正常的激活转录的功能。
根据转录因子的这一特性 ,将 BD 与已知的诱饵蛋白质X 融合 ,构建出 BD-X 质粒载体 ; 将 AD 基因与 cDNA 文库 ,基因片段或基因突变体 (以 Y 表融合 ,构建 AD-Y 质粒载体。
两个穿梭质粒载体共转化至酵母体内表达。
蛋白质X和Y的相互作用导致了BD 与 AD 在空间上的接近 , 从而激活 UAS 下游启动子调节的酵母菌株特定报告基因 (如 LacZ , HIS 3, LEU 2 等的表达 (图 6-1-2 ,使转化体由于 HIS3 或 LEU2 表达 ,而可在特定的缺陷培养基上生长 ,同时因 LacZ 表达而在 X-α-Gal 存在下显蓝色。
酵母双杂交原理示意图3.实验仪器微量取液器 (2 μL; 20μL; 200μL; 1,000、低温μ离L心机、台式离心机、琼脂糖凝胶电泳系统、蛋白凝胶电泳系统、凝胶成像系统、半干转移系统、恒温摇床、恒温孵箱、通风橱、制冰机、振荡器、恒温金属浴、无菌接种环、10 cm 培养皿、 15 cm 培养皿。
4.实验试剂(1 裂解缓冲液 (Cracking buffer :尿素 8 mol/LSDS5%Tris-HCl (pH 6.8 40 mmol/LEDTA 0.1 mmol/L溴酚蓝 0.4 mg/ml(2 各种基础培养基和营养缺陷培养基 :minimal SD base, minimal SD agar base, YPD medium, YPD agar medium, -Leu DO supplement, -Trp DO supplement, -Leu/-Trp DO supplement, -Leu/-Trp/-His DO supplement, -Leu/-Trp/-His/-Ade DO supplement, 腺苷酸 (adenine , PEG8000, Carring DNA, 二甲基亚砜 (dimethyl sulfoxide, DMSO , TE/LiAC buffur, PEG/LiAC, X- α-gal 或 X-β-gal 。
(3 酵母质粒提取试剂盒 , LB 培养基 ,羧苄青霉素和卡那霉素。
(4 蛋白标准。
(5 Z-buffer (pH7.0 :Na2HPO4? 7H2O 16.1 g/LNaH2PO4? H2O 5.5 g/LKCI 0.75 g/LMgSO4? 7H2O 0.246 g/L(6 Z-buffer/X- β-Gal 液体 :Z-buffer 100 mlβ-巯基乙醇 0.27 mlX-β-Gal 储存液 1.67 ml5.实验方法酵母的复苏与表型验证 :(1 复苏前 1~2 天,配制 YPDA 琼脂并于高压消毒后倒板。
(2 用无菌接菌环在酵母冻存管中挑取一小团酵母细胞,接种到 YPDA 琼脂板上。
(3 30 ℃倒置孵育 3~5 天。
(4 待酵母长到直径2~3 mm 后 ,将其接种到不同营养缺陷型培养基上进行表型验证。
质粒转化酵母细胞 (常规转化 :(1 挑取一直径约 2~3 mm 的酵母克隆接种到0.5 ml YPDA 培养基中。
(2 剧烈震荡使细胞凝块均匀分散。
(3 将细胞转移到含有新鲜YPDA 培养基的锥形瓶中。
(4 30℃, 250 rpm,振荡孵育 16~18 hr,直到稳定期 (OD 600>1.5 。
(5 将过夜培养物转移到含有新鲜YPDA 培养基的椎形瓶中 ,进一步扩增酵母细胞。
(6 30 ℃, 230~270 rpm,振荡孵育使 OD 600 达到 0.5±0.1(一般需要3 hr(7 将细胞转移到数个50 mL 离心管中 ,转速 1 000 g,室温离心 5 min。
(8 弃去上清 ,加入 25~50 mL 消毒 H 2O ,振荡重悬、清洗并收集细胞。
(9 转速 1 000 g,室温离心 5 min,弃上清(10 加入 1 mL 新鲜配置的无菌的1Х TE / LiAC 重悬细胞。
(11 准备 1.5 mL 无菌 EP 管,在每个管中加入需要转染的质粒以及担体(carrier DNA 。
(12 加入经 1Х TE/LiAC 重悬的感受态细胞 ,轻柔混匀。
(13 每个管中加入适量体积的1? PEG/LiAC, 高速震荡混匀。
(14 30 ℃, 200 rpm,振荡孵育 0.5 hr。
(15 加入适量体积的DMSO , 温和颠倒混匀 ,不要振荡。
(16 42 ℃水浴热休克 15 min,对于大量转化 ,应经常摇动以混匀。
(17 置于冰上 5~10 min,室温 12,000 ? g 离心细胞 5 sec。
(18 移去上清 ,根据铺的板数加入适量体积的1? TE 重悬细胞。
(19 铺板 ,倒置平板于 30 ℃孵育直到克隆出现。
检测目的蛋白在酵母细胞中的表达:(1 挑取一直径约 2 mm、含有目的蛋白基因片段的BD/X 新鲜酵母克隆于 5 mL 相应营养缺陷液体培养基中 , 30 ℃、 230 rpm 振荡孵育 16 hr。
(2 将过夜培养物在 50 mL YPDA 培养基中扩大培养 , 30 ℃ , 220~250 rpm, 使 OD 600 值达到 0.4~0.6。
(3 1,000 ? g 离心 5 min,弃上清。
(4 加入 30 mL H2O ,重悬细胞。
1,000 ? g,离心 5 min,弃上清 ,加入液氮速冻沉淀。
(5 待液氮挥发完全以后 ,按照 100 μ L/7.5 OD600 的比例加入 cracking buffer 重悬细胞并移入到一个小量转化大量转化质粒 DNA0.1μ g 20~200μ g carrierDNA 0.1 mg 2 mg 质粒*7 每管中加入感受态细胞的体积根据酵母细胞的数量以及铺板的大小而定 , 通常小量转化每管加入100 μL的感受态细胞; 大量转化每管加入1 mL 的感受态细胞。
酵母双杂交实验流程(精)

模块七蛋白质之间的相互作用1. 实验目的本实验以重组质粒和酵母细胞为材料, 学习检测蛋白质相互作用的基本原理和技术方法。
主要介绍酵母双杂交的基本原理与操作技术; 让学生了解和掌握酵母双杂交系统的应用; 掌握酵母感受态的制备的基本原理和主要的操作步骤。
2. 实验原理1989年 Fields 和 Song 等人根据当时人们对真核生物转录起始过程调控的认识(即细胞内基因转录的起始需要转录激活因子的参与 ,提出并建立了酵母双杂交系统。
该系统作为发现和研究活细胞体内的蛋白质与蛋白质之间的相互作用的技术平台,近几年得到了广泛的运用和发展。
相比于其它蛋白质筛选系统,酵母双杂交系统具有以下优点:(1检测在真核活细胞内进行,在一定程度上代表细胞内的真实情况。
(2作用信号是在融合基因表达后,在细胞内重建转录因子的作用而给出的,省去了纯化蛋白质的繁琐步骤。
(3检测结果是基因表达产物的积累效应,因而可检测存在于蛋白质之间的微弱或暂时的相互作用。
(4酵母双杂交系统可采用不同组织、器官、细胞类型和分化时期材料构建cDNA 文库,能分析细胞质、细胞核及膜结合蛋白等多种不同亚细胞部位及功能蛋白。
(5 通过 mRNA 产生多种稳定的酶使信号放大。
同时,酵母表型、 X-Gal 及HIS3 蛋白表达等检测方法均很敏感。
酵母双杂交系统也具有一定的局限性。
首先, 经典的双杂交系统分析蛋白间的相互作用定位于细胞核内, 因而限制了该系统对某些细胞外蛋白和细胞膜受体蛋白的研究。
酵母双杂交系统的另一个局限性是“假阳性” 。
在酵母双杂交系统建立的初期阶段,由于仅仅采用β-半乳糖苷酶这一单一的报告基因体系,这种报告基因的表达往往不能十分严谨地被控制,因此容易产生假阳性。
由于某些蛋白本身具有激活转录的功能或在酵母中表达时发挥转录激活作用, 使 DNA 结合结构域融合蛋白在无特异激活结构域的情况下也可被激活转录。
另外某些蛋白表面含有对多种蛋白质的低亲和力区域, 能与其他蛋白形成稳定的复合物,从而引起报告基因的表达,产生“假阳性”结果。
酵母双杂实验操作手册和注意事项
酵母双杂(Yeast two-hybrid)实验操作手册和注意事项一. 酵母双杂的原理1989年,Song和Field建立了第一个基于酵母的细胞内检测蛋白间相互作用的遗传系统。
很多真核生物的位点特异转录激活因子通常具有两个可分割开的结构域,即DNA特异结合域(DNA-binding domain,BD)与转录激活域(Transcriptional activation domain ,AD)。
这两个结构域各具功能,互不影响。
但一个完整的激活特定基因表达的激活因子必须同时含有这两个结构域,否则无法完成激活功能。
不同来源激活因子的BD区与AD结合后则特异地激活被BD结合的基因表达。
基于这个原理,可将两个待测蛋白分别与这两个结构域建成融合蛋白,并共表达于同一个酵母细胞内。
如果两个待测蛋白间能发生相互作用,就会通过待测蛋白的桥梁作用使AD与BD形成一个完整的转录激活因子并激活相应的报告基因表达。
通过对报告基因表型的测定可以很容易地知道待测蛋白分子间是否发生了相互作用。
酵母双杂交系统由三个部分组成:(1)与BD融合的蛋白表达载体,被表达的蛋白称诱饵蛋白(bait)。
(2)与AD融合的蛋白表达载体,被其表达的蛋白称靶蛋白(prey)。
(3)带有一个或多个报告基因的宿主菌株。
常用的报告基因有HIS3,URA3,LacZ和ADE2等。
而菌株则具有相应的缺陷型。
双杂交质粒上分别带有不同的抗性基因和营养标记基因。
这些有利于实验后期杂交质粒的鉴定与分离。
根据目前通用的系统中BD来源的不同主要分为GAL4系统和LexA系统。
后者因其BD来源于原核生物,在真核生物内缺少同源性,因此可以减少假阳性的出现。
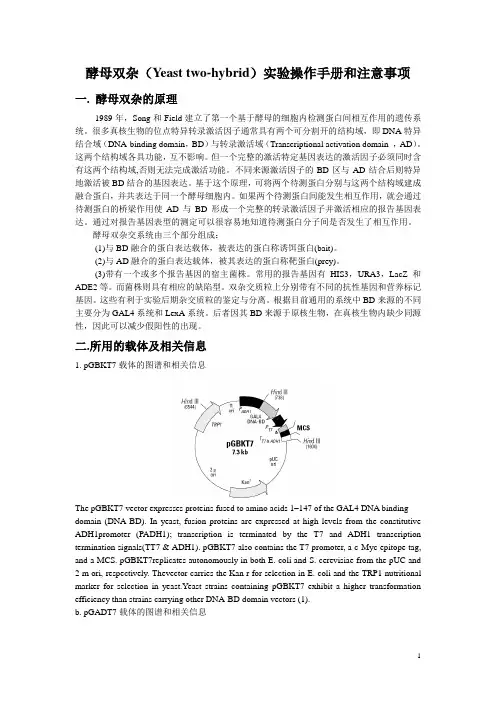
二.所用的载体及相关信息1. pGBKT7载体的图谱和相关信息The pGBKT7 vector expresses proteins fused to amino acids 1–147 of the GAL4 DNA binding domain (DNA-BD). In yeast, fusion proteins are expressed at high levels from the constitutive ADH1promoter (PADH1); transcription is terminated by the T7 and ADH1 transcription termination signals(TT7 & ADH1). pGBKT7 also contains the T7 promoter, a c-Myc epitope tag, and a MCS. pGBKT7replicates autonomously in both E. coli and S. cerevisiae from the pUC and 2 m ori, respectively. Thevector carries the Kan r for selection in E. coli and the TRP1 nutritional marker for selection in yeast.Yeast strains containing pGBKT7 exhibit a higher transformation efficiency than strains carrying other DNA-BD domain vectors (1).b. pGADT7载体的图谱和相关信息pGADT7-T encodes a fusion of the SV40 large T-antigen (a.a. 86–708) and the GAL4 AD (a.a. 768–881). The SV40 large T DNA (GenBank LocusSV4CG) was derived from a plasmid referenced in Li & Fields (1993) and was cloned into pGADT7 using the EcoR I and Xho I sites. pGADT7-T has not been sequenced.三.实验主要流程A.需要准备的药品和设备1.两种酵母菌种(AH109,Y187)2.酵母培养所需的药品: Yeast nitrogen base without amino acidsAgar (for plates only)sterile 10×Dropout Solution单缺-T,-L(clontech公司)二缺-T/-L (clontech公司)四缺-T/-L/-Ade/-His(clontech公司)3.酵母转化所需的药品: 10×TE buffer10×LiAc40%PEGcarrier DNA4.酵母显色所需要的药品: x- -GAL5.其他仪器设备: 30℃恒温培养箱30℃摇床.水浴锅分光光度计B.DNA-BD和DN-AD fusion protein 载体的分别构建。
酵母双杂交实验
酵母双杂交实验酵母双杂交相关实验方法一、酵母总DNA提取方法(蜗牛酶法)1。
酵母质粒提取试剂bufferi0.9mol/lsorbitol0.1mol/ledtabufferii50mm/ltris20mm/ledtabufferiii10mm/l tris1mm/ledta2、操作步骤:(1)收集新鲜细菌,加入150μlbufferi、25μL蜗牛酶(30mg/ml)(2)37℃水浴1小时。
(3)10000rpm离心10min,去上清,沉淀中加入250μlbufferii。
(4)加入25μl10%sds,65℃水浴30min,每间隔5min中震荡一次。
(5)加入25μl5mol/l醋酸钾,冰浴60min。
(6)4℃12000rpm离心15min,取上清。
(7)向上清液中加入2-3倍体积的无水乙醇,充分混合,并在-20℃下静置1小时以上。
(8)取出,在4℃12000rpm下离心15分钟,丢弃上清液。
(9)加入150μlbufferiii溶解沉淀,用等体积苯酚/氯仿/异戊醇抽提。
(10)12000rpm离心15min。
(11)将上清液转移到新的离心管中,并添加6μl(10u/μl)核糖核酸酶,在37℃下放置30分钟。
(12)取上清液并添加等量的异丙醇。
(13)在4℃下静置10分钟超过1小时或过夜。
(14)在4℃下以10000 rpm离心5分钟。
(15)弃上清,并把沉淀溶于10μlbufferiii中。
二、小规模酵母转化1、酵母转化试剂:除PEG过滤灭菌外,其他转化试剂需要在与普通培养基灭菌相同的条件下进行高温高压灭菌。
(1)m醋酸锂(lithiumacetate)(2)聚乙二醇(PEG)分子量3350,浓度50%(w/V)(3)PEG/liac溶液的制备(即用)800μl50%peg100μl10×te100μl10×liac1ml总体积(4)1.1×TE/liac溶液(用于使用和制备)11ml10×TE(5)11ml10×liac(6)78mlddh202。
酵母双杂交技术流程

酵母双杂交技术流程
酵母双杂交技术是一种用于鉴定蛋白质相互作用的实验方法,它可以识别某个蛋白质与其他蛋白质之间的相互作用关系。
以下是酵母双杂交技术的流程:
1. 构建酵母菌株:将感兴趣的两个蛋白质编码序列分别克隆至酵母表达载体中,并插入适当的启动子和终止子后,将其转化至酵母细胞中,并筛选出正确的菌株。
2. 转化酵母菌株:将构建好的酵母菌株分别转化至两个含有互补杂交部位的酵母菌株中,使其产生可杂交的菌株。
3. 筛选正面杂交菌株:通过选择菌株在适当培养基中的生长情况或染色体特征,筛选出正面杂交的菌株。
4. 验证杂交结果:通过进一步实验验证杂交结果的准确性,例如,利用质粒转染或重组DNA重组实验等方法。
5. 鉴定蛋白质相互作用:最终确定两个蛋白质之间的相互作用关系,并进一步研究其生物学意义。
- 1 -。
630490 酵母双杂交文库构建实验流程(clontech)

第一链cDNA合成1.准备: 高质量的Poly A 或总RNA2. 在微量离心管中混匀以下试剂:1–2 μl RNA 样本(0.025–1.0 μg poly A+或0.10–2.0 μg 总RNA)1.0 μl CDS III 或CDSIII/6 引物1–2 μl 去离子水(补齐体系到4.0 μl)4.0 μl 总体积注意: 对照实验时,请使用1μl *1μg+ 的对照RNA。
CDSIII = Oligo-dT;引物CDSIII/6 =随机引物3. 72°C ,孵育2 min。
4. 冰上冷却2 min,然后14000rpm,10sec,瞬时离心。
5. 混合以下试剂,将混合液加入Step4中的经过变性且结合有引物的RNA样本中,轻拍混匀。
2.0 μl 5X First-Strand 缓冲液1.0 μl DTT (100 mM)1.0 μl dNTP 混合物(10 mM )1.0 μl SMART MMLV 反转录酶6. 只有使用随机引物(CDSIII/6)实验才进行此步骤[如果采用Oligo-dT(CDSIII)请忽略此步骤,直接进行Step7],25°C,室温孵育10 min。
7. 42°,孵育10 min。
注意: 孵育在热盖的PCR仪中进行。
若用非热盖的PCR仪或水浴,请在反应管中加入一滴矿物油来避免水分蒸发。
8. 加入1 μl SMART III-modified oligo,混匀,42°C,孵育1 hr。
9. 75°C ,10 min终止第一链合成反应。
10. 室温冷却,加入1 μl RNA酶H (2U)。
11. 37°,孵育20 min。
12. 继续进行LD-PCR 扩增(Section VII.B)。
注意: –20°C下可保存3个月。
第一链反应最终体积为15μl• 10 μl SMART III Oligo(10 μM; 5’-AAGCAGTGGTATCAACGCAGAGTGG CCATTATGGCCGGG-3’)• 10 μl CDS III 引物(10 μM; 5’-AT TCTAGAGGCCGAGGCGGCCGACA TG-d(T)30VN-3’)*23个碱基• 10 μl CDS III/6 引物(10 μM; 5’-AT TCTAGAGGCCGAGGCGGCCGACA TG-NNNNNN-3’)注意: N = A, G, C, or T; V = A, G, or C• 50 μl 5’ PCR 引物(10 μM; 5’-TTCCACCC AAGCAGTGGTATCAACGCAGAGTGG-3’)25个碱基•50 μl 3’ PCR 引物(10 μM; 5’-GTATCGATGCCCACCC TCTAGAGGCCGAGGCGGCCGACA-3’)第二链cDNA合成(LD-PCR)尽量使用最小的循环数来得到3-6ug的ds cDNA。
酵母双杂交操作步骤

(酵母菌储存在-70℃中,引物和质粒DNA储存在-20℃中)概念:1. 次序转化:指的是先将一种质粒转化进酵母中(常是DNA-BD/bait plasmid),在选择培养基中选择出阳性克隆,之后再将另外一个质粒(AD fusion library)转化进去。
优点:就是比共转化使用更少的质粒DNA,也就是节约质粒DNA。
2. 共同转化:将两种质粒一起转化进酵母中。
优点:比次序转化更容易操作。
pGBKT7----的选择物是:kanamycin(卡那霉素)pGADT7----的选择物是:ampicillin (氨苄西林)各种SD培养基:1)SD/-ade(腺嘌呤)/-leu(亮氨酸)/-trp(色氨酸)/-his (组氨酸)(1000 ml)(“四缺”)酵母氮源(YNB): ;-ade/-leu/-trp/-his DO supplement 0.60g (购买来就配好的) ;葡萄糖20g (即2%)2)SD/-leu/-trp/-his (1000 ml)酵母氮源(YNB): ;-leu/-trp/-his DO supplement 0.62g ; (购买来就配好的)葡萄糖 20g. (即2%)3)SD/-leu/-trp (1000 ml) (“二缺”)酵母氮源(YNB): ;-ade/-leu/-trp/-his DO supplement 0.64g (购买来就配好的);葡萄糖 20g (即2%)4)SD/-leu (1000 ml)酵母氮源(YNB): ;-leu DO supplement 0.69g ; (购买来就配好的)葡萄糖 20g (即2%)5)SD/-trp (1000 ml)酵母氮源(YNB): ;-ade/-leu/-trp/-his DO supplement 0.74g ; (购买来就配好的)葡萄糖 20g (即2%)注意:YNB有两种,一种含有硫酸胺,另外一种不含硫酸胺。
酵母双杂交具体实验流程
酵母双杂交具体实验流程
酵母双杂交(Yeast Two-Hybrid,Y2H)是一种常用的蛋白质相互作用分析方法,它基于酵母细胞内存在的转录激活子结合域(Transcription Activation Domain,TAD)和DNA结合域(DNA Binding Domain,DBD),通过融合特定的蛋白质序列并在酵母细
胞中共同表达,以实现筛选并鉴定蛋白质相互作用的目的。
酵母双杂交具体实验流程如下:
1.构建启动子驱动的酵母表达载体
该载体包含两部分:AD与DB,分别携带TAD和DBD结构域。
这些结构域可以具体化作为外源蛋白的两个互补部分,这样当它们相互结
合时,激活酵母内的报告基因(RLUC或LacZ)表达,并通过信号放
大器Cre的介入增强了信号。
2.构建融合基因的酵母表达载体
将想要研究的两种蛋白质的氨基酸序列分别连接到AD与DB的C端,形成融合蛋白质基因,然后将融合基因与启动子驱动的表达载体转化
入双杂交酵母细胞。
3.获得蛋白质相互作用的筛选和确认
通过对酵母双杂交转化后的细胞进行筛选,并通过对表达的信号进行观察和测量,得到蛋白质相互作用的筛选结果。
4.确定筛选结果的真实性
在确定特定蛋白质相互作用是否真实的过程中,通常会进行一些补充实验。
例如,可以通过分析生化反应,并利用免疫共沉淀等方法验证筛选结果的可靠性。
总的来说,酵母双杂交是一种常用的蛋白质相互作用分析方法,它可以快速、可靠地鉴定蛋白质相互作用,从而帮助研究者更深入地探究蛋白质的功能和作用机制。
酵母双杂实验步骤
酵母双杂实验步骤2.1.1酵母双杂交2.1.1.1Gateway入门克隆设计Gateway引物时,在上游引物的5'端加上B1序列:GGGG-ACA-AGT-TT G-TAC -AAA-AAA-GCA-GGC-TNN-,下游引物的5'端加上B2序列:GGGG-ACC-ACT-TT G-T AC-AAG-AAA-GCT-GGG-TN-。
其中,5'-GGGG序列是保护碱基,防止引物的重要部分被降解,下划线加粗的部分是在整个的Gateway克隆中可以保存下来的序列,3'端的碱基N是为了保证经过入门载体构建目的载体时阅读框的正确性,一般建议为C。
通过PCR扩增获得带有att B位点的基因片段,扩增体系和条件见3.2.2.2,其中将退火温度改为65℃。
获得扩增产物后对其进行回收纯化,测定纯化后DNA 的质量和浓度后进行下一步的BP反应,反应体系如下:att B-PCR产物(≥10 ng/μL)1-7μLpDONR221 (150 ng/μL)1μLTE buffer, pH 8.0 补足8μL将上述混合物加入离心管中,加入2μL BP反应酶,加入之前需将其在涡旋仪上轻轻振荡两次,所有组分混匀离心后,25℃反应1h,加入1μL蛋白酶K后,混匀离心,37℃反应10min终止BP反应,将BP 反应产物参照3.2.2.6进行转化,由于pDONR221载体为Kan抗性,所以选用含有50μg/mL Kan抗生素的LB平板进行阳性克隆筛选,参照3.2.2.7检测阳性克隆,然后根据3.2.2.8中的方法提取重组质粒,测定质量和浓度后送至测序公司进行测序。
进行BP反应时,需注意以下几项:(1)对于BP反应来说,最高效的是采用线性的att B-PCR产物和超螺旋的att P入门载体;(2)为了提高BP反应的效率,可以将建议的25℃反应1h适当延长至4-6h,可以将效率提高2-3倍,或者延长至过夜反应,可以将效率提高5-10倍,对于长片段克隆来讲,适当的延长反应时间是非常必要的;(3)提高体系中PCR产物的量可以增加反应效率,但每10μL体系中PCR产物最好不要超过250ng。
酵母双杂交操作步骤
(酵母菌储存在-70℃中,引物和质粒DNA储存在-20℃中)概念:1. 次序转化:指的是先将一种质粒转化进酵母中(常是DNA-BD/bait plasmid),在选择培养基中选择出阳性克隆,之后再将另外一个质粒(AD fusion library)转化进去。
优点:就是比共转化使用更少的质粒DNA,也就是节约质粒DNA。
2. 共同转化:将两种质粒一起转化进酵母中。
优点:比次序转化更容易操作。
pGBKT7----的选择物是:kanamycin(卡那霉素)pGADT7----的选择物是:ampicillin (氨苄西林)各种SD培养基:1)SD/-ade(腺嘌呤)/-leu(亮氨酸)/-trp(色氨酸)/-his (组氨酸)(1000 ml)(“四缺”)酵母氮源(YNB): ;-ade/-leu/-trp/-his DO supplement 0.60g (购买来就配好的) ;葡萄糖20g (即2%)2)SD/-leu/-trp/-his (1000 ml)酵母氮源(YNB): ;-leu/-trp/-his DO supplement 0.62g ; (购买来就配好的)葡萄糖 20g. (即2%)3)SD/-leu/-trp (1000 ml) (“二缺”)酵母氮源(YNB): ;-ade/-leu/-trp/-his DO supplement 0.64g (购买来就配好的);葡萄糖 20g (即2%)4)SD/-leu (1000 ml)酵母氮源(YNB): ;-leu DO supplement 0.69g ; (购买来就配好的)葡萄糖 20g (即2%)5)SD/-trp (1000 ml)酵母氮源(YNB): ;-ade/-leu/-trp/-his DO supplement 0.74g ; (购买来就配好的)葡萄糖 20g (即2%)注意:YNB有两种,一种含有硫酸胺,另外一种不含硫酸胺。
酵母双杂交
酵母双杂交(筛库)pGBK-gene 转化酵母1.酵母细胞(AH109)划线,YPDA平板,30°C烘箱培养18-20小时。
2.挑取单细胞菌落,在YPDA培养基中,30°C摇床培养18-20小时至菌液饱和。
3.次日,取饱和的酵母培养液5ml转接至100mlYPDA培养基中,30°C摇床培养2h,测定OD600,直至OD600达到0.5左右。
4.(超净台下工作,下同)将上述菌液分装在2只50ml离心管(灭菌)中,室温下3000rpm离心5min。
5.弃上清,重悬于20ml无菌水中,3000rpm离心5min。
6.弃上清,重悬于10ml 1×TE/LiAc溶液中,3000rpm离心5min。
7.弃上清,重悬于500μl 1×TE/LiAc溶液中,室温温育10min。
8.取eppendorf管,每管加100μl酵母细胞、5μl鲑鱼精DNA(10mg/ml,用之前沸水煮2-3min,立即放冰上)、15μl DNA(pGBK连接的基因)。
9.加入280μl PEG/LiAc 溶液,30°C放置45min(可摇)。
10.42°C热激10min,立即放冰上2min。
11.室温下6000-8000rpm离心20~30s,去上清。
12.重悬于500μl无菌水中,取100-200μl涂在SD-trp板上,30°C烘箱培养48-72h。
酵母大规模转化AD文库1.挑取上述SD-trp板上的pGBK连的基因转化子,YPDA培养基中培养至饱和。
2.将上述转化子转接至200mlYPDA培养基中,30°C培养至OD600 0.5-0.6左右。
3.离心收集菌体,20ml无菌水洗涤,3000rpm离心5min。
4.去上清,重悬于20ml 1×TE/LiAc溶液中,3000rpm离心5min。
5.去上清,合并菌体于一管,1ml TE/LiAc溶液悬浮菌体。