
酶促反应动力学(有方程推导过程)
酶促反应动力学米氏方程
酶促反应动力学米氏方程摘要:1.酶促反应动力学的基本概念2.米氏方程的推导过程3.米氏方程的应用4.酶促反应动力学的影响因素5.总结正文:一、酶促反应动力学的基本概念酶促反应动力学是研究酶促反应速度及其影响因素的科学。
在酶促反应中,酶作为催化剂,可以降低反应所需的活化能,从而加速反应速率。
酶促反应动力学主要研究酶浓度、底物浓度、温度、pH、抑制剂和激活剂等因素对反应速率的影响。
二、米氏方程的推导过程米氏方程是描述酶促反应速度与底物浓度之间关系的经典方程。
其推导过程如下:1.假设酶分子的数量为[E],底物浓度为[S],酶促反应速度为v。
2.酶在催化过程中会与底物结合形成酶- 底物复合物(ES),此过程为慢反应。
3.酶- 底物复合物在达到一定程度后会分解为酶和产物,此过程为快反应。
4.根据慢反应和快反应的速率常数,可以得到酶促反应速度的表达式。
5.将表达式中的慢反应和快反应速率常数用米氏常数(Km)表示,即可得到米氏方程:v = (Km * [S]) / (Km + [S])三、米氏方程的应用米氏方程可以用于分析酶促反应的动态过程,预测反应速度与底物浓度的关系,以及研究酶的结构与功能。
此外,通过比较不同底物和酶的米氏方程,可以了解酶的专一性和底物选择性。
四、酶促反应动力学的影响因素酶促反应动力学受到多种因素的影响,主要包括:1.酶浓度:在一定范围内,酶浓度的增加会提高反应速率,但当酶浓度达到饱和时,反应速率不再随酶浓度增加而提高。
2.底物浓度:底物浓度的增加会提高反应速率,但当底物浓度达到一定程度时,反应速率不再随底物浓度增加而提高。
3.温度:温度的升高会加速反应速率,但过高的温度会导致酶失活,使反应速率降低。
4.pH:酶的活性受pH 值的影响,pH 值的改变会影响酶的催化效率。
5.抑制剂和激活剂:抑制剂会降低酶的催化效率,而激活剂会提高酶的催化效率。
五、总结酶促反应动力学是研究酶促反应速度及其影响因素的科学。
酶促反应动力学

第一节 酶促反应的动力学方程
一、化学动力学基础
1、反应分子数和反应级数 1)反应分子数
指在反应中真正相互作用的分子数。
A
P
A+B
P+Q
2)反应级数
指实验测得的反应速率与反应物浓度之间的关系,符合 哪种速率方程,则这个反应就是几级反应。
蔗糖 + H2O 蔗糖酶 葡萄糖 + 果糖
1
3)零级反应的特征
反应速率与反应物浓度无关。初始浓度增加,反应速度不变, 要使反应物减少一半所需完成的反应量增加,因此最后表现为半 衰期与初始浓度成正比。
二、底物浓度对酶促反应的影响
1、酶促反应初速度与底物浓度之间的关系 1903年Henri以蔗糖酶水解蔗糖为例,研究底物浓度与酶促反
应速度之间关系时,发现两者的关系符合双曲线关系。
k2
Km= (k2+k3)/k1
Km是[ES]的分解常数与生成常数的比值。 Km的真正含义是, Km越大意为着[ES]越不稳定,越容易分解。但不能说明[ES]是容 易分解成底物还是产物。
kcat/Km可表示为 [k3/(k2 + k3)]k1, k3/(k2 + k3)代表[ES] 分解成产 物的分解常数占[ES] 总分解常数的比值。 k3/(k2 + k3)越大,说明 [ES]越容易分解成产物。 k1是[ES] 生成常数。因此, kcat/Km数 值大不仅表示[ES]容易生成,还表示[ES]易分解成产物。真正代 表酶对某一特定底物的催化效率。所以,也称为专一性常数。 极限值是k1 ,意为[ES]不会再分解为底物。
酶的化学本质是蛋白质,因此,酶 对温度具有高度的敏感性,随着温度 的升高,分子的构象会逐渐地被破 坏,失去催化活性。
[指南]kcat

第二节 酶促反应动力学一、酶促反应1913年,Michaelis 和Menten 根据Henri 等提出的酶-底物复合物学说,用简单的快速平衡或准平衡概念推导了单底物的酶促反应方程,即米-曼氏方程(Michaelis-Menten equation )。
酶促反应可表示为:k 1 k 2E + S ES E + Pk -1酶 底物 酶-底物复合物 酶 产物根据公式进行推导,反应速率(V 0或v )与底物浓度[S]、酶浓度[E]和产物浓度[P]的关系如下:[S]Km Vmax[S][S]Km [E][S]k dt [P]dt [S]Vo 2+=+=== 式中Vmax 为最大反应速率。
这一公式与根据快速平衡学说推导的米-曼氏原始方程形式相同,区别在于用米氏常数Km 取代了复合物ES 的解离常数Ks ,因此仍称为米-曼氏方程。
二、Km 与Vmax(一)Km若v=0.5Vmax ,则Km=[S],可见Km 值等于酶促反应的初速率为最大速率Vmax 一半时的底物浓度。
Km 值一般在10-6~10-2mol/L 之间。
Km 只与酶的性质有关,而与酶的浓度无关。
Km 是酶的特征性常数之一,在临床酶学分析中有重要意义。
1. 1/Km 可近似地表示酶对底物的亲和力的大小,Km 值越小,表示酶与底物的亲和力越大,反之亦然。
2. 如果一个酶有几种底物,则对每一种底物各有一个特定的 Km 值,其中Km 值最小的底物大都是该酶的最适底物或天然底物。
3.如已知酶的Km ,可计算某一底物浓度时反应速率v 和最大速率Vmax 的比值,并可推知酶的活性中心被底物饱和的分数。
同样,如要求v 和Vmax 有一定的百分比,也可算出所需底物浓度为其Km 的多少倍。
4.利用工具酶来测定体液中某一成分的浓度或某一酶的催化活性浓度时,可根据米-曼氏方程或其衍变方程式来计算工具酶的用量。
5.测定Km 值可鉴别不同来源但催化相同反应的酶是同一种酶或是同工酶。
2 酶促反应动力学(2)
2.2.4 抑制剂对酶促反应速率的影响首先应搞清失活作用与抑制作用的异同。
失活作用:指物理或化学因素部分或全部破坏了酶的三维结构,引起酶的变性,导致酶部分或全部丧失活性。
抑制作用:指酶在不变性条件下,由于活性中心化学性质的改变而引起酶活性的降低或丧失。
凡能使酶的活性下降而不引起酶蛋白变性的物质称做酶的抑制剂(inhibitor)。
使酶变性失活(称为酶的钝化)的因素如强酸、强碱等,不属于抑制剂。
通常抑制作用分为可逆性抑制和不可逆性抑制两类。
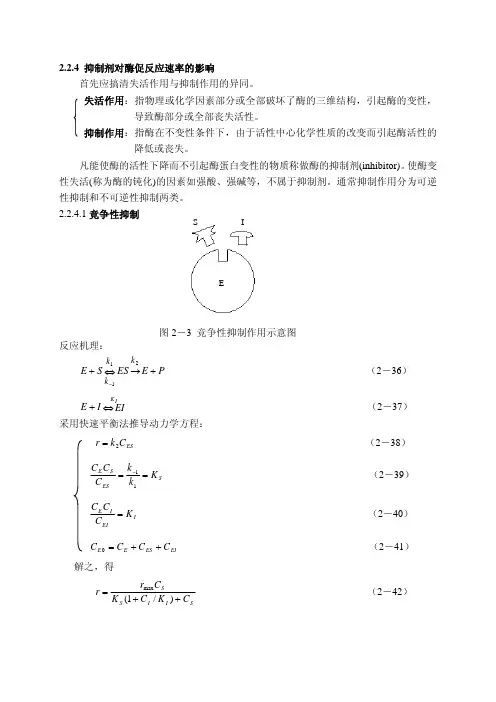
2.2.4.1竞争性抑制图2-3 竞争性抑制作用示意图 反应机理:P E ES S E k k k +→⇔+−211 (2-36)EI I E IK ⇔+ (2-37) 采用快速平衡法推导动力学方程:ES C k r 2= (2-38)S ES S E K k k C C C ==−11(2-39) I EIIE K C C C = (2-40) EI ES E E C C C C ++=0 (2-41)解之,得SI I S SC K C K C r r ++=)/1(max (2-42)E IS式中,02max E C k r =,11k k K S −=采用稳态法推导动力学方程:ES C k r 2= (2-43)0211=−−=−ES ES S E ESC k C k C C k dtdC (2-44)0=−=−EI i I E i EIC k C C k dtdC (2-45) EI ES E E C C C C ++=0(2-46)解之,得SI I m SC K C K C r r ++=)/1(max (2-47)式中: 02max E C k r =,121k k k K m +=− 令 )/1(I I m m K C K K +=′,(2-47)式可变形为Sm SC K C r r +′=max (2-48) 式中 m m K K >′将(2-48)式与米氏方程比较,可知最大反应速率测有变化,而K m 增大。
酶促反应动力学

ES + I Ki ESI
E+P
非竞争性抑制的双倒数方程:
3. 反竞争性抑制作用
• 抑制剂仅与酶和底物形成的中间产物(ES) 结合,使ES的量下降。这样,既减少从 ES转化为产物的量,也同时减少从ES解 离出游离酶和底物的量。
• 特点:Vmax和Km均降低。
E+S
ES + I Ki ESI
(三)Km值和Vmax值的测定
双倒数方程式: Km 1 1 1 + v = V Vmax max [S]
.
双倒数做图法: • 用于测Km值和Vmax值 • 用于判断可逆性抑制反应的性质
二、酶浓度对反应速度的影响
• 当[S]>>[E]时, [E]与v呈正比 关系。
三、温度对反应速度的影响
双重影响 • 最适温度:酶促反应速度最快时的环境 温度。 • 体内大多数酶的最适温度在35~40℃之 间。 • 最适温度不是酶的特征性常数。 • 低温不使酶破坏。
第三节
酶促反应动力学
研究的是酶促反应速度及其影响因素的 关系。 酶促反应速度:用单位时间内底物的 消耗量或产物的生成量表示 研究酶促反应动力学要采用初速度 初速度:反应速度与时间呈正比的阶 段。 反应10min. 或底物消耗在5%
影响因素: • 底物浓度([S]) • 酶浓度([E]) • 温度 • pH
1. 竞争性抑制作用
• 概念:抑制剂与酶的底物结构相似,可 与底物竞争酶的活性中心,从而阻碍酶 与底物结合形成中间产物,而抑制酶的 活性。
E+S +
ES
E+P
I
Ki
v= EI
Vmax [S] Km (1+
4.3酶促反应动力学

反应速率的测定:反应速率与时间的关系反应级数:一级反应一级反应的反应物消耗和产物形成与时间的关系曲线C [P]ln ———(a-x)(b-x)——a-x x 二级反应或与时间的关系二级反应(b-x)a-x k零级反应k零级反应x 与时间关系E + SE -S E -SE -P E -P E + P一级反应零级反应混合级反应底物浓度对酶催化反应初速率的影响VVmax[S]当底物浓度较低时反应速度与底物浓度成正比;反VVmax[S]随着底物浓度的增高反应速度不再成正比例加速;反当底物浓度高达一定程度[S]V Vmaxk1中间产物v[s]米氏方程曲线K m 值的推导K m 值mol/L V max V[S]K m V max /2k1K m的意义(1)(2)K m的意义(3)(4)(5)Vm 的意义-1/Km1/VmaxV maxK m [S]1[S]V mVK mV max1底物数酶分类催化反应酶种类占总酶百分率E + S1+ S2→ ES1S2→ EP1P2→ E + P1 + P2氨基酸的氨基转移反应当[S]>>[E]时,V max = k3[E]酶浓度对反应速度的影响在最适温度下,温度升高,活化分子增多,酶活性提高。
在最适温度上,温度升高,酶活性降低。
Vt/℃最适温度激活剂激活剂小结。
2.1 酶促反应动力学
ES
k+2
E+P
其中:k+1,k1,k+2——反应速度常数 E,S,ES,P——酶,底物,酶-底物复合物, 产物 根据Michaelis、Menten的单一底物的酶反应模 型,其假设条件为: (1 )在反应过程中,限制反应速度的反应是 ES到 E+P这一步反应; ( 2 ) E+S 到 ES 的反应在整个过程中始终处于动态 平衡; ( 3 )酶以酶游离状态E和酶- 底物复合物ES 的形式 存在,酶在反应过程中总浓度不变; (4)底物浓度比酶-底物络合物浓度要大得多。
k 2C E 0C S VmaxC S V CS CS Km Km
(1-4)
(1-5)
式中: Vmax——最大的酶促反应速度。
Vmax k 2 C E 0
(1-6)
1.1.2 Briggs-Haldane对M-M方程的修正 1925年 Briggs和Haldane认为在酶促反应过程 中,反应的中间体ES(酶-底物复合物)的浓度 不随反应时间而变化,即在酶促反应过程中,反 应的中间体ES的浓度处于稳定的状态,基于这一 假设所得到的酶促反应的模型称之为“稳定态理 论”。即
第二节
均相的酶促 反应动力学
1.1. 酶促反应的Michaelis-Menten方程 1.1.1. 酶促反应的Michaelis-Menten方程
Michaelis、Menten(1913)提出了单一底 物的酶反应模型,基本内容是:酶E的底物S首 先形成酶—底物复合物ES,在酶—底物复合物 ES的基础上反应生成产物P和酶E。反应式如下: E+S
(1-22)
总酶量为
C E 0 C E C ES C EI C IES
07-酶促反应动力学
17
(二)、可逆抑制和不可逆 抑制的动力学鉴别
加入一定量的抑制剂,以V~[E]作图
不可逆抑制剂:部分酶失活 原点右移, 斜率不变 当[E] > 不可逆抑制剂浓度 时能显现出酶的活性
可逆抑制剂:原点不变, 斜率下降
18
(三)、可逆抑制作用的动力学
1.竞争性抑制
底物、抑制剂和酶之间有如下平衡
S + E + I
ki2 ki1
k1 k2 k3
ES
P + E
k2 Km k1
ki 2 Ki ki1
EI Ki:抑制常数(inhibitor constant)
19
(三)、可逆抑制作用的动力学
溶液平衡时 [E] = [Ef ] + [ES] + [EI]
Arg127,Glu270,Tyr248,Zn2+
37
Ser48,His51,NAD+, Zn2+
4、活性中心位于酶表面的一个裂缝内
疏水微环境 使底物分子有效浓度很高 个别极性残基有利于催化作用
5、底物与酶通过弱相互作用结合
稳定酶与底物的结合
6、具有柔性
酶的活性中心易受影响
酶活性
一级序列决定三维结构 氨基酸残基提供了结构基础
Vmax [ S ] V Km [S ]
[S ] Km [S ] [S ] Km V Vmax Vmax Vmax Vmax
纵轴截距: Km/Vmax , 斜率: 1/ Vmax, 横轴截距: -Km
13
二、酶的抑制作用
能引起蛋白质失活的条件都影响酶的活力, 引致酶活性丧失的作用称为失活作用 抑制作用(inhibition): 引起酶活力降低或丧失的现象 抑制剂(inhibitor): 使酶发生抑制作用的物质
湖南农业大学生物化学04-酶学-02酶促反应动力学
(一)基本概念
失活(Inactivation) 使酶蛋白变性而引起酶活 力的丧失 变性剂 无 抑制(Inhibition) 酶的必需基团化学性质发 生改变,但酶没有变性,而导 致的酶活性的降低甚至丧失 有 选择性 抑制剂
抑制程度的表示方法: 不加抑制剂时的反应速率为v0,加抑制剂后的速率为vi 相对(残余)活力分数(a) 抑制分数(i) 指被抑制而失去活力的分数 a = vi / v0 i = 1 - a = 1 - vi / v0
二、底物浓度对酶反应速率的影响
(一)中间络合物学说
⊙
(二)酶促反应动力学方程式
⊙
Back
(一)中间络合物学说
1903年,Henri和Wurtz提出“酶底物中间络合物学说” 亦称 “中间产物学说”
E
+
S
k1 k2
ES
k3ELeabharlann +Pv Vmax
Henri用蔗糖酶水解蔗糖,得到双曲线
零级反应 混合级反应 一级反应 [S]
0.5 / 60 = K = 1/ 92000
766.7 S-1 Back
3、米氏常数的测定
基本原则:将米氏方程变化成相当于 y=ax+b的直线 方程,再用作图法求出Km。 双倒数作图法(Lineweaver-Burk法) 米氏方程的双倒数形式:
1 Km 1 1 — = —— . — + —— v Vmax [S] Vmax
不加抑制剂时的反应速率为v0加抑制剂后的速率为vi相对残余活力分数a抑制分数i指被抑制而失去活力的分数aviv0i1a1viv0二抑制作用的类型非专一性不可逆抑制作用irreversible酶的抑制作用专一性竞争性抑制competitive可逆抑制作用reversible非竞争性抑制noncompetitive反竞争性抑制uncompetitiveback可逆与不可逆抑制抑制剂与酶以非共价键结合而引起酶活力降低或丧失能用物理方法如透析超滤等除去抑制剂而使酶复活抑制作用是可逆的
第9章 酶促反应动力学
第九章酶促反应动力学第一节化学动力学基础一、反应速率及其测定二、反应分子数和反应级数反应分子数反应级数三、各级反应的特征(一)一级反应其速率与反应物浓度的一次方成正比。
-dc/dt=kclnc=-kt+lnc0lnc=-kt+B(直线)K=(1/t)ln(c0/c)c=(1/2)c0时k=(ln2)/t1/2t1/2=(ln2)/k半衰期与反应物的初始浓度无关。
(二)二级反应反应的速率与反应物浓度的二次方成正比。
1.若A和B为同一物质-dc/dt=kc2,dc/c2=-kdt;c/c0=1/(1+kc0t);c/c0=1/2时,k=1/c0t1/2。
2.A和B的初始浓度相同k=(1/t){x/[a(a−x)] }3.A和B的初始浓度不同k=[1/t(a−b)]/ln{[b(a−x)]/[a(b−x)]}a:反应物A的初始浓度。
b:反应物B的初始浓度。
(a-x):反应时间为t时A的浓度。
(b-x):反应时间为t时B的浓度。
(三)零级反应反应速率与反应物的浓度无关。
-dc/dt=k,或dx/dt=k。
X=kt,或k=x/t。
第二节底物浓度对酶反应速率的影响一、中间产物学说中间产物学说的实验依据:(1)核酸和酶的复合物可直接用电镜观察;(2)下图;(3)复合物的溶解度和稳定性有所变化;(4)有些复合物可直接分离得到。
酶催化的反应中各成份的变化:酶反应的速度在不停地变,实验上只有初速度的测定才有意义。
酶反应的初速度与底物浓度之间的关系:二、酶促反应的动力学方程式(一)米氏方程的推导米氏方程v=Vmax[S]/(Km+[S])符合v-[S]曲线。
若Km>>[S],v=(Vmax/Km)[S];若[S]>>Km,v=Vmax;由v=Vmax[S]/(Km+[S]),得Km=[S][(Vmax/v)-1],为典型的双曲线方程。
(二)动力学参数的意义1.Km的意义a.Km值等于反应速度达最大反应速度一半时的底物浓度,单位是浓度单位,是酶的特征常数,酶对一定的底物只有一个特定的Km:V/2=V[S]/(Km+[S]),则Km=[S]。