
1 细胞凋亡与缺血性脑损伤
1 细胞凋亡与缺血性脑损伤
内质网(endoplasmic reticulum,ER)在细胞内分布广泛,是真核细胞中重要的细胞器,其内膜表面积占细胞所有膜结构的50 %,体积占细胞总体积的10 %,参与重要的生理功能的维持,其基本生理功能包括负责蛋白质的合成转运、信号肽识别、糖基化修饰等过程以及钙离子的贮存和调节,信号转导及细胞内钙的再分布。内质网巨大的膜结构为细胞内活性物质的反应提供了一个广阔的平台,在许多信号调控中起到关键作用。最近的研究表明,内质网是细胞凋亡调节中的重要环节[1]。
细胞应激涉及线粒体、内质网、细胞核等细胞器的应激,他们既相对独立,又相互作用[2]。内质网是细胞加工蛋白质和贮存Ca2+的主要场所,对应激极为敏感,其功能紊乱时出现错误折叠与未折叠蛋白在腔内聚集以及Ca2+平衡紊乱的状态,称为内质网应激(endoplasmic
reticulum stress,ERS)[3]。ER非常敏感,葡萄糖/营养素缺乏、蛋白质糖基化抑制、二硫键形成障碍、蛋白质转运异常、Ca2+耗竭等刺激都可导致ER功能失调,发生内质网应激。内质网应激主要激活三条信号通路:未折叠蛋白反应(unfold protein response,UPR)、内质网超负荷反应(endoplasmic reticulumoverload response,EOR)和固醇调节级联反应。前两者是由于蛋白质加工紊乱所致,后者则是在ER表面合成的胆固醇损耗所致。
凋亡(apoptosis)又叫程序性细胞死亡,是指机体在生理条件下受到刺激后,经过多种信号传递导致细胞产生一系列生态和生化方面的改变而引起细胞程序性死亡的过程。自1972年John Korr第一次提出凋亡概念后,经三十多年的研究,目前已知有三条主要的细胞内信号转导通路来调控细胞凋亡:(1)线粒体通路;(2)死亡受体通路;(3)内质网通路。传统的观点认为,线粒体受损后能释放多种促凋亡物质,从而导致细胞凋亡。最近的研究表明,脑缺血后损伤内质网,导致内质网应激,最终通过多种途径致使神经元凋亡[4]。
脑血管病是危害人类生命和健康的常见病和多发病,其中缺血性脑中风占75 %—85 %。有关缺血性脑损伤的基础研究和临床治疗方面均取得很大进展。新近研究证实,在缺血半暗区确实发现有凋亡细胞和神经细胞再生。与急性缺血性神经元坏死相比,半暗区的侧枝循环尚未完全中断,因此,缺血性中风的治疗关键在于延长治疗时间窗和及时挽救缺血半暗带尚未死亡的神经元[5]。缺血再灌注(ischemia/reperfusion,I/R)时,缺氧、酸中毒、ATP耗竭、钙超载及大量自由基生成等均可作为诱导ERS的刺激因素,ERS在I/R损伤的发生发展中具有重要意义[6]。
2 脑缺血诱导的内质网应激及其引发的细胞凋亡
2.1 脑缺血后Ca2+浓度变化对内质网的影响及其引起的细胞凋亡
Paschen等发现,细胞在短暂性脑缺血时的变化与神经元内质网Ca2+稳态受到破坏后,都出现了内质网应激,显示内质网Ca2+稳态紊乱参与了缺血性脑损伤的病理生理学过程,内质网应激可能是脑缺血细胞损伤的关键环节[8]。 细胞内游离钙浓度的变化参与细胞内绝大多数信号传导,调节大部分的细胞功能。内质网是细胞内巨大的钙库,正常情况下,内质网内Ca2+浓度为0.1~1 mmol/L[11]。研究证明,多种刺激因素可以引起内质网内钙离子的动态变化,继而引发迅速或持久的改变,决定细胞的命运。一般情况下,内质网的Ca2+浓度主要依靠3种受体通道调节:内质网内吸收Ca2+钙泵,起释放Ca2+作用的莱恩素受体(ryanodine receptor,RyR)和三磷酸肌醇受体(IP3
receptor,IP3R)通道。内质网腔内的Ca2+主要发挥2种作用:一是释入胞质作为第二信使;二是在内质网腔内调节蛋白酶活性[12]。
脑缺血很容易造成内质网损伤,尤其是在再灌注损伤时。在缺血区,由于神经元缺少氧气和能量,引起跨膜离子浓度失衡,细胞膜去极化导致电压依赖性钙通道开放,突触前兴奋性氨基酸释放,其与突触后相应的受体结合后导致细胞外Ca2+内流;此外,缺氧产生的一氧化氮(NO)等也可使内质网中Ca2+释放。内质网Ca2+的释放在大量细胞凋亡实验中被证实[13]。内质网的钙释放参与Bad和Caspase 在不同诱因凋亡中的激活;三磷酸肌醇介导的Ca2+释放与凋亡直接相关。破坏内质网内Ca2+的稳态可以导致内质网应激,包括内质网超负荷反应以激活转录因子NFκB为主要特点,启动多种前炎性蛋白和细胞黏附分子的转录表达,对凋亡进行调控[14]。此外,内质网是完成蛋白质四级结构折叠形成的部位,在内质网内存在着多种相关的酶系统,实验证实,这些蛋白质中的大部分功能与Ca2+浓度的动态变化密切相关。因此,内质网内Ca2+稳态的改变可作用于内质网功能的多个环节,引发细胞凋亡[15]。
2.2 未折叠蛋白反应
蛋白质在内质网内的正确折叠需要许多分子伴侣蛋白协助,包括Bip/Grp78(immunoglobulin
binding protein78)和Grp94(glucoseregulated protein94)及折叠酶类如蛋白二硫异构酶和肽基脯氨酰逆转录异构酶。当内质网中未折叠或错误折叠的蛋白增多时,应激信号通过内质网膜传递到细胞核中,继而引起一系列特定的靶基因转录和蛋白质翻译水平下调, 以利于内质网蛋白折叠形成,使细胞继续存活,这种反应就是未折叠蛋白反应(UPR)[16]。
真核细胞有三种不同的机制处理内质网非折叠蛋白沉积:内质网伴侣蛋白基因转录的上调;蛋白质翻译减少;非折叠蛋白由内质网移入胞浆并被降解[17]。非折叠蛋白反应是细胞对抗内质网应激的自身保护机制,即使在正常生长状况下,新合成蛋白的非折叠和错误折叠也可发生,在真核细胞,它可发生于不同的亚细胞结构,如胞浆、线粒体和过氧化物酶体,发生于内质网可引起细胞的病理状态[18]。
内质网应激除了对Ire1α(inositol requiring enzymelα)和Ire1β(inositol requiring
enzymelβ)的影响,内质网应激也激活另外两个内质网穿膜蛋白:RNA激活蛋白激酶的内质网类似激酶(PKR like ER kinase,PERK)和激活作用转录因子(activating transcription
factor6, ATF6)。IRE1和PERK是内质网膜上的跨膜蛋白激酶, 在没有应激情况下,和Grp78/Bip形成稳定的复合物,而当蛋白错误折叠或未折叠蛋白增多时促使Grp78/Bip与其解离,然后IRE1和PERK的寡聚化及其自身磷酸化,刺激下游信号的激活。免疫荧光染色显示,BiP上调的缺血神经元呈现TUNEL染色阳性,提示IRE1介导的信号转导可能与缺血后神经元损伤有关[19]。PERK是惟一在脑缺血后被激活的真核细胞翻译起始因子2α激酶(eukaryotic initiation factor 2 alpha,eIF2α),严重脑缺血后内质网中未折叠蛋白显著增加。IRE1具有核酸内切酶功能,当被激活后能剪接无翻译活性的XBP1mRNA,并编码bZip转录因子,刺激内质网伴侣蛋白的基因转录。PERK的激活导致真核翻译因子(eIF2α)的磷酸化并终止翻译或阻止新合成的蛋白持续进入内质网。ATF6是含有bZip转录因子结构域的Ⅱ型跨膜蛋白,在非内质网应激状态下ATF6主要以酶原形式(P90ATF6)存在于内质网。活化后其胞浆区域可移位到细胞核,起亮氨酸拉链转录因子的作用[20]。当未折叠蛋白在内质网聚集增多时,ATF6向高尔基体转位,被S1P(site21protease)和S2P酶切成p50bZip转录因子到细胞核,并激活XBPI转录增加,导致UPR的活化。ATF6引起内质网应激元件基因启动子区域激活,这些基因包括提高蛋白在内质网腔折叠的蛋白,如Bip/Grp78和钙网膜蛋白等伴侣蛋白及CHOP/GADD153(生长停滞及DNA损伤基因,gene for growth
arrest andDNA damage)。CHOP由内质网应激诱导并在生长停止和细胞死亡中起作用,Ire1α和Ire1β,ATF6及PERK的活化均可对CHOP产生诱导,CHOP的激活是内质网应激反应的直接结果。CHOP/GADD153可降低Bcl2表达,使细胞谷胱甘肽耗竭引起细胞凋亡,但CHOP下游的级联尚未证实[21]。以往的研究主要集中在内质网应激时三种跨膜蛋白各自独立的作用,很少研究它们在内质网应激时信号激活的相互关系。
Ire1α同源物Ire1β具有核糖核酸酶活性,能切割28S rRNA,抑制蛋白翻译。Ire1α/Ire1β基因双敲除的细胞仍可发生穿过内质网膜的信号传导,表明在哺乳动物细胞内质网伴侣蛋白转录的调节涉及多条信号途径。DuRose等揭示了三种跨膜蛋白对不同形式的内质网应激时显示出不同的敏感性,初步探讨了IRE1、PERK、ATF6三种跨膜蛋白在调节信号传递时的不同特征和相互关系,但其确切的机制还需进一步研究[22]。
脑缺血再灌注诱导UPR的真正的生物学作用尚需进一步阐明。如前所述,人们已形成这样一种概念:脑缺血再灌注后数小时内,由于PERK介导的eIF2α磷酸化大量增加,诱导神经元出现蛋白合成抑制。研究表明,凋亡机制在迟发性神经元死亡这一病理学过程中起十分重要的作用。短暂性非致死性缺血,即缺血预处理可防止其后严重脑缺血引起的迟发性神经元死亡[23]。
2.3 内质网超负荷反应
哺乳动物细胞针对内质网应激还可激活内质网超负荷反应(endoplasmic reticulumoverload response,EOR),当大量膜蛋白在内质网沉积,核因子NFkB被活化,最终产生对前炎性蛋白及干扰素、白介素等细胞因子的诱导[24]。 这一反应可能与细胞抗病毒感染的保护有关。许多破坏蛋白折叠的刺激,如衣霉素、钙离子载体等对UPR和EOR都可激活,这两条途径的内质网应激反应有不同也有重叠。EOR因膜蛋白在内质网沉积引起,其通过NFkB的信号传导与UPR通过Grp的信号传导不同。
2.4 固醇调节级联反应
内质网膜含有固醇调节元件结合蛋白(sterolregulatory element binding protein ,SREBP)和SREBP裂解激活蛋白(SREBP cleavage2 activating protein ,SCAP)。SREBP含SREBP1和SREBP2两种异构体。SREBP在N2端含螺旋2环2螺旋激活结构域,中间有两个跨膜结构域,C2端是调节结构域。SREBP通过两个跨膜结构域锚定在内质网上,当膜上胆固醇水平升高时,SREBP和SCAP结构形成复合物而抑制胆固醇的合成。当胆固醇耗竭时,SREBP2SCAP复合物被释放并转移到高尔基体而被S1P酶切(S2P可能参与),成为活性因子易位到胞核而激活靶基因转录[25。
2.5 脑缺血后由caspase12活化引发的细胞凋亡
短暂性脑缺血后引发内质网应激,内质网应激性细胞凋亡不同于受体介导或线粒体介导的一种新的细胞凋亡途径。短暂性脑缺血时caspase12的表达升高。caspase12作为凋亡起始因子发挥了关键作用。凋亡对机体正常发育和组织平衡很重要,但凋亡过多或过少都会引起疾病。caspase是正常细胞程序化死亡和损伤依赖性凋亡的关键介质,在正常细胞作为一种基本成分表达,并与其抑制剂共存,以防意外激活而引起细胞损伤。作为治疗的靶标,caspase12有很好的安全性,因为caspase12基因敲除小鼠模型无明显发育或行为缺陷,肿瘤发生率正常。caspase12可能对正常发育或肿瘤形成并不重要,因此caspase12是较理想的抗凋亡治疗靶标[26]。
水苏碱调节Hippo-YAP信号通路对新生大鼠缺氧缺血性脑损伤的神经保护作用
水苏碱调节Hippo-YAP信号通路对新生大鼠缺氧缺血性脑损伤的神经保护作用
作者:李亚鹏 李琴 李莉 陈燕君 彭好
来源:《湖南中医药大学学报》2024年第02期
〔摘要〕 目的 探究水苏碱(stachydrine,STA)对缺氧缺血性脑损伤(hypoxic-ischemic
brain damage,HIBD)新生大鼠的神经保护作用,并分析其作用机制。方法 将新生SD大鼠随机分为假手术组、HIBD组、STA低剂量(5 mg/kg)组、STA中剂量(10 mg/kg)组、STA高剂量(20 mg/kg)组、维替泊芬(10 mg/kg)+STA高剂量(20 mg/kg)组,除假手术组外,其余大鼠构建HIBD大鼠模型。对各组大鼠进行神经功能缺损评分,采用Morris水迷宫实验进行认知功能评价,测定各组大鼠脑含水量和脑指数,HE染色、尼氏染色观察脑组织神经元损伤,TUNEL染色观察脑组织神经元细胞凋亡情况,Western blot法检测YES相关蛋白(YES
associated protein,YAP)、p-YAP、哺乳动物STE20样蛋白激酶1(mammalian sterile 20-like
kinase 1,MST1)、p-MST1、具有PDZ基序的转录共激活因子(transcriptional coactivator with
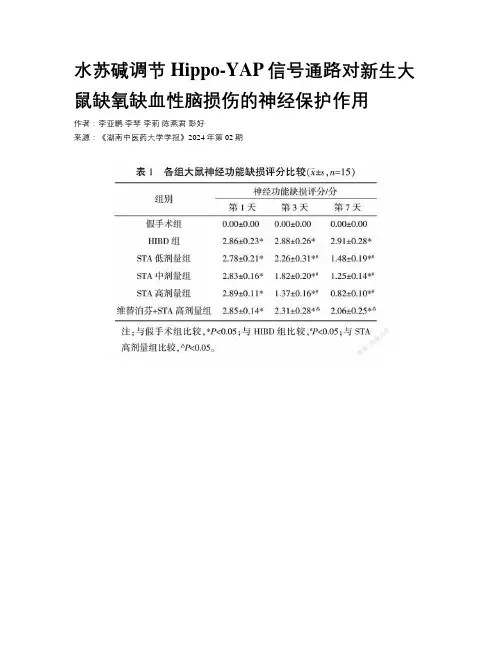
PDZ-binding motif,TAZ)蛋白表达。结果 与假手术组比较,HIBD组海马组织损伤加重,尼氏小体减少(P<0.05),神经功能缺损评分、逃避潜伏期、脑组织含水量、脑指数、神经元细胞凋亡率、p-YAP/YAP比值、p-MST1/MST1比值显著增加(P<0.05),穿越平台次数、TAZ表达显著降低(P<0.05);与HIBD组相比,STA低、中、高剂量组海马组织损伤改善,尼氏小体增加(P<0.05),神经功能缺损评分、逃避潜伏期、脑组织含水量、脑指数、神经元细胞凋亡率、p-YAP/YAP比值、p-MST1/MST1比值显著降低(P<0.05),穿越平台次数、TAZ表达显著增加(P<0.05);与STA高剂量组相比,维替泊芬+STA高剂量组海马组织损伤加重,尼氏小体减少(P<0.05),神经功能缺损评分、逃避潜伏期、脑组织含水量、脑指数、神经元细胞凋亡率、p-YAP/YAP比值、p-MST1/MST1比值显著增加(P<0.05),穿越平台次数、TAZ表达显著降低(P<0.05)。结论 STA可能通过调控Hippo-YAP信号通路、减少神经损伤和神经元细胞凋亡、改善神经功能,发挥对HIBD新生大鼠的神经保护作用。
脑缺血中细胞凋亡的多元调节及其保护机制

国外医学脑血管疾病分册2002年1月第l0卷第l期 脑缺血中细胞凋亡的多元调节及其保护机制 黄艳军晋光荣 摘要近年来的研究发现,神经元凋亡是缺血性脑损伤过程中神经元死亡的一种重要形式。文 章介绍了兴奋性氨基酸、氧自由基、神经元生存环境变化和凋亡基因的调控等因素对脑缺血细胞捅亡 过程的调节,表明可选择合适的神经保护剂进行于预治疗。 关键词脑缺血;细胞凋亡;神经保护 细胞凋亡在神经系统发育和可塑性中起重要作 用,在脊椎动物神经系统的发育过程中、约50%以 上的细胞经凋亡途径发生自然死亡,从而保证了神 经元数量的动态平衡 。以往认为、坏死是脑缺血 后神经元死亡的惟一方式,但自1993年以来,研究 发现缺血性卒中时,缺血中心的细胞很快死亡,而周 边区,尤其是半暗带的一些神经元呈现为凋亡的形 态学改变。脑缺血后,凋亡的发生既是凋亡相关基 因表达的结果,又受许多内外因素的调节。本文对 参与脑缺血神经元凋亡调节的多种因素和脑缺血的 保护机制作一综述。 1 参与缺血性神经元凋亡调节的多种因素 1.1兴奋性氨基酸和自由基 谷氨酸等氨基酸的兴奋毒性作用和自由基的毒 性作用在急性脑缺血细胞死亡、再灌注损伤和迟发 性神经元死亡中起重要作用 】 过去认为,谷氨酸 N/VlDA受体介导的兴奋毒r性引起的细胞死亡是通 过坏死途径实现的,然而近年来的研究表明,谷氨酸 受体夼导的兴奋毒性作用也可通过凋亡机制实 现 ,KA、AMPA和NMDA等受体的过度激活均可 诱导细胞凋亡。另一方面,自由基在神经元凋亡中 也起重要作用,在氧化应激的情况下,培养的神经元 会发生凋亡…,将自由基生成剂注入侧脑室20 min 后即有凋亡特征的DNA片段出现。现有的研究表 明,在谷氨酸兴奋毒性和自由基引起的细胞死亡中, 线粒体能量产生的动态平衡和兴奋性氨基酸、自由 基的浓度或剂量可能决定了神经元死亡的形式、程 度和进程 , 1.2细胞内钙超载 细胞内钙超载在缺血性神经元凋亡的发生中起 作者单位:210009南京,东南大学基础医学院神经生物学研究 ・69・ ・综述・ 关键作用。研究发现,c,a2 超载及其所触发的一系 列有害代谢是导致神经细胞死亡的“最后共同通 路”M。Takel等在胎鼠皮质神经元培养液中加入 c 载体,使细胞内C,a2一的浓度升高,可诱导神经 元凋亡,提示ca2 与迟发性神经元凋亡的发生有 关。诱导刺激一旦启动神经元细胞凋亡,就产生一 系列生物化学和代谢变化的连锁反应,先是细胞内 钙离子浓度增高,活化的C,a ̄- 、Mg 依赖性核酸内 切酶,使核染色质DNA降解成单个和寡核苷酸小 体,从而在琼脂糖凝胶电泳时呈现为特征性梯状 DNA图谱。ca 还能活化另一种Ⅱ型转谷氨酰胺 酶,使大量蛋白质发生交联,在脂质膜下形成蛋白质 网,防止胞浆内成分外漏,避免了如同坏死引起的炎 症反应,此酶还参与了凋亡小体的形成 。但亦有 相反的观点、认为c 在凋亡中的不同作用可能与 细胞类型有关 J。 1.3神经元生存环境的变化 发育过程中的神经元死亡不仅取决于靶细胞的 数量和体积、突触形成是否形成和突触后受体的特 性.而且还取决于靶细胞分泌的神经营养因子 (NTF),只有那些获得足够营养因子的神经元能够 存活,否则就会死亡 脑缺血时最重要的生长因子 奠过于NTF,包括神经生长因子fNGF)、脑源性神经 营养因子(BDNF)和神经营养因子-3(NT-3)等。全脑 缺血可短暂诱导NGF和BDNF mRNA的表达,却降 低了NT一3 mRNA的表达。此时,BDNF的高亲和性 受体trkBmRNA表达增加,而NT-3受体trkClnR- NA表达降低。局灶性脑缺血后在缺血中心区周围 也可见BDNF mRNA的迅速诱导。尽管尚未在海马 神经元发现NGF受体,但局部应用NGF却可使海 马CA1区神经元免于缺血性死亡。使用外源性 BDNF也可部分保护CAI区神经元以抵抗缺血性损 伤,
多巴胺与缺血性脑损伤的神经元凋亡

《国外医学》麻醉学与复苏分册2002年第23卷第5期 -269- 亡。近来研究发现,凋亡细胞较非凋亡细胞HSP70 表达的水平低,从而推测HSP70对缺血缺氧神经元 细胞产生保护作用【l4]。 缺血缺氧性损伤时脑组织内发生一系列生理 生化改变,如细胞内ATP减少,细胞内游离ca 水 平升高,兴奋性氨基酸增加等。这些改变与HSP70 之间有何联系,目前尚不清楚。越来越多的迹象提 示,HSP70对脑细胞有保护作用,可增加脑细胞对缺 血缺氧性损伤耐受性,抵抗进一步致死性损伤的作 用。然而,在缺血缺氧性脑损伤后HSP70表达的研 究中,有些结论并非完全一致,尚需进一步探讨。目 前一致认为,脑缺血缺氧后HSP70表达的改变,代 表细胞损伤后的功能状态并参与损伤后组织蛋白 的修复。HSP70的表达可作为细胞损伤的间接标志, 是评估缺血缺氧性脑损害的一项有效指标。 参考文献 1 Welch W.Physiol Rev,1992;72:1063 2 Gilby KL et a1.Mol Brain Res.1997:48:87 3 Donnelly TJ et a1.Circulation,1992;85:769 4 Marber MS et a1.Circulation.1993:88:1264 5 James P et a1.Science,1997;275:387 6 Schlesinger MJ et a1.J Biol Chem,1991;245;12111 7 Takemoto 0 et a1.Stroke.1995:26:1639 8 Mofimoto RI.Science,1993;259:1409 9 Sato S et a1.Neural Res,1992:14:375 10 Hasegawa K et a1.Brain 1997;750:1 11 Murphy SJ et a1.Brain Res,1996;727:145 12 Papadopoulos MC et a1.Neumreport,1996,7:429 13 Fourie AM et a1.J Biol Chem,1997;272(31):19471 14}{e L et a1.Exp Cell Res.1997:232:64
《头穴丛刺结合丰富环境对HIBD大鼠海马CA1区细胞凋亡及BDNF-TrkB通路相关蛋白的影响》

《头穴丛刺结合丰富环境对HIBD大鼠海马CA1区细胞凋亡及BDNF-TrkB通路相关蛋白的影响》
头穴丛刺结合丰富环境对HIBD大鼠海马CA1区细胞凋亡及BDNF-TrkB通路相关蛋白的影响一、引言
HIBD(缺氧缺血性脑病)是一种常见的神经系统疾病,其病理机制复杂,涉及细胞凋亡、神经元损伤等多个方面。近年来,头穴丛刺作为一种传统中医治疗方法,在脑部疾病的治疗中得到了广泛的应用。同时,丰富环境也被证实对神经系统功能恢复具有积极的影响。本研究旨在探讨头穴丛刺结合丰富环境对HIBD大鼠海马CA1区细胞凋亡及BDNF/TrkB通路相关蛋白的影响。
二、材料与方法
1. 实验动物与分组
实验采用Sprague-Dawley大鼠,通过缺氧法建立HIBD模型。将大鼠随机分为四组:对照组、HIBD组、头穴丛刺治疗组、头穴丛刺结合丰富环境治疗组。
2. 头穴丛刺治疗与丰富环境干预
头穴丛刺治疗采用传统中医治疗方法,对大鼠进行穴位刺激。丰富环境干预包括提供玩具、活动空间等,使大鼠在相对复杂的环境中活动。
3. 细胞凋亡检测
采用TUNEL法检测海马CA1区细胞凋亡情况。 4. BDNF/TrkB通路相关蛋白检测
采用免疫组化及Western Blot等方法检测BDNF(脑源性神经营养因子)及TrkB(BDNF受体)通路相关蛋白的表达水平。
三、结果
1. 细胞凋亡情况
实验结果显示,HIBD组大鼠海马CA1区细胞凋亡程度较高,而头穴丛刺治疗及结合丰富环境治疗后,细胞凋亡程度明显降低。其中,头穴丛刺结合丰富环境治疗组效果最为显著。
2. BDNF/TrkB通路相关蛋白表达水平
与对照组相比,HIBD组大鼠BDNF及TrkB通路相关蛋白表达水平降低。经过头穴丛刺治疗及结合丰富环境治疗后,相关蛋白表达水平明显提高。其中,头穴丛刺结合丰富环境治疗组提高最为明显。
四、讨论
本实验结果表明,头穴丛刺治疗结合丰富环境干预可以显著降低HIBD大鼠海马CA1区细胞凋亡程度,同时提高BDNF/TrkB通路相关蛋白的表达水平。这一结果可能的原因在于:头穴丛刺刺激可促进大鼠脑部血液循环,改善缺血缺氧状态;而丰富环境干预可促进大鼠神经功能恢复,提高神经元活性。二者结合,可进一步促进神经元修复及再生,改善HIBD症状。
藁本内酯抑制缺氧缺血性脑损伤新生大鼠脑组织凋亡相关蛋白的表达

藁本内酯抑制缺氧缺血性脑损伤新生大鼠脑组织凋亡相关蛋白的表达
郭晓杰;吴丽;尹焕培
【期刊名称】《儿科药学杂志》
【年(卷),期】2024(30)3
【摘 要】目的:通过检测体内外缺氧缺血条件下NOD样受体蛋白3(NLRP3)、天冬氨酸蛋白水解酶1(Caspase1)、白细胞介素-1β(IL-1β)、GSDMD-N蛋白水平评价藁本内酯(LGSL)对缺氧缺血性脑损伤(HIBD)新生大鼠的神经保护作用。方法:选取7日龄SD雄性大鼠随机分为假手术组(Sham组)、HIBD组和LGSL组各10只,采用左颈总动脉双重结扎构建HIBD模型,体外建立小胶质细胞氧糖剥夺(OGD)模型(OGD/R)。采用CCK-8评估不同浓度LGSL干预24 h对OGD/R小胶质细胞活力的影响;通过免疫印迹评估20μM LGSL对体内外缺氧缺血条件下NLRP3、Caspase1、IL-1β、GSDMD-N表达的影响。结果:在体内外模型中,NLRP3、IL-1β、Caspase1及GSDMD-N表达均上调(P<0.05);20μM LGSL干预24 h后,NLRP3、IL-1β、Caspase1及GSDMD-N表达均下调(P<0.05)。结论:LGSL可以显著抑制新生大鼠体内外因缺氧缺血引起的神经炎症反应。
【总页数】5页(P1-5)
【作 者】郭晓杰;吴丽;尹焕培
【作者单位】河南省第二人民医院;郑州市中心医院
【正文语种】中 文 【中图分类】R722.1
【相关文献】
1.银杏内酯B对缺氧缺血性脑损伤新生大鼠脑组织Caspase-3及VEGF mRNA表达的影响2.缺氧缺血性脑损伤新生大鼠脑组织神经细胞凋亡情况及Tau、p-Tau蛋白表达变化3.缺氧缺血性脑损伤大鼠脑组织海马区 p-tau 蛋白与凋亡相关蛋白
Bcl-2、Bax 的关系4.针康法对缺氧缺血性脑损伤新生大鼠神经功能及细胞凋亡相关蛋白表达的影响5.缺氧缺血性脑损伤新生大鼠海马区脑红蛋白、凋亡相关蛋白Bcl-2、Bax的表达及其相关性
BDNF对缺氧缺血性脑损伤作用机制的研究进展

龙源期刊网
BDNF对缺氧缺血性脑损伤作用机制的研究进展
作者:张中伟
来源:《科学与财富》2016年第04期
新生儿缺氧缺血性脑损伤( Hypoxic-ischemic brain damage,HIBD)会严重危害到新生儿的生命并出现一些常见的中枢神经障碍综合征,此类疾病的至今依然是围产医学的难题之一。目前普遍认为缺氧缺血性脑损伤跟能量代谢障碍、细胞内钙离子浓度升高及细胞凋亡等方面关系密切,但机制还尚不明确。近年来,脑源性神经营养因子在缺氧缺血性脑损伤中发挥的作用引起了(brain-derived neurotrophic factor,BDNF)广泛的关注,本文就此的研究进展作一综述。
1.BDNF的生物特性
BDNF是一类小分子多肽物,在1982年被发现,最初认为是一个小二聚类蛋白质[1],和神经生长因子(NGF)、神经营养因子3 ( NT-3)是神经营养家族中最重要的三个[2],可以在神经系统受损的情况下为神经细胞提供保护和促进恢复[3]。其中BDNF有两种类型: pro-BDNF 和成熟BDNF [4]。Pro-BDNF包含前结构域内247个氨基酸的N-糖基化和糖基化残基,而大部分的pro-BDNF在合成囊泡中经调节并经历N-末端裂解细胞外蛋白酶[5],在反式高尔基网络(TGN)中,pro-region裂解产生成熟BDNF,少量pro-BDNF的蛋白质可以与成熟BDNF产生免疫抗体。
这两种类型BDNF的作用不同。成熟BDNF可以在新生儿发育中的大脑缺氧缺血性损伤起到关键保护作用[6]。通过在培养海马神经元过程中发现神经元活动的高或低频率都会增高BDNF的水平,而只有高频率活动才能诱导刺激组织纤溶酶原激活分泌,使pro-BDNF转化为成熟BDNF[7]。此外,pro-BDNF最高水平是在围产期中观察到的,然后随着年龄增高而下降,成年后依然可以检测到。这些都说明了新生儿大脑易患缺氧缺血性脑损伤是由于低频神经元活动的原因和在中枢神经系统缺乏适量的成熟BDNF导致。
电针督脉对缺血性脑损伤大鼠神经细胞凋亡的影响
第2l卷第6期 2002年l2月 安徽中医学院学报 JOURNAL OF ANHUI TCM COLI EGE Vo1 2l No 6 Dcc 2002
・针灸经络・
电针督脉对缺血性脑损伤大鼠神经细胞凋亡的影响
骆仲达
指导:赖新生教授 ,许能贵博士
(广东省深圳市福田中医院康复中心,广东深圳 518034)
摘要:目的:揭示电针治疗在缺血性脑血管疾病中的分子机制。方法:采用原位标记法,研究电 针督脉的大椎、百会经穴对缺血性脑损伤的保护作用。凝闭大鼠大脑中动脉致局灶性脑缺血10 h 后,选择末端脱氧核苷酸转移酶介导dUTP缺口末端标记法(TUNEI )检测神经细胞的凋亡状况, 并观察电针对其影响。结果:电针组大脑皮质梗死区内TUNEL染色阳性细胞显著减少,与模型组 比较,差异有显著性意义(P<0,01)。结论:电针可抑制脑缺血后脑内神经细胞凋亡。
关键词:脑卒中;脑缺血;电针疗法;细胞凋亡;基因表达
中图分类号:R245.329;R743,33文献标识码:A文章编号:1000—2219(2002)06—0027—03
众多的研究已经证实,在脑内缺血、低氧时,除
神经元的坏死外,还存在某些易损区内神经元选择
性细胞凋亡,或称程序性细胞死亡(programned cell death,PCD),即在某些诱导因素作用下,通过膜和 细胞内信号传导,启动有关调控细胞死亡的基因,最 终使细胞按一定程序的控制而自我破坏和死亡u J。
坏死是细胞在多种因素的刺激下被动的细胞死亡过
程,而凋亡是由基因控制主动的细胞自杀过程。因 此,在防治缺血性脑损伤时,无论是阻止细胞死亡,
还是抑制细胞凋亡,均具有重要的意义。本研究采
用热凝闭大脑中动脉致局灶性脑缺血为模型,观察
电针对大鼠脑缺血后脑内神经细胞凋亡的影响。
1材料
1.1 实验动物选用健康的Wistar大鼠,24只,体 质量200~250 g,由广州中医药大学实验动物中心
急性脑损伤后神经细胞凋亡机制的研究进展
・156・ 实用临 医药鸯志 2013年第17卷第7期 Journal of Clinical Medicine in Practice … …’………
急性脑损伤后神经细胞凋亡机制的研究进展
李 明,殷玉华,江基尧
(上海交通大学医学院附属仁济医院神经外科,上海,200127)
关键词:急性脑损伤;神经细胞;细胞凋亡;凋亡机制
中图分类号:R 742文献标志码:A文章编号:1672—2353(2013)07—156—04 DOI:10.7619/jcmp.201307059
1972年,Kerr等根据细胞的超微结构特征
把细胞死亡分为坏死和凋亡2种方式。1973年,
Schweichel等在此基础上又将溶酶体的作用纳入
其中,把细胞死亡分为3种类型。然而早期对神
经细胞凋亡的研究l_1I2 J大多集中在神经元正常
发育过程中,或者是神经细胞的慢性变性的病变
中,而对颅脑急性损伤中细胞凋亡的研究较少。
Tominaga等(1993年)和MacManus等(1994年)
相继证实缺血性脑损伤后存在神经细胞凋亡,而
1995年Rink等_3J贝0首先证明了颅脑创伤后存在
神经细胞的凋亡。神经细胞凋亡(apoptosis)或细
胞的程序化死亡(PCD),是指在某些生理或病理
性因素诱导下,激活膜信号系统,启动有关调控细
胞凋亡的程序基因,最终导致细胞按一定程序控
制自我破坏和死亡,其过程具有一定的可逆性。
大量实验[ J表明,神经细胞的凋亡与脑损伤后
细胞存活数量有直接的关系,并对脑损伤的预后
产生重要影响,因此更进一步认识神经细胞的凋
亡极具重要性。 神经细胞的凋亡主要取决于2个方面的作
用:凋亡诱导因素的激发和抗凋亡因素的抑制。
脑组织损伤后,神经细胞内会出现凋亡和抗凋亡
信号的激活。脑损伤后神经细胞凋亡是受内外因
素诱导而发生的基因调控下的死亡方式。本文就
神经细胞损伤后的凋亡机制进行综述。
1凋亡相关蛋白和细胞因子
Caspase-3在缺血性脑损伤中的作用
Caspase-3在缺血性脑损伤中的作用
摘要】脑血管疾病是当今人类三大死亡原因之一,目前仍然缺乏有效的治疗手段,因此需要进一步探讨发病过程中的分子机制,为预防及治疗提供新的理论依据。近来许多研究发现由半胱氨酸蛋白酶家族介导的细胞凋亡在缺血性脑损伤中起到了重要的作用,而半胱氨酸蛋白酶-3(caspase-3)被认为是细胞凋亡执行阶段的关键蛋白酶,且通过干预caspase-3 表达可减轻脑缺血的损伤程度[1]。
【关键词】缺血性脑损伤 凋亡 半胱氨酸蛋白酶-3
前言:缺血性脑损伤是缺血性脑血管疾病中必经的病理过程,在此过程中细胞凋亡占有重要的比重。在机体凋亡与抗凋亡过程,Caspase-3属于关键步骤;故在此对细胞凋亡、Caspase-3在缺血性脑损伤中的作用做简要综述。
1、细胞凋亡
凋亡是一个基因调控的程序性细胞死亡过程,形态学特征是细胞核和细胞质发生浓缩,染色质发生断裂,不伴有炎症反应。在这个过程中大量的基因被激活,蛋白质表达增加。其在体内稳态平衡、神经发育、机体防疫、老化及许多疾病的发生过程中发挥重要作用,如帕金森病、老年性痴呆等神经退行性疾病与神经细胞过度凋亡有关。依据细胞凋亡机制可将凋亡分为caspase依赖的、非caspase依赖的凋亡,其中以前者为主。caspase依赖的途径主要有线粒体/细胞色素C通路、死亡受体通路和内质网通路[2]。1)线粒体/细胞色素C通路:由理化因素导致的DNA损伤、生长因子缺乏、氧化应激、毒物药物等刺激信号激活。细胞色素C作为一种促凋亡因子从线粒体膜释放入胞浆后,与胞浆中的凋亡激活因子-1(Apaf-1)的C末端及ATP结合,促使caspase-9蛋白酶家族呈“瀑布式”层层激活(caspase-9→caspase-3、6、7),引起细胞形态学上的改变使细胞最终发生凋亡[3];2)死亡受体(Fas-associated death domain,FADD)通路:由配体如TNF、Fas或TRAIL同其受体结合引起,配体受体结合后激活caspase-8,进一步激活caspase-3、caspase-6、capase-7;3)内质网通路:主要由Ca2+介导,胞内钙超载,影响内质网对钙的摄取和释放,造成内质网的应激,内质网应激诱导caspase-12表达,激活的caspase-12可进一步激活caspase-3而引发细胞凋亡。当然上述三条通路不是孤立作用的,而是相互交错的,如caspase-8除了直接激活caspase-3外,还可以通过内质网通路间接激活caspase-3放大凋亡信号。其中作为凋亡效应者(effeetors)的caspase-3是上述三条通路级联激活的必经之路,是caspase级联“瀑布”下游最关键的凋亡执行蛋白酶,在各种因素启动的凋亡程序中起最后枢纽作用,被称为“死亡蛋白酶”,可直接水解与细胞解体相关的结构和功能蛋白,如聚ADP2核糖聚合酶(PARP)、DNA依赖性蛋白激酶(DNA-PK)等,导致DNA片段化,促使细胞降解并生成凋亡小体,亦可进一步激活caspase-6、7而发挥作用。非caspase依赖的凋亡为凋亡诱导因子(apoptosis inducing factor,AIF)介导的凋亡途径。AIF是定位于线粒体膜间隙中的一种氧化还原酶,当凋亡信号刺激时,线粒体通透性转变孔开放,释放AIF入胞浆中。具有核定位信号序列的AIF便进入细胞核内,引起染色质的初步凝集和DNA大规模片断化(约50kD),引发不依赖caspase的细胞凋亡途径[4]。
新生儿缺氧缺血性脑损伤应注重基础防治
一鼢园目国囤 新生儿缺氧缺血性脑损伤应注重基础防治 邢守忠杨存玲 (朔州市人民医院,山西朔州036000) 新生儿缺氧缺血性脑损伤是指围生期窒息导致脑的缺氧 缺血性损害,患儿常在出生后1周,尤其前3 d内出现的一系 列脑功能障碍表现。如烦躁不安或嗜睡、吐奶、尖叫、抽搐等症 状。轻症者预后良好,病情危重者,病死率高,幸存者可遗留后 遗症,如智力低下、癫痫和脑性瘫痪。围生期缺氧缺血主要发生 在宫内,约8O% 90%发生在产前或产时,10%发生在产后。缺 氧缺血性脑损伤多见于胎儿宫内缺氧,胎盘功能异常,脐带脱 垂受压及脐绕颈,异常分娩如急产、滞产胎位异常,胎儿发育异 常如早产、过期产及宫内发育迟缓,新生儿严重肺部感染也可 致缺氧脑损伤。缺氧缺血性脑损伤是威胁新生儿生命及导致神 经系统后遗症的严重疾病,目前临床采用的防治措施疗效并不 理想,应深入了解缺氧缺血性脑损伤发病机制和病理改变,并 寻求更有效的防治措施,受到了医学界的广泛关注,基础防治 更加重要。 1提早预防,及时救治 1.1提早预防新生儿缺氧缺血性脑损伤,是因围生期 缺氧所造成的脑损害,预防本病的发生应从以下几点着手:① 孕妇定期到医院进行产前检查;②发现胎动有异常如过快或过 慢,立即到医院诊治;③妊娠期问避免做过重体力劳动,保持愉 快情绪,避免早产;④应到医院分娩及时发现本病。 1.2及时救治一旦发生新生儿窒息,应严格按新生儿 复苏标准,在生后30 S内建立畅通的气道,给予高浓度氧气建 立有效呼吸,必要时及时进行胸外按压及药物治疗,尽快纠正 缺氧、酸中毒,改善组织血液供应。复苏后应随时监测生命体 征,维持正常的血气、生化、水及电解质平衡,维持正常的血压 及控制脑水肿等。 2头颅部低温,躯体加温 头颅部低温,在新生动物缺氧缺血模型的研究显示,再氧 合/再灌注期间脑部温度降低2 ̄6℃,并持续3 h 72 h能减轻 脑损伤25%一81%,相反,暴露于常温下可加剧脑损伤。头颅部 低温的保护原理可能是降低氧及能量消耗,减少细胞外兴奋性 氨基酸,减少一氧化氮合成等。虽然对低温是真正阻止细胞死 亡,还是推迟细胞死亡有争议,但在低温状态下确实中枢神经 细胞的死亡时间延长或数目的减少,将有利于对神经组织的挽 救。可是,低体温对新生儿有严重的不利影响,基础代谢的降 低,环境寒冷易造成新生儿硬肿症的发生和生长发育的迟缓。 1O年前Ahstair等[ 睬用含1O℃循环液体的特制冷帽对新生儿 做头颅降温,同时用辐射加温躯体或恒温箱加温躯体使体温维 持在35.5—36.5 oC,与常规治疗组比较,未见低温不良反应,并 初步显示一定疗效。以此说明头颅低温加躯干加温是简便、经 济、安全可行的方法。 3维持正常血糖 缺氧缺血前后脑内葡萄糖浓度是影响窒息后损伤的因素 之一。高血糖对成年和新生动物的作用并不相同,从形态学观 察,成年大鼠缺血性损伤前给予葡萄糖可加重脑损伤,而在新 生大鼠则有神经保护作用,但缺氧缺血后使用则不能减少脑梗 死面积,且反而加重神经元损伤四,但在新生狗实验中,即使缺 血前使用葡萄糖也加重脑损伤。但据遗传学研究表明,人与大 鼠的染色体相同或相近程度远远大于人与狗的比例,所以大鼠 的研究结果更近似于人类。血糖在脑损伤中的作用与本身在缺 氧缺血条件下存在利弊两面性,即葡萄糖供给不足,脑组织代 谢底物少,缺乏供能物质,致使三磷酸腺苷产生减少,细胞内外 离子主动转运能力降低,出现相应的中枢神经细胞损害,但乳 酸堆积相应减少。如葡萄糖供给增多,脑组织代谢底物增多,三 磷酸腺苷产生增加,细胞内外离子主动转运能力提高,使正常 或凋亡的中枢神经细胞损害减少,有益于凋亡细胞的恢复,但 乳酸堆积相应增加,从而产生不利的因素。鉴于高血糖和低血 糖都存在着不利作用,所以目前多主张新生儿血糖应维持在正 常或其高值为宜,即空腹血糖在5.0 6.5 mmol/L之间。 1,6一二磷酸果糖是糖酵解过程中的高能产物和调节剂, 有利于调节细胞膜离子通透性及代谢率,提高对环境应激的抵 抗能力,动物模型使用1,6一二磷酸果糖可明显减轻脑损伤凹。 1,6一二磷酸果糖的神经保护作用可能是:通过增加糖酵解减 缓三磷酸腺苷的耗竭,激活磷酸戊糖旁路增加三磷酸腺苷的生 成,防止活性氧族产生,以及维持细胞内钙和钠在正常范围等。 但是磷酸戊糖旁路所产生的三磷酸腺苷远远小于三羧酸循环 产生的三磷酸腺苷的量,此仅能作为暂时的权益之计 。 4镇静止痉,减少氧及能量消耗 及时控制惊厥能减少氧和能量的消耗,具有神经保护作 用。此外,巴比妥类药物还可通过抑制神经细胞对谷氨酸的 反应性而削弱兴奋性毒性,还可以诱导肝酶的产生促进体内 有害物质的代谢转换。Hall等f5_对严重窒息足月新生儿的一 项临床研究中,在生后l h ̄6 h给予研究组大剂量苯巴比妥 (40 mg/kg),而对照组仅在发生抽搐后给予苯巴比妥20 mg/kg, 3年后随访表明研究组神经发育正常的比例明显高于对照组。 大剂量苯巴比妥治疗期问未见心率 呼吸、血压以及血气方面 的不良反应,提示临床应用是安全的。但该剂量应用是否适用 于中国黄种人群还需进一步探讨。 基层医学论坛2008年第1