
第14章 圆环病毒科 (Circoviridae)
子量为30kDa的蛋白质。病毒DNA利用宿主细胞的酶自动复制。 PCV于PK15细胞中能长期持续感染的原因,主要是不形成CPE。 Gills证明,传了9年的PK15细胞在其142和134代培养物中仍存在PCV抗 原,其污染来源还不清楚,但试验证明,培养用的血清和其它药品并未 被PCV污染,而原代猪细胞往往带毒。这揭示PCV对PK15细胞的污染, 可能源于原始猪细胞。 Tischer对集中在伯林和德国北部两个地区的屠宰猪群进行血清学调查 发现,这些猪的PCV抗体阳性率为77%~95%。试验感染猪3~6个月后血 清阳性率与上述结果相似。这说明PCV在猪只集中育肥期间呈水平传 播。人工感染试验发现,感染猪分泌的鼻汁和粪便是重要的传染源 。
第十四章
1、 鸡贫血病毒 2、 猪圆环病毒 三、鹦鹉喙羽病病毒 主要参考文献
圆环病毒科 (Circoviridae)
ICTV发表的第六次病毒分类报告中,将包括鸡贫血病毒(CAV)、猪 圆环病毒(PCV)和鹦鹉喙羽病病毒(PBFDV)在内的3个病毒设立了1个新 科,即圆环病毒科,下设1个圆环病毒属。该科病毒是所有已知动物病 毒中最小的,病毒粒子直径14~25nm,为20面体对称结构,无囊膜,含 有单链负股环状DNA。
3、 鹦鹉喙羽病病毒
(irus)
70年代中期,南太平洋地区的鹦鹉发生了1种称为鹦鹉喙羽病的疾 病。本病以羽毛对称性发育不良及脱落为特征,此外还可见喙异常,腭 骨坏死,横向或纵向骨折或分层等。 经自然发病和实验感染证实,此病的病原为病毒,于羽毛和羽毛囊 上皮细胞中发现核内和胞浆内嗜碱性包涵体,羽毛超薄切片中见有晶格 状排列的病毒粒子。病毒粒子直径14~17nm,核酸为单链负股环状 DNA,长17~20kb,含有3种蛋白质,分子量分别为263~237kDa 和159kDa。CsCl浮密度为137g/cm 3。鹦鹉喙羽病病毒(PBFDV)具 有血凝性,能凝集粉红凤头鹦鹉(Eolophus roseicapillus)、东部长嘴 凤头鹦鹉(Cacatua tenuirostris)、葵花凤头鹦鹉(Cacatua galerita)、米切氏凤头鹦鹉(Cacatua leadbeateri)、甘甘凤头鹦鹉 (Callocephalon fimbriatum)、戈芬氏鹦鹉(Cacatua goffini)以及豚 鼠和某些品种鹅的红细胞。 PBFDV组织特异性强,营养要求高,体外培养至今未获成功。 PBFDV感染宿主范围广泛,现有资料表明,该病毒至少可感染35种 以上的鹦鹉鸟类。赛鸽亦可感染此病。血凝和核酸探针杂交试验证明, 来源于不同宿主的PBFDV抗原性相似。 患病动物临床主要表现为羽毛进行性营养不良、脱落,有时伴有喙 变形。PBFDV主要侵害羽毛和羽毛囊上皮细胞,并形成核内和胞浆内包 涵体,使细胞变性坏死脱落。严重污染环境,是易感禽的主要传染来 源。另外,PBFDV还可侵害胸腺和法氏囊,使之坏死萎缩,造成免疫抑
2、 猪圆环病毒(Porcine circovirus)
猪圆环病毒(PCV)首先由Tischer于1974年从PK15猪肾传代细胞系 中分离获得。该 病毒可长期持续感染PK15细胞,不表现CPE。目前尚未证明PCV能引起 猪和其它试验动物发病。血清学调查发现,欧洲和加拿大等国的家养和 野生猪群中PCV抗体阳性率最高可达95%。免疫荧光和免疫酶组化法也证 明,PCV抗原广泛存在于不同代次的PK15传代、猪源原代、继代细胞 以及1日到19日龄的猪体内。然而,PCV在细胞培养物和猪体内广泛存在 的生物学作用至今尚未搞清楚。 PCV没有固定的表面结构,直径17nm,CsCl浮密度137g/cm 3。 DNA基因组长17kb。分子量58×10 2kDa。目前只发现PCV有1个分
图14-2 CAV核酸复制、转录和翻译示意图→、□分别代表起始和终止密 码子 VP1为核衣壳蛋白,就是CsCl密度梯度离心纯化后病毒中可检出的1 个分子量为50kDa的主要多肽。VP1 N端富含精氨酸,与基因组DNA紧密 结合,对DNA有保护功能。 以VP1和VP2两种蛋白质制备的单克隆抗体证明,CAV感染的胸腺和 骨髓细胞以及MDCC ~MSB1(鸡马立克氏病脾脏T淋巴细胞系)细胞中均可表达VP2和VP3,进 一步证实CAV除可表达病毒衣壳蛋白VP1外,也可表达VP2和VP3,VP2与 病毒的装配有关, VP3为1种称作凋亡素(apoptin)的蛋白质,可诱导 CAV感染细胞的凋亡。 2.理化学特性 CAV在CsCl中的浮密度为133~134g/cm 3。CAV抗氯仿、乙 醚。耐酸,pH30作用3小时仍稳定。耐热,对70℃60分钟和80℃15分 钟作用有抵抗力,但80℃30分钟则部分失活,100℃15分钟完全灭活。 对酚敏感,5%酚处理5分钟及次氯酸盐处理可使病毒失去感染性。5%的 四价铵化合物、两性皂及邻二氯苯等处理2小时,其感染力不受影响。 10%十二烷基硫酸钠37℃处理1小时反略增强CAV的感染力。 4.抗原性 多克隆抗体交叉免疫荧光试验证明,各个CAV分离毒株的抗原性密 切相关,用McAb免 疫荧光染色法可区分各毒株间的抗原差异。CAV 与PCV和PBFDV没有共同 的抗原决定簇。现有资料表明,目前所分离到的CAV毒株,如日本的11 个毒株、德国的CUX1株、英国的2个毒株、美国的1个毒株和瑞典的1 个毒株等,均为1个血清型。Koch等研究了CAV蛋白质的免疫原性和保护 性作用,将编码VP1、VP2和VP3的基因逐一插入杆状病毒载体,在昆虫 细胞中表达,将表达产物分别接种鸡,发现不能诱导中和抗体,但用 VP1和VP2重组杆状病毒同时感染昆虫细胞所产生的蛋白质接种鸡,可诱 导CAV中和抗体,若用VP1、VP2和VP3重组杆状病毒分别感染细胞,其细 胞裂解物混合后接种鸡,也不能诱导高水平的CAV中和抗体。中和性单 克隆抗体不能与感染VP1或VP2重组病毒的昆虫细胞结合,却可与同时产 生VP1和VP2的细胞结合。这说明中和性位点需CAV重组蛋白VP1和VP2同 时合成,而不是简单的混合。一般讲,病毒蛋白免疫原性多聚体较单体 强,但不能排除病毒粒子中少量VP2与VP1结合构成中和位点的可能性。 用CAV VP1、VP2和VP3或VP1、VP2重组杆状病毒共同感染鸡,可从其所 产蛋的卵黄中检出CAV中和抗体,CAV攻毒免疫鸡的子代一般不表现特征
败。众所周知,胸腺的皮质区细胞在胸腺激素诱导下分化为T淋巴细 胞,即胸腺皮质细胞是T细胞的前体细胞,T细胞是在胸腺的皮质区发生 和成熟的。Yuasa在研究CAV感染鸡的免疫抑制机理时发现,1日龄雏鸡 感染CAV后2周,胸腺衰竭达到高峰,用CAV VP3特异性McAb检查胸腺切 片,仅在皮质区发现阳性细胞,超过2周龄的鸡虽然对CAV也易感,但不 发病。研究发现,这是由于此阶段胸腺皮质细胞对CAV易感性低的缘 故。 Jeurissen报道,此阶段未检查到CAV感染细胞,亦未见胸腺衰竭。 由此可见,2周龄以下雏鸡T细胞的前体细胞对CAV极为敏感,而T细胞不 仅是机体细胞免疫的执行者,对体液免疫也有辅助作用(T H),所以 CAV由于破坏胸腺皮质细胞而造成免疫抑制。Jeurissen等研究了CAV破 坏胸腺皮质细胞的机理,他发现接种CAV的SPF鸡胸腺病变严重,而对照 鸡胸腺则没有病变。组织学检查发现,胸腺皮质细胞染色质在邻近核膜 区凝聚,细胞浆中散布有或多或少的球形电子致密小体,胸腺细胞严重 衰竭。该氏认为这种现象是进行性细胞死亡或称凋亡(apoptosis)过程 的特性,CAV引起鸡胸腺细胞凋亡并不令人惊奇。Vasconcelos发现鸡传 染性法氏囊病病毒诱发的免疫抑制,至少部分是由鸡胸腺细胞凋亡所 致。获得性免疫缺陷症所导致的免疫抑制也与病毒诱发的细胞凋亡有 关。Noterborn发现,培养的鸡单核细胞在感染CAV的早期,CAV编码蛋 白凋亡素随细胞染色质聚集,感染后期,凋亡素形成聚合物,细胞凋 亡,细胞DNA断裂。用免疫金电镜研究表明,凋亡素存在于CAV感染的凋 亡细胞中。体外培养的鸡淋巴母细胞样T细胞和髓样细胞中,CAV凋亡素 的表达诱发了这些细胞的凋亡,这些资料表明凋亡素本身启动了CAV感 染细胞凋亡的途径。
1、 鸡贫血病毒(Chicken anemia virus)
同义名: 鸡传染性贫血因子,鸡传染性贫血病毒 自1979年日本学者Yuasa等首先报道本病并分离到病原以来,英 国、瑞典、德国、加拿大、美国等国家和地区都先后证实了本病的存 在,澳大利亚及其它一些欧洲、非洲和亚洲国家通过血清学普查,也发 现鸡广泛感染CAV。我国亦分离到了该病原。CAV主要危害2~3周龄以内 的雏鸡,以损害造血器官和淋巴器官,引起感染鸡发生再生障碍性贫血 和免疫抑制为特征,对养禽业危害严重。 1.形态结构 CAV无囊膜,平均直径23~25nm,电镜下呈球形或六面体形(见图 14-1)。病毒核衣壳 由32个结构亚单位组成,分子量约50kDa,基因组长2 139个核苷酸,包 括3个部分或完全重叠的开放阅读框架(ORF)。序列比较发现,CUX1毒 株、两个美国毒株、1个日本毒株和1个澳大利亚毒株间的同源性极高。 Todd采用Southern blot 分析证明,CAV与PCV和PBFDV DNA没有同源 性。病毒复制、转录和翻译的过程为:于感染细胞中,单链DNA先以滚 环方式复制成双链复制中间体,再以其中1条链为模板转录成1条非剪接 多顺反子mRNA,其上含有3个部分重叠的基因,每个基因都有各自的起 始和终止密码子,翻译3种蛋白质,分别称为VP1(500kDa)、 VP2(240kDa)和VP3(136kDa),见图14-2。Todd等用抗每个ORF所编 码蛋白质的N端和C端多肽的单克隆抗体证明,所有3个ORF在感染细胞中 均可表达。 图14-1 磷钨酸负染的CAV(横杠=100nm)--自李成
性临床症状。 5.病原性 本病毒仅感染鸡,各种品种的鸡易感性相同。所有年龄的鸡对CAV 都能感染,出生后数日的雏鸡易感性最高。免疫鸡对CAV有抵抗力。CAV 呈水平和经卵垂直感染,亦有经精子传播的报道。易感鸡与带毒鸡、被 污染的房屋、工具和人员接触可导致感染。一般认为,CAV的主要感染 途径是消化道,其次是呼吸道。垂直感染可能是导致雏鸡出生后不久呈 现典型发病,即贫血和造血器官萎缩的主要原因。通过垂直感染暴发该 病的报道很多。多数鸡群在母源抗体消失后到产蛋前的生长期感染 CAV,并产生抗体,其子代可获得母源抗体保护。而有些鸡在产卵初期 感染病毒,短时间内不能产生大量抗体,其后代难以得到母源抗体保 护,故被CAV感染后可引起疾病暴发。 自然条件下,该病的潜伏期不易弄清,但最早12天可表现临床症 状,第3~4周死亡增 加。人工感染8天后,可出现贫血和组织病变,第10~14天开始发病, 病鸡继而死亡。 贫血是该病的特征性变化,病鸡感染后14~16天贫血最严重,血细 胞压积为6%~27 %。病鸡表现精神沉郁,衰弱,消瘦,体重减轻,喙、肉髯和可视粘膜 苍白。血液稀薄,血凝时间延长,红、白细胞数显著减少,可分别下降 到10 9个/L和5×10 6个/L以下。发病后5~6天病鸡大量死亡,呈急 性经过,死亡率通常不超过30%,20~28天后存活的鸡逐渐恢复健康, 但若继发细菌、真菌或病毒感染,可加重病情,阻碍康复,死亡增多。 本病最特征的剖检病变是骨髓萎缩,常见股骨骨髓呈脂肪色、淡黄 色或淡红色。胸腺明显萎缩,重量降低,呈深红褐色,严重时可导致完 全退化。随着病鸡年龄的增加,胸腺萎缩比骨髓的病变更容易观察到。 法氏囊萎缩不明显,有时重量降低,体积变小,而大多数病鸡法氏囊的 外壁呈现半透明状态,能观察到内部的皱襞。病情严重者,可见肝、肾 变黄,肿大,质脆。胃肠道和肌肉有点状出血。 CAV引起的贫血是1种再生障碍性贫血。Goryo等发现,感染CAV后6~ 8天鸡骨髓的造血干细胞肿大,核内有嗜酸性包涵体,第12天骨髓内有 分裂能力的造血干细胞减少或完全消失,第16天该细胞出现再生,恢复 造血。Hoop等用McAb免疫酶组化法检测表明,CAV最初侵害造血干细 胞,使之破坏。CAV疾病的另1个特点是引起免疫抑制。大量资料表明, CAV病鸡对细菌和真菌易感性增加,腺病毒、呼肠孤病毒等混合感染的 致病性明显增高。CAV感染还可影响某些疫苗的免疫效果,造成鸡马立 克氏病、传染性法氏囊病、新城疫、传染性喉气管炎等疫苗的免疫失
圆环病毒基本特征、基因组结构及其表达产物
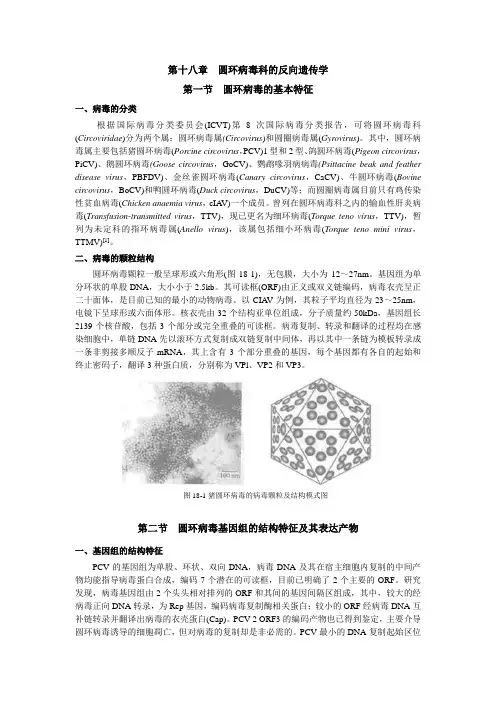
第十八章圆环病毒科的反向遗传学第一节圆环病毒的基本特征一、病毒的分类根据国际病毒分类委员会(ICVT)第8次国际病毒分类报告,可将圆环病毒科(Circoviridae)分为两个属:圆环病毒属(Circovirus)和圆圈病毒属(Gyrovirus)。
其中,圆环病毒属主要包括猪圆环病毒(Porcine circovirus,PCV)1型和2型、鸽圆环病毒(Pigeon circovirus,PiCV)、鹅圆环病毒(Goose circovirus,GoCV)、鹦鹉喙羽病病毒(Psittacine beak and feather disease virus,PBFDV)、金丝雀圆环病毒(Canary circovirus,CaCV)、牛圆环病毒(Bovine circovirus,BoCV)和鸭圆环病毒(Duck circovirus,DuCV)等;而圆圈病毒属目前只有鸡传染性贫血病毒(Chicken anaemia virus,cIA V)一个成员。
曾列在圆环病毒科之内的输血性肝炎病毒(Transfusion-transmitted virus,TTV),现已更名为细环病毒(Torque teno virus,TTV),暂列为未定科的指环病毒属(Anello virus),该属包括细小环病毒(Torque teno mini virus,TTMV)[1]。
二、病毒的颗粒结构圆环病毒颗粒一般呈球形或六角形(图18-1),无包膜,大小为12~27nm。
基因组为单分环状的单股DNA,大小小于2.5kb。
其可读框(ORF)由正义或双义链编码,病毒衣壳呈正二十面体,是目前已知的最小的动物病毒。
以CIA V为例,其粒子平均直径为23~25nm,电镜下呈球形或六面体形。
核衣壳由32个结构亚单位组成,分子质量约50kDa,基因组长2139个核苷酸,包括3个部分或完全重叠的可读框。
病毒复制、转录和翻译的过程均在感染细胞中,单链DNA先以滚环方式复制成双链复制中间体,再以其中一条链为模板转录成一条非剪接多顺反子mRNA,其上含有3个部分重叠的基因,每个基因都有各自的起始和终止密码子,翻译3种蛋白质,分别称为VPl、VP2和VP3。
4Z14猪圆环病毒感染

肿大的出血性棕褐色淋巴结
肝脏萎缩
白斑肾
猪慢性间质性肾炎,肾脏显著肿胀,切面局灶性苍白。 右侧为对照
再见!
哺乳仔猪头颈肿胀,眼脸水肿
保育猪消瘦、结膜炎、眼睑水肿、头颈部水肿
PMWS病猪: 衰弱、黄疸(右为同窝正常猪)
中央2头患有PMWS的断奶猪表现衰弱,消瘦和精神沉郁
仔猪明显消瘦,发育不良
瘦弱,弓背,皮肤感染
仔猪弱小,皮肤感染
(左)皮肤苍白;
(右)瘦弱,比同窝猪小
生长猪PMWS和皮肤病变
猪圆环病毒感染
猪圆环病毒感染
(Porcine Circovirus infection)
本病是由猪圆环病毒(Porcine Circovirus, PCV) 引起猪的一种新的传染病。 主要感染8~13周龄猪,特征为体质下降、消瘦、 腹泻、呼吸困难。
1997年加拿大和新西兰学者认为断乳猪多系统衰 弱综合症(postweaning multisysematic wasting syndrom, PMWS) 与PCV有关。近年美、法、英、德、 意、西班牙、丹麦等国均开展的本病的研究。
3、临床症状
临床诊状表现为发热,精神不振,被毛粗乱皮 肤苍白。
进行性消瘦,贫血,发育障碍,而且表现咳嗽 、 喷嚏 、呼吸加快及呼吸困难为特征的呼吸器官障碍。 体表淋巴结帐肿大,部分病例可见皮肤,可视 粘膜黄疸,下痢及嗜睡 。 皮肤炎症的变化:全身体表皮肤出现弥漫性红 色小点,似过敏一样的小疹斑点。故也有称为PDNS。
5、诊断-2
(3) 分子生物学方法
由于PCV-1和PCV-2之间存在抗原交叉反应, 因此已建立的方法不能完全区分PCV-1和PCV-2, 需要制备特异性的单克隆抗体,或者特异性重组抗 原来满足建立特异血清方法的需要 。 根据PCV的DNA核酸顺列,设计特异性进行聚 合酶链式反应(PCR)可直接检测组织病料及其细 胞培养物中的病毒核酸,是一种快速、简便的方法 。
动物病毒的分类及常见病毒的分子结构
精品文档
(7) 在细胞培养中的生长特性: 包括对细胞种类的特异性,病毒蛋白
的聚集场所,病毒粒子的装配场所,病
(8) 抗原性:
(9) 生物学特性: 包括自然宿主范围,传播方式,传播
载体,地理分布,致病性及与疾病的关 系;组织嗜性,病理学和组织病理学。
精品文档
精品文档
(2) 理化学特性: 病毒粒子的分子量、浮密度、沉降系数
,对酸碱(pH)的稳定性,对热的稳定性,对 两价离子(Mg++和Mn++)的稳定性,对脂溶剂 (乙醚或氯仿)的稳定性,对去污剂的稳定性 ,对幅射的稳定性。 (3) 基因组:
核酸类型(DNA或RNA);基因组大小 (kb);是单股还是双股、线状还是环状;正 义、负义或双义;是整个的还是分节段的, 节段的大小和数目;核酸的序列或部分序列 ,是否具有重复序列,是否有同聚物,G+C 含量;5'端帽的存在与否和类型,5'端共价 结合蛋白存在与否,3'端多聚A尾的存在与 否。 精品文档
淋巴隐伏病毒属 人疱疹病毒4型
蛛猴病毒属
蛛猴疱疹病毒2型
精品文档
疱疹病毒科动物的常见病毒有:
马鼻肺炎病毒 牛传染性鼻气管炎病毒 牛溃疡性乳头炎病毒 恶性卡他热病毒 猪包涵体鼻炎病毒 犬疱疹病毒 猫鼻气管炎病毒 鸡马立克氏病病毒 鸡传染性喉气管炎病毒 鸭瘟病毒
精品文档
6、腺病毒科(Adenoviridae)
YATA痘病毒属 代表为Yaba猴肿瘤病毒
1.2昆虫痘病毒亚科( Entomopoxvirinae )
昆虫痘病毒A属 代表为鳃角金龟痘病毒;
昆虫痘病毒B属 代表为桑红缘灯蛾痘病毒;
单股DNA病毒

特征 单股环状DNA,无囊膜,20面体对称。目前已 知最小的病毒,PCV直径17nm, CAV直径22nm,
病毒在细胞核内增殖。
鸡贫血病毒(Chicken anemia virus,CAV)
仅有一个血清型。导致鸡传染性贫血,免疫抑制性疾病。
特征是贫血、淋巴器官尤其是胸腺萎缩、皮下和肌肉出血。
猪圆环病毒(Porcine circovirus,PCV )
细小病毒科parvovidae单股线状dna圆环病毒科circoviridae单股环状dna细小病毒科parvovidae一特征单股dna无囊膜20面体对称平均直径1826nm病毒在细胞核内增殖且与细胞活力有关
单股DNA病毒
细小病毒科 (Parvovidae)
单股线状DNA
圆环病毒科 (Circoviridae)
诊断 1.细胞培养:核内包涵体 2.血清学检查: HA-HI试验
(二)猪细小病毒( Porcine parvovirus,CPV)
病毒特性
有血凝性,抵抗力较强,一个血清型。可在猪肾细胞中生长, 产生明显的细胞病变,出现核内包涵体。
致病性
繁殖障碍病,以初产母猪为主。
诊断
1.细胞培养 2. 血清学试验
两个血清型:PCV-1和PCV-2,后者可导致 断奶猪多系统衰竭综合征。
红病毒属 B19病毒
2.浓核病毒亚科Βιβλιοθήκη 昆虫体内增殖。三、代表病毒
(一)犬细小病毒(Canine parvovirus,CPV)
病毒特性 有血凝性,抵抗力较强,存在普遍。分离病毒首选犬肾 原代细胞、CrFK、A72细胞。两个血清型:CPV-1和 CPV-2,前者无明显致病性,后者常见。
病毒学课件-单股DNA病毒

雞貧血病毒、豬圓環病毒、鸚鵡喙羽病病毒
特徵
單股環狀DNA,無囊膜,20面體對稱。目前已知 最小的病毒,PCV直徑17nm,CAV直徑22nm,病 毒在細胞核內增殖。
雞貧血病毒(Chicken anemia virus,CAV)
導致雞傳染性貧血,免疫抑制性疾病,僅有 一個血清型
豬圓環病毒(Porcine Circovirus,PCV)
二、分類
1. 細小病毒亞科
細小病毒屬 犬、豬細小病毒等 依賴病毒屬 腺聯病毒2型 紅病毒屬 B19病毒
2.濃核病毒亞科
昆蟲體內增殖。
三、代表病毒
(一)犬細小病毒(Canine parvovirus,CPV)
病毒特性
有血凝性,抵抗力較強,存在普遍。分離病毒首選犬腎原代細胞、 CrFK、A72細胞。兩個血清型:CPV-1和CPV-2,前者無明顯 致病性,後者常見。
致病性
以出血性腸炎為主,多發生於幼犬。康復犬可產生高滴度抗體, 幼犬可通過初乳和胎盤獲得母源抗體。
診斷
1.細胞培養:核內包涵體 2.血清學檢查: HA-HI試驗
(二)豬細小病毒( Porcine parvovirus,CPV)
病毒特性
有血凝性,抵抗力較強,一個血清型。可在豬腎細胞中生長, 產生明顯的細胞病變,出現核內包涵體。
單股DNA病毒
細小病毒科 (Parvovidae)
單股線狀DNA
圓環病毒科 (Circoviridae)
單股環狀DNA
細小病毒科 Parvovidae
一、特徵
單 股 DNA , 無 囊 膜 , 2 0 面 體 對 稱 , 平 均 直 徑 18-
26nm,病毒在細胞核內增殖,且與細胞活力有關。
【免费下载】病毒分类学目录

病毒分类学目录第二编脊椎动物病毒第3章脊椎动物DNA病毒一、痘病毒科(Poxviridae)脊椎动物痘病毒亚科(Chordopoxvirinae)二、非洲猪瘟病毒科(Asfarviridae)三、虹彩病毒科(iridoviridae)脊椎动物病毒成员四、疱疹病毒科(Herpesviridae)五、腺病毒科(Adenoviridae)六、乳头瘤状病毒科(Papovaviridae)七、多瘤病毒科(Polyomaviridae)八、细小病毒科(Parvoviridae)细小病毒亚科九、圆环病毒科(Circovirudae)十、指环病毒属(Anellovirus)第4章脊椎动物反转录病毒一、嗜肝DNA病毒科(Hepadnaviridae)二、反转录病毒科(Retroviridae)第5章脊椎动物双链RNA病毒一、呼肠孤病毒科(Reoviridae)二、双节段RNA病毒科(Birmaviridae)脊椎动物病毒成员第6章脊椎动物负链RNA病毒一、单分子负链RNA病毒目副黏病毒科(Paramyxoviridae)二、单分子负链RNA病毒目丝状病毒科(Filoviridae)三、单分子负链RNA病毒目弹状病毒科(Rhabdoviridae)四、单分子负链RNA病毒目博尔纳病毒科(Bornaviridae)五、正黏病毒科(Orthomyxoviridae)六、布尼亚病毒科(Bunyaviridae)七、沙粒病毒科(Arenaviridae)八、丁型肝炎病毒属(Deltavirus)第7章脊椎动物正链RNA病毒一、披膜病毒科(Togaviridae)二、黄病毒科(Flaviviridae)三、成套病毒目冠状病毒科(Coronaviridae)四、成套病毒目动脉炎病毒科(Arteriviridae)五、杯状病毒科(Caliciviridae)六、微RNA病毒科(Picomaviridae)七、星状病毒科(Astroviridae)八、野田村病毒科(Nodaviridae)乙型野田村病毒属(Betanodavirus)九、戍型肝炎病毒属(Hepatitis E virus)第三编昆虫和其他无脊椎动物病毒第8章昆虫DNA病毒一、杆状病毒科(Baculovilidae)二、多分体DNA病毒科(Polydnaviridae)三、痘病毒科昆虫痘病毒亚科(Entomopoxvirinae)四、泡囊病毒科(Ascoviridae)五、虹彩病毒科(Iridoviridae)昆虫虹彩病毒六、细小病毒科(Parvovirdea)浓核症病毒亚科(Densovirinae)第9章昆虫DNA和RNA反转录病毒一、变位病毒科(Metaviridae)昆虫病毒成员二、前病毒科半病毒属(Hemivirus)第10章昆虫RNA病毒一、呼肠孤病毒科(Reoviridae)昆虫病毒成员二、双节段RNA病毒科(Birnaviridae)昆虫病毒成员三、双顺反子病毒科(Dicistroviridae)四、野田村病毒科(Nodavridae)甲型野田村病毒属五、四体病毒科(Tetraviridae)六、传染性软腐病病毒属(Iflavirus)第11章甲壳动物和其他无脊椎动物病毒一、线头病毒科(Nimaviridae)二、杆状套病毒科(Roniviridae)三、其他甲壳动物病毒(Other Crustacea viruses)四、其他无脊椎动物病毒(Other Inwertebrate viruses)第四编植物病毒第12章植物DNA病毒和反转录病毒一、双生病毒科(Geminiviridae)二、矮缩病毒科(Nanoviridae)三、花椰菜花叶病毒科(Caulimoviridae)四、前病毒科(Psedoviridae)植物病毒成员五、变位病毒科(Metaviridae)植物病毒成员第13章植物双链RNA病毒一、呼肠孤病毒科(Reoviridae)植物病毒成员二、双组分RNA病毒科(Partitiviridae)植物病毒成员三、内源RNA病毒属(Endomavirus)第14章植物负链RNA病毒一、弹状病毒科(Rhabdoviridae)植物病毒成员二、布尼亚病毒科(Bunyaviridae)植物病毒成员三、蛇形病毒属(Ophiovirus)四、纤细病毒属(Tenuivirus)五、巨脉病毒属(Varicosavirus)第15章植物正链RNA病毒一、伴生病毒科(Sequiviridae)二、豇豆花叶病毒科(Comoviridae)三、马铃薯Y病毒科(Potyviridae)四、番茄丛矮病毒科(Tombusviridae)五、黄症病毒科(Luteoviridae)六、雀麦花叶病毒科(Bromoviridae)七、长线形病毒科(Closteroviridae)八、芜菁黄花叶病毒科(Tymowviridae)九、线形病毒科(Flexiviridae)十、烟草花叶病毒属(Tobamovirus)十一、烟草脆裂病毒属(Tobravirus)十二、大麦病毒属(H0rdeivirus)十三、真菌传杆状病毒属(Furovirus)十四、马铃薯帚顶病毒属(Pomovirus)十五、花生丛簇病毒属(Pecluvirus)十六、甜菜坏死黄脉病毒属(Benyvirus)十七、南方菜豆花叶病毒属(Sobemovirus)十八、欧尔密病毒属(Ourmlavirus)十九、悬钩子病毒属(Idaeovirus)二十、伞形病毒属(Umbravirus)二十一、温州蜜柑矮缩病毒属(Sadwavirus)二十二、樱桃锉叶病毒属(Cheravirus)第五编原核生掬、寅菌、原生动物和藻类病毒第16章单链DNA噬菌体一、丝杆状噬菌体科(Inoviridae)二、微小噬茵体科(Microviridae)第17章双链DNA噬菌体一、有尾噬菌体目(Caudovirales)肌尾噬菌体科(Myoviridae)二、有尾噬菌体目(Caudovirales)长尾噬菌体科(Siphoviridae)三、有尾噬菌体目(Caudovirales)短尾噬菌体科(Podoviridae)四、复层噬菌体科(Tectiviridae)五、覆盖噬菌体科(Cotticoviridae)六、芽生噬菌体科(Plasmayfridae)七、脂毛噬菌体科(Lipothrixviridae)八、小纺锤形噬菌体科(Fuselloviridae)九、小杆状噬菌体科(Rudiviridae)十、微滴形噬菌体科(Guttaviridae)十一、盐末端蛋白噬菌体属(Salterprovirus)第18章RNA噬菌体一、囊状噬菌体科(Cystovitidae)二、光滑噬菌体科(Leviviridae)第19章真菌和原生动物病毒一、单组分RNA病毒科(Totiviridae)二、双组分RNA病毒科(Partiviridae)三、产黄青霉病毒科(Chrysoviridae)四、低毒病毒科(fypoviridae)真菌病毒成员五、杆状RNA病毒科(Bamaviridae)六、裸露RNA病毒科(Namaviridae)七、根前毛菌病毒属(Rhizidiovirus)八、变位病毒科(Metaviridae)变位病毒属(Metavirus)九、前病毒科(Pseudoviridae)真菌病毒十、呼肠孤病毒科(Reoviridae)真菌病毒成员十一、拟态病毒属(Mimivirus)第20章藻类病毒一、藻类DNA病毒科(Phycodnaviridae)二、海洋RNA病毒科(Mamaviridae)三、前病毒科(Pseudoviridae)藻类病毒成员第六编类病毒、卫星体和朊病毒第21章类病毒一、马铃薯纺锤形块茎类病毒科(Pospiviroidae)二、鳄梨日斑类病毒科(Avsunviroidae)第22章卫星体和朊病毒一、卫星体(satellites)二、朊病毒(prion)。
鸭圆环病毒cap基因的表达与检测cap抗体的间接elisa方法建立
摘 要鸭圆环病毒(duck circovirus,DuCV)是圆环病毒科圆环病毒属的成员之一,主要引起宿主的淋巴系统损伤,导致免疫抑制,进而引起继发感染或二重及多重感染,已引起越来越多的关注。
美国、匈牙利、德国和中国台湾等地区相继报道在番鸭、半番鸭、樱桃谷肉鸭中发现该病毒。
国内福建、山东、浙江和广州等省份的流行病学调查,也证实了DuCV的普遍存在。
DuCVcap蛋白是DuCV的主要的免疫原性蛋白,也是病毒的主要结构蛋白。
为了能够得到DuCV的免疫原性蛋白,并以此建立诊断方法,为鸭场大规模样品中检测DuCV抗体提供依据。
研究用DuCV cap基因原核表达蛋白,并进行纯化,建立间接ELISA方法,初步应用于安徽省部分鸭场DuCV抗体检测。
具体如下:首先利用软件对DuCV AQ0901株cap基因的保守区域进行分析,设计了一条特异性引物,将N末端影响外源蛋白表达的稀有密码子截去后,将其克隆到原核表达载体PET-28a中,并在完成对构建质粒PCR、EcoR/ⅠSalⅠ双酶切鉴定,测序鉴定后,用诱导剂IPTG对其进行诱导表达,同时对诱导剂浓度,诱导时间,蛋白表达的可溶性等条件进行优化。
在大量表达重组dcap蛋白后,利用NI纯化树脂对His-dcap蛋白进行纯化,同时还对重组蛋白的浓度,纯度以及免疫活性等特性进行检测,并用纯化好蛋白免疫健康樱桃谷肉鸭,制备了多克隆抗体血清。
结果显示,构建好的pET-28a-dcap重组质粒诱导表达后,经SDS-PAGE检测及Western-blot分析证明,在大肠杆菌中得到了高效表达,并以包涵体的形式表达;用NI纯化树脂对His-dcap蛋白进行纯化后,蛋白浓度可达1.285mg/mL,且表达蛋白保留了部分天然cap蛋白的抗原性;利用纯化蛋白乳化后制备多克隆抗体血清经琼扩试验测定抗体效价可达1∶128。
其次利用上述纯化好dcap蛋白建立一种检测cap抗体的间接ELISA方法,为规模化鸭场DuCV感染情况调查提供快速简易的血清学方法。
猪圆环病毒2型疫苗及其防治效果
文章编号:1004-2342(2013)01-0035-03中图分类号:S852.65+9.2文献标识码:B猪圆环病毒2型疫苗及其防治效果万培伟1,宣亮2,刘昌林3(1.江西生物科技职业学院,江西南昌330200;2.江西省畜牧兽医局;3.南昌市农科院)1猪圆环病毒的病原学猪圆环病毒(Porcine circovirus,PCV)属于圆环病毒科(Circoviridae)、圆环病毒属(Circovirus)。
PCV 可分为两个血清型,即PCV-1和PCV-2[1]。
PCV-2是引起猪断奶后多系统衰竭综合征(Postweaning multisystemic wasting syndrome PWMS)、母猪繁殖障碍、断奶和育肥猪的呼吸道疾病、猪皮炎和肾病综合征(Porcine dermatitis and nephropathy syndeome PDNS)等多种疾病的主要病原[2]。
PCV-2可以分为PCV-2a和PCV-2b两种主要亚型,2008年丹麦还发现存在PCV-2c,这是至今为止唯一一次报道PCV-2c[3,4]。
2003年以前中国猪场以PCV-2a占主导,2004年之后PCV-2b越来越普遍,而且毒力更强。
还有研究者把PCV-2a分为(2A-2E)5个基因型,PCV-2b分为(1A-1C)3个基因型[5]。
分析发现PCV-2a和PCV-2b有5个主要的区别:(1)PCV-2a 基因组全长1767bp、PCV-2b基因组全长1768bp, PCV-2a在第1040个核苷酸缺失。
(2)ORF1有314个氨基酸,PCV-2a和PCV-2b在ORF1中的942个核苷酸中有172个不同,占18%,其中在第152个核苷酸最稳定的变异位置,由于这个核苷酸的改变导致Gly52/Arg8/Ser2(PCV2b)改变为Ser70/Gly1 (PCV-2a)。
(3)ORF3有104个氨基酸,PCV-2a和PCV-2b在ORF3上的312个核苷酸有51个不同,占28%。
动物病毒的分类及常见病毒的分子结构
猪圆环病毒
2、细小病毒科( Parvoviridae )
2.1细小病毒亚科( Parvovirinae )
细小病毒属 猪(牛、鸡、马)细小病毒
红病毒属
B19病毒
依赖病毒属
腺联病毒1型
2.2浓核病毒亚科( Densovirinae )
浓核病毒属
鹿眼蛱蝶浓核病毒
ITERA病毒属
家蚕浓核病毒
CONTRA病毒属 埃及伊蚊浓核病毒
三、动物病毒的基本类型
根据病毒核酸及其转录和复制方式, 可将动物病毒分为下述7
第一类病毒是具有双链DNA(dsDNA) 基因的病毒,包括痘病毒以及乳多空病 毒、腺病毒和疱疹病毒等。
其中只痘病毒DNA转录mRNA的依赖 DNA的RNA聚合酶(即转录酶)紧密结合 于病毒粒子的核心上,其他三类者可能 都是利用宿主细胞的转录酶。
(16) 病毒种是组成一个复制系并占有一个特 (17) (18) 种名,通常与株名一起,必须表示明确 (19) 已经广泛应用的数字、字母及其组合可
用作种名性质形容词。但新提出的连续数字 、字母或其组合不单独接受作为种名性质形 (20) ICTV通过新提议的种、种名和型名的程 序分两步:首先,给予暂时性通过,这样的 建议将发表在ICTV报告中;然后,经过三年 的等候期,如果不撤销或修正,该建议将得
3 精选2021版课件
二、病毒分类和命名的规则
1.
ICTV的分类规则以病毒的基本特性为依 据,这些特性概括起来包括以下几个方面 。
(1) 病毒的形态学:
病毒粒子的大小和形状,呈球形、子 弹状、砖形、卵形或杆状、丝状还是多形 态;有无表面纤突及纤突的特征;有无囊 膜;衣壳对称型和结构、立体对称、螺旋 对称、还是复合对称;立体对称病毒粒子 的壳粒数目或螺旋对称病毒的核衣壳直径
《圆环、蓝耳概述》课件
蓝耳病
蓝耳病是一种由猪繁殖与呼吸综合征病毒引起的猪的传染病。该病毒属于套式病毒目、动脉炎病毒科、动脉炎病 毒属。蓝耳病在猪群中呈现地方性流行,不同品种、年龄的猪均可感染,但以妊娠母猪和1月龄以内的仔猪最易 感。
防控策略
加强饲养管理
提高动物免疫力,保持养殖环 境卫生,定期消毒,减少病毒
传播机会。
实施检疫和监测
及时发现患病动物,采取隔离 和治疗措施,防止疫情扩散。 同时对易感动物进行监测,掌 握疫情动态。
疫苗接种
根据当地疫情和病毒类型,选 用合适的疫苗对易感动物进行 免疫接种,提高动物抵抗力。
采取生物安全措施
临床症状与病理变化
圆环病毒
感染圆环病毒的猪表现为消瘦、 食欲不振、呼吸困难、皮肤苍白 等症状。病理变化包括淋巴结肿 大、间质性肺炎和肝炎等。
蓝耳病
感染蓝耳病的猪表现为发热、咳 嗽、呼吸困难等症状。病理变化 包括肺炎、心脏疾病和皮下出血 等。
2023
PART 02
圆环病毒、蓝耳病诊断与 防控
REPORTING
国际合作与交流
加强国际合作与交流,共同应对圆环 病毒和蓝耳病的挑战。
2023
PART 04
圆环病毒、蓝耳病研究进 展
REPORTING
分子生物学研究进展
分子生物学基础
圆环病毒和蓝耳病病毒的基因组结构 、复制机制和变异特性等方面的研究 进展。
病毒与宿主相互作用
病毒进化与变异
探讨病毒的进化历程、变异规律以及 与疾病流行和传播的关系。
诊断方法