
水稻突变体介绍及鉴定(很详细)
RMD水稻突变体信息及基因型鉴定1.背景介绍:突变体对于遗传学研究有着重要作用,随着拟南芥和水稻等物种全基因组测序的开展,人类积累了前所未有的基因序列信息,为了弄清这些基因序列的生物学信息,寻找该基因区段序列发生变异的突变体是阐释基因功能最直接最有效的方法。
植物在自然的环境条件下也会产生突变性状,早期普通正向遗传学研究往往通过寻找与某种生物学特性相关的突变体来发掘或定位某个特定基因。
为配合植物功能基因组研究高通量的策略,构建水稻等物种的大型突变体库已成为必然,借助水稻全基因组测序信息、通过反向遗传学的手段大规模地筛选突变体库,理论上可以获得基因组中任一基因的突变体,最终实现阐释基因功能的目的。
2.原理:2.1农杆菌介导的T-DNA 插入农杆菌是寄主范围非常广泛的土壤杆菌,它能通过伤口侵染植物导致冠瘿瘤和毛状根的发生。
1974从根癌农杆菌中分离出一种与肿瘤诱导相关的质粒,称为致瘤质粒(Tumor-inducing plasmid),简称Ti 质粒。
Ti 质粒上存在一段DNA,能够转移并整合到植物基因组中,称为Transferred DNA,简称T-DNA。
研究发现,T-DNA 两端存在非常保守的同向重复的25bp 序列,分别称为左边界(LB)和右边界(RB)。
T-DNA 的转移只与边界序列相关,尤其是RB,而与T-DNA区段的其它基因或序列无关。
我们将T-DNA 区段上的致瘤基因和其它无关序列去掉,利用其转移的特性,实现农杆菌介导的T-DNA 转入水稻愈伤,从而构建水稻突变体库。
大量研究表明,农杆菌T-DNA 整合到植物基因组中的位置是随机的,并且整合到植物基因组中的T-DNA 能稳定遗传。
由于插入到植物基因组中的T-DNA 区段序列已知,这样随机插入到植物基因组中的T-DNA类似于给植物基因“贴”了一个序列标签。
我们利用这个标签,通过各类PCR技术最终可以获取其插入的位点。
2.2 水稻Tos17 反转录转座子创造水稻突变体的另一种方法是利用植物的反转录转座子,它们是以DNA→RNA→DNA 的方式进行转座,在水稻上已发现大约40 种长未端重复的反转录转座子,它们是Tos1-Tos32,RIRE1-RIRE8,其中5 类被证明是有转座活性的,分别是Tos10、Tos17、Tos19、Tos25 和Tos27。
这些反转录转座子只有在组织培养条件下才具备转座活性,其中Tos17 的转座活性最强,容易插入到富含基因的区域,因此可以直接用于创造插入失活的突变体库。
利用含有Tos17 插入的水稻突变体库,可以进行突变性状的筛选,T os17 反转录转座子正成为水稻功能基因组研究的一个有力工具。
由于Tos17 反转录转座子为水稻内源的转座子,不需要进行转基因的过程,而且平均每株含有8 个Tos17 个拷贝,在正常情况下能够稳定遗传,因此Tos17 转座子突变体库是水稻功能基因组研究的一个有用资源。
但也有研究表明,Tos17 在转座过程中存在几类转座热点,它容易插入到与抗病相关基因及蛋白激酶基因中。
同时,Tos17 插入突变体库中观察到的突变体大约只有10%的突变是真正由于Tos17插入造成,另外的突变可能是由于组织培养过程中体细胞变异造成的,也有可能是组织培养激活了其它类的转座子发生转座所致。
3.水稻突变体库3.1 水稻突变体库功能由于T-DNA 在植物基因组中能稳定遗传,且拷贝数较低,对于突变体的遗传分析较容易。
加之T-DNA 序列已知,一旦发现某个突变性状与T-DNA 共分离,则采用Tail-PCR、Inverse-PCR 或质粒拯救等方法很容易分离T-DNA 侧翼植物基因组序列。
欲寻找某个基因的突变体,可以设计相应引物,采用Pool-PCR 的方法高通量地筛选突变体库。
另外,通过构建T-DNA 侧翼序列数据库,也可以大规模地寻找基因的突变体。
采用Tail-PCR 的方法分离T-DNA 插入突变体库的侧翼序列,有助于将T-DNA 插入位点在染色体上定位,寻找已知基因不同区段的突变体。
此外,在T-DNA 区段构建Gene trap、Enhance trap 等元件后,还可通过检测报告基因来反映靶位点基因的表达模式。
3.2 遗传转化体系建立农杆菌介导的转化主要依据Hiei(1994)的水稻转化方法并有所改动。
简单流程如下:菌株活化↓愈伤诱导→继代→预培养→侵染→共培养→抗性愈伤筛选→分化成苗→生根→炼苗移栽粳稻品种愈伤组织诱导/继代、预培养/共培养及筛选培养基用N6 培养基,分化和生根用MS 培养基(其成分见附录1)。
3.3 突变体库转化植株的编号为了便于突变体库产生的所有信息如植株种子、T-DNA 侧翼序列、报告基因的表达模式等的统一管理,本研究中水稻突变体库的管理参照统一的数据库管理和编号方法进行,如编号“01Z11AB90”,“01”表示该突变体产生的年份为2001 年;“Z11”表示转化的野生型亲本为中花11 号,中花15 的编号则为“Z15”,“AB”表示不同英文字的组合,代表不同的区号;“90”为阿拉伯数字编号,表示同一小区内的顺序号,编号范围为“01-96”。
3.4 水稻突变体发芽:由于突变体发芽率会普遍降低,我们建议发芽的方法是:首先取10-20粒突变体种子,采用常规催芽的方法,若最后突变体发芽率高于60%的,即可将余下的种子进行常规催芽。
如果发芽率偏低,我们建议您采用组培发芽(具体方法见附录2)。
4.突变体基因型鉴定4.1 载体介绍构建水稻T-DNA 突变体库我们一共用过3个载体:pFX ,pSMR 和pEGFP 。
它一样。
T-DNA 为图中红线左侧。
载体 报告基因 pFX GUS&GFP pSMR GUSpEGFP GFP 因此,无论是哪个载体,鉴定基因型的步骤都是一样的。
载体左端测序引物:NTLB5 5’ AAT CCA GAT CCC CCG AAT TA 3’载体右端测序引物:PFRB4 5’ TGC AGG TTC TCT CCA AAT 3’ 4.2 基因型检测的原理如下:对每个插入位点基因设计一对跨T-DNA 或Tos17的基因组引物-Sense primer (S )和Antisense primer (AS ),通过这两条基因特异引物(S 和AS )与一条载体上已的引物(primer A 或primer B )进行配对扩增,就能确定后代的基因型(见下图)。
1) 如果T-DNA 或Tos17在某位点的插入是纯合的,当用基因组上一条引物(S 或AS )和载体引物进行配对扩增时,能够得到目的条带。
但是由于T-DNA 或Tos17的插入使两条基因组引物(S 和AS )间距太大,所以用两条基因组引物S 和AS 不能扩增出条带;2) 如果该位点没有T-DNA 或Tos17插入,当用两条基因组引物(S 和AS )扩增时能够得到目标条带,但用基因组上一条引物(S 或AS )和载体引物配对扩增时不能得到目标条带;3) 如果T-DNA 或Tos17在某位点的插入是杂合的,则用两条基因组引物(S 和AS )以及一条基因组引物(S 或AS )和载体引物的配对扩增都能得到目标条带。
pFX-E24.2-15R 17741 bpAmp CAM RESISTANCE HYG(R)GFP EGFP BoGUSCAT-1 Intron Catalase intron T BORDER (L)T-BORDER (R)pVS1 StapBR322 bom site GAL4/VP16pUC ori F1 oriPOLY A SITE CAMV35S6xUAS pLAC pVS1-REP pBR322 ori4.2 引物选择农杆菌T-DNA整合到植物基因组中的位置是随机的,可能出现正向插入和反向插入两种情况,同时我们分离侧翼序列时根据使用引物的不同,会分离到T-DNA左端侧翼序列和右端侧翼序列。
当我们拿到感兴趣的突变体的编号后,如何选择合适的引物组合来进行基因型的鉴定呢?第一步,检查T-DNA的插入方向具体方法是:将突变体的侧翼序列在NCBI上进行比对,比对结果中会出现一个strand值(如下图红框显示):strand=Plus/ Plus,代表我们分离到的侧翼序列与基因组正义链匹配;Strand=Plus/Minus,代表我们分离到的侧翼序列与基因组反义链匹配;但是,侧翼序列在基因组上的正反向并不能代表T-DNA在基因组上的的插入方向,我们还需要通过分析当初分离侧翼序列时使用的是T-DNA的左端还是右端的引物,来确定T-DNA在基因组上的的插入方向。
第二步,确定侧翼序列是在T-DNA左端还是右端具体方法是:我们的突变体有统一的编号,前缀表示分离的方法等(具体见RMD网站详细介绍),后缀显示的是分离侧翼序列时所使用的引物(见下图红框,测序时即可使用该引物)。
如果我们使用引物NTLB5,代表分离得到的是T-DNA 的左端序列,如果我们使用引物PFRB4,代表分离得到的是T-DNA的右端序列,第三步,T-DNA在基因组上的的插入方向根据第一步和第二步的结论,我们即可确定T-DNA在基因组上的的插入方向,并选择合适的检测基因型的引物(结论见表一)。
分离侧翼序列引物strand=Plus/ Plus Strand=Plus/MinusNTLB5分离反向插入正向插入PFRB4分离正向插入反向插入T-DNA正向插入到基因组中情况:T-DNA反向插入到基因组中情况:第四步,确定引物组合根据第三步的结论,我们可以选择引物组合进行基因型鉴定(见表二)。
表二:分离侧翼序列的引物T-DNA正向插入T-DNA反向插入NTLB5 S+AS/S+NTLB5 S+AS/AS+NTLB5 PFRB4 S+AS/AS+PFRB4 S+AS/S+PFRB4 4.3 举例说明鉴定基因型的步骤:1)用突变体的侧翼序列(可在/查找)和水稻基因组比对(推荐NCBI),找到T-DNA插入位点。
以03Z11AA66为例,其侧翼序列为:>Sequence1|Possible location: Chromosome 3 (by Zhang Jian)CGTCC GCAATGTACTCACCCGGCCTAGCA TACGACCTGCTGCCTGTCTTGAGAACGCC ACGAAGCGGCAGCCTGCATGTCGTTTACG AGGAGCCCTTAGATTCCCCTCCAGAATTA GGAGTACACGCCCTGTGTTGGTGTCGATC AATCGATAATGTAGATTGATCGCAATCGA GATGGGTGTTGATGAGCAGGATCATATCC ATCCTCCTCTTGGGGGTTTCTCTGCAGGC TCCTGACAGACAATGAATGTGTGCACATG ATCAATGCAGATGCGTGCAGCTATCGAAA TCTTGGTTGGTACTTGTCCTGGATGGCTT GATTAGATTGTTAATACCAAAACACATTT TTTCGCTCATACTGATATACGAGTAGTAG TAGGACTTCCTCGTGAGCTCTCTTGAATTCAT CTCACTCGACGA用该侧翼序列在NCBI上做BLAST,结果如右图:由BLAST结果可知以下信息:1.T-DNA插入为点为第三染色体5013391处,2.该家系strand=Plus/ Plus,3.分离侧翼序列的引物为NTLB5(TTL _03Z11AA66 _NTLB5)将2和3结果对应表一得知T-DNA是反向插入在基因组中。
水稻白叶枯病研究进展

水解酶类 .水稻白叶枯病菌除不产生淀粉酶 外,纤维素酶、蔗糖酶、木聚糖酶、磷酸 脂酶、卵磷脂酶和蛋白酶均能产生。这些 酶在病叶组织中的活性均高于健叶组织。 通过对用Tn5诱变的无毒菌株的生化行为的 研究,我们发现所有无毒突变体除淀粉酶 活性有质的变化(阴性变为阳性外),蛋白 酶活性增强,EPS产量增加,大多数突变体 的果胶酶活性是从无到有,纤维素酶活性 基本不变,大多数突变体的脂酶活性有所 降低。这一研究结果表明Xoo的胞壁水解酶 和胞外多糖与其致病性并没有严格的相关 性。
条斑 气孔
+ + - +
65.0%
Xco-1-/Xcocola+
表1
水稻黄单胞两个致病变种的遗传和生理生化特征
(二)小种分化 小种分化是指病原菌在不同 品种特异性互作关系。自60年代起,日本、 菲律宾国际水稻所和我国相继对水稻白叶 枯病菌的小种分化进行了研究。由于对水 稻白叶枯病菌在水稻品种上特异性互作的 标准还存在不同的看法,各国间对水稻白 叶枯病菌小种的致病性分化分别表示为小 种和致病型(表2,3,4)。
水稻白叶枯病研究进展
白叶枯病是水稻上的重要病害,在全球五大洲 中,除欧洲外均有报道。环亚洲太平洋各国发生 较为频繁,其中亚洲,特别是南亚和东南亚各国 发生较高。在我国除新疆外,其它各省市都有报 道。尽管由于抗病品种的应用,水稻白叶枯病已 得到一定程度的控制,但每年尚有近1亿亩发病 面积,其中防治面积仍达3000万亩,所以该病在 我国仍是不容忽视的问题。 由于问题的重要性,世界各国,特别是亚洲国家 都特别重视对该病的研究。美国、日本、菲律宾 、印度和我国植物病理学家都对水稻白叶枯病的 研究做出重要贡献。
表5
日本与菲律宾国际水稻研究所推荐用以监测水稻 白叶枯病菌小种分布及新基因鉴定的国际鉴别品种
顶小穗双粒突变体TS的遗传和品质研究
g n . An yi nteq ai fmua t ' n 48 ee l a sso h u lt o tn sa d G2 0B,sc Sp oenc ne t myaec ne t h kn s n orlt n o h ris y 1 u h a rti o tn ,a ls o tn ,c a ie sa d c r ai ftetat l e o
本 实验所 用 材 料 为一 个 顶 小 穗 双 粒 突 变体 T S
和正 常籼 稻 G 4 0 2 8 B以及 其 杂 交后 代 F 显 性 和 隐 2
形植 株 。所有植 物材 料种植 于西 南科技 大学校 内实
验基 地 。 12 试验 方法 .
应 生成深 蓝 色 复 合 物 , 分 光 光 度 计 6 0 n 波 长 在 2 m 下 , 出溶 液 的吸光 值 , 后 用 吸 光 度值 作 纵 坐 标 , 测 然 直链 淀粉 比例作 横 坐标 , 出标 准 曲线进 行 样 品直 做 链 淀粉含 量测定 。稻 米 中直 链淀 粉含 量用 吸光 度值 代 人标准 曲线 回归方 程 中 , 算 出直链 淀粉 的含 量 。 计 要重 复测定 3次 , 平均 值 。 求
次 重复 , 取平 均值 即为垩 白粒率 。 垩 白粒率 =垩 白米彬 总粒 数 ×10 0
的发生形 态 和品质 特 征 , 以后 深 一 步研 究 打好 基 为
础。
从分 选 出来 的垩 白米 粒 中 , 机 数取 l 随 0粒 ( 不 足1 0粒者按 实际有 数 取 ) 逐 粒 目测 垩 白面积 占整 ,
雷英 、 张建军 等 在对 一个 水 稻簇 生穗 突变 体 e 的 l 研究 后发现 , 突 变体 簇 生 的原 因是在 水 稻 穗 发 育 的后 期 , 顶端 发育迟 缓甚 至停止 , 枝梗 使顶 端小 穗 的
水稻粒型基因

水稻粒型基因水稻作为世界上最重要的粮食作物之一,在全球粮食安全和农业经济中扮演着重要的角色。
水稻的形态特征中,粒型是农民和育种者关注的重点之一。
粒型的改善可以对水稻产量和品质产生显著影响。
而这一特征的遗传基础主要是由水稻的粒型基因所决定的。
一、粒型的分类水稻的粒型通常分为长粒、中粒和短粒三类。
长粒水稻种子长度超过7毫米,宽度较窄,比较瘦长。
中粒水稻种子长短在5-7毫米之间,宽度中等。
短粒水稻种子长度不到5毫米,较为短胖。
这三种粒型的特点对水稻的种植和加工具有重要影响。
二、粒型基因的发现和研究在过去几十年中,科学家们通过对水稻粒型的观察和研究,已经发现了一些与粒型紧密相关的基因。
其中最有代表性的是粒形因子1基因(GS3)。
该基因位于水稻第三染色体上,对于水稻粒型的控制有着显著影响。
不同突变型的GS3基因会导致粒型的变化。
具体来说,短粒突变型与长粒型相比,GS3基因的功能发生了改变,抑制了水稻胚乳细胞的纵向扩张,从而导致了粒型的改变。
除GS3基因外,还有一些其他与粒型相关的基因也被科学家们发现。
例如,GS5、GL3.1、GW2等基因,它们分别参与了水稻产量、种子长宽比和粒重等方面的调控。
通过研究这些粒型基因,可以更好地了解水稻形态特征的形成机制,为水稻的育种和生产提供科学依据。
三、粒型基因的利用和应用粒型基因的发现为水稻育种带来了巨大的潜力。
通过控制特定粒型基因的表达和功能,可以实现对水稻粒型的调控和改良。
例如,在水稻育种中,人工选择长粒突变体可以通过改善米质来提高米饭的品质。
长粒水稻通常有较高的胶质含量,米粒吸水性好,煮熟后更容易吸收调味品的味道。
对于出口大米和高端餐饮市场来说,长粒水稻是更受欢迎的选择。
此外,根据粒型基因的遗传规律,通过杂交育种和基因编辑等技术手段,可以将不同粒型的优良基因进行组合,加速培育出更加理想的水稻品种。
这些品种不仅能够适应不同环境条件下的种植,还能够满足消费者对粒型多样性的需求。
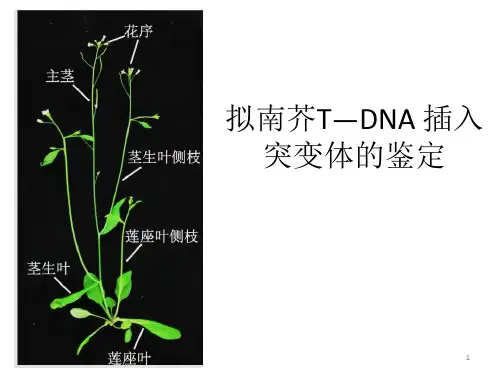
拟南芥TDNA插入突变
• 器材:离心机,离心管,PCR仪,点泳池,电泳现 象仪
(3)筛选纯和突变体 实验原理
双引物法
• 与“三引物法” 本质相同。 首先以基因组 D N A作为模板,用一对特异引物(LP和RP)扩增 目的基因片段,野生型和突变杂合体均一条带,纯合突变体 没有条带;然后再以基因组DNA 为模板,由T-DNA 片段的特异 引物(LB)与LP 或RP 组成一对引物,扩增目的基因T-DNA 插入 片,野生型没有条带,杂合体和纯合体一条410+N。 不足之处是完成最终鉴定需进行两轮P C R 扩增。
19
(3)筛选纯合突变体
实验方案设计
查看含有相关基因的种子信息
20
(3)筛选纯合突变体
实验方案设计
引物设计
21
(3)筛选纯合突变体
实验方案设计
中间引物的设计
22
(3)筛选纯合突变体
实验方案设计
两侧引物的设计
23
(3)筛选纯合突变体
2、实验材料
• 赤霉素糖基转移酶基因的T-DNA插入突变种子:
The complex that comprises of the T-DNA bound to the binding protein then moves into the nucleus and is integrated into the nuclear genome.
7
2、反向遗传学的重要手段——T-DNA插入突变技术
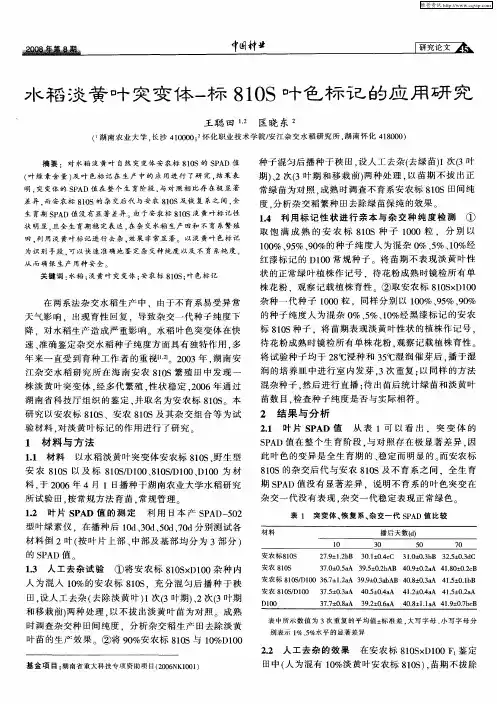
水稻淡黄叶突变体-标810S叶色标记的应用研究
料, 20 于 0 6年 4月 1日播 种 于湖 南农 业大 学水 稻 研究
所试 验 田 , 常规 方法 育 苗 , 按 常规 管理 1 叶 片 S A 值 的 测 定 利 用 日本 产 S AD 5 2 . 2 PD P 一0
杂 交一 代 没有 表现 , 交一 代稳 定表 现 正常 绿色 。 杂
安 农 标 80 1S 安 农 80 1S 2 . 12 B 3 .+ . C 3 .- .b 3 . ̄ . C 79 .b 0104 0 03 B 25 03 + c 1+ d 3 .+ .a 3 . 0 b B 4 . ̄ . A 4 . + .e 70 05A 95 . A 09 02 1 0 02B + 2 a 8
生育 期 S A 值 没 有 显 著 差 异 。 于安 农 标 8 0 PD 由 1S淡 黄 叶 标记 性
状 明 显 . 全 生 育 期稳 定表 达 。 杂 交 水稻 生产 田和 不 育 系繁 殖 且 在
1 利 用 标 记 - 进 行 亲本 与 杂 交 种 纯 度 检 测 . 4 陛状
①
田 . 用 淡 黄 叶 标 记 进 行 去 杂 . 果 非 常显 著 。 以 淡 黄 叶 色标 记 利 效
苗数 目. 检查 种 子纯 度是 否 与实 际相符
株 淡 黄 叶突变 体 , 多代 繁殖 , 状 稳定 ,0 6年通 过 经 性 20
湖 南 省科 技厅 组 织 的 鉴定 , 取 名 为安 农 标 8 0 本 并 1S
研 究 以安 农 标 8 0 、安 农 8 0 1S 1 S及 其 杂交 组 合 等 为试 验 材料 , 淡 黄 叶标记 的作 用 进行 了研 究 对
表 1 突 变 体 、 复 系 、 交 一 代 S A 值 比 较 恢 杂 PD
水稻OsRIP_基因家族的全基因组鉴定及其表达分析

张琪,刘爽,胡艳娟,等.水稻OsRIP 基因家族的全基因组鉴定及其表达分析[J].沈阳农业大学学报,2023,54(4):385-395.沈阳农业大学学报,2023,54(4):385-395Journal ofShenyang Agricultural University http ://DOI:10.3969/j.issn.1000-1700.2023.04.001收稿日期:2023-06-09基金项目:科技部国家重点研发计划项目(2017YFD0300107);国家自然科学基金项目(32070642)第一作者:张琪(1994-),女,博士研究生,从事水稻分子生物学研究,E-mail :******************* 通信作者:王晓雪(1963-),女,博士,教授,博士生导师,从事水稻分子生物学研究,E-mail :***************.cn水稻OsRIP 基因家族的全基因组鉴定及其表达分析张琪,刘爽,胡艳娟,王晓雪(沈阳农业大学水稻研究所,沈阳110161)摘要:水稻(Oryza sativa )中RIP 基因家族编码典型的E3泛素连接酶,在生长发育、逆境响应过程中发挥重要作用。
利用水稻基因组数据,采用生物信息学方法鉴定了水稻中的RIP 基因家族成员,鉴定到6个RIP 家族基因,命名为OsRIP1~6,其编码区长度在906~1086bp 之间,分布在5条染色体上,内含子数量为2~3个。
水稻中RIP 基因被分为3个亚家族,每个亚家族的内含子数量、基因结构、motif 基本一致。
蛋白结构域分析结果表明,在水稻中,RIP 家族的所有成员均含有SINA 和RING 结构域。
共线性分析显示,水稻与玉米存在最多的共线对,与拟南芥不存在共线对。
对启动子顺式作用元件分析发现,RIP 基因启动子区有多个非生物胁迫响应元件、光响应元件及激素响应元件。
另外,还分析RIP 基因家族在不同组织器官、不同发育时期及昼夜节律的表达模式,结果表明在根、茎及花器官中表达水平较高;OsRIP6在播种后83d 表达水平最高,而其他成员在播种后48~69d 的表达处于较高水平;昼夜表达的分析结果显示,在光照后10h 该基因家族成员的表达水平较高。
水稻迟熟突变体恢复系LR7954配组特性研究
4 . 5万 株 , 抽 穗 期 和 成 熟 期 多次 进 行 田间 观 察 , 筛选到 5 份
迟抽 穗 和迟 熟 单株 。对 人 选单 株 再进 行 M 代 株 系种 植 和 田 间鉴 定 , 于 M 决选出 1 份 遗 传 性状 表现 稳 定 的迟 熟 突变
体, 暂 名为 L R 7 9 5 4 。 2 . 2 L R7 9 5 4的 配组特 性 考察
1 材 料与 方法
1 . 1 LR7 9 5 4的 诱 变 、 筛选 和获得
2 . 1 L R7 9 5 4的特性观 察
田间 目测 和 记 载 植 株 性 状 表 明 , L R 7 9 5 4较 浙 恢 7 9 5 4
( C K) 抽 穗历 期 延迟 7 d , 全 生 育期延 长 5 d 。 但 株 型仍 然较 为 相似 , 只 是植 株 变得 更 为高 大 , 茎 秆粗 壮 , 穗 大粒 多 , 干 粒 重
摘 要 用 射线( 3 5 0 G y )  ̄ 照水 稻恢 复 系浙 恢 7 9 5 4干种 子 , 经诱 变后 代 筛选 , 获得 了 I 份 迟 熟 突 变体 L R 7 9 5 4 。 经考 察 , 与 原 浙恢 7 9 5 4相 比 , L R 7 9 5 4 抽 穗 期和 全 生育期 分 别延迟 7 d 和 5 d ; 同时, 还表 现 为植 株 高大 、 茎秆粗 壮 、 穗 大粒 多等特 性 。 配组 试验 表 明 , L R 7 9 5 4所 配 的 杂交 F l 的全 生育期 较 大幅度 延 迟 , 产 量 明显提 高 , 具有 良好 的 生长应 用 前景 。 关键 词 水 稻 ; 恢复系; L R7 9 5 4;  ̄诱 变 ; 迟 熟 突 变体 ; 高产 效应 中图分 类号 ¥ 5 1 1 . 0 3 8 文献 标识 码 A 文章 编号 1 0 0 7 — 5 7 3 9 ( 2 0 1 3 ) 0 3 — 0 0 2 1 一 O 1
srt
项目类型学科一级门学科二级类项目来源项目人数项目时段指导教师项目组其他成员:项目研究内容摘要1、对水稻中一个突变体YJS的鉴定与分离。
YJS突变体是水稻品种93-11经过辐照诱变得到,大田表现为剑叶鞘松散,最上节间弯曲下垂。
2、对引起该表型的YJS基因进行精细定位在已有的初定位的基础上,利用YJS与水稻品种N22进行杂交,在海南种植F2群体并取得极端个体,运用图位克隆的方法,对YJS进行进一步的精细定位。
立论依据(包括项目的研究意义、现状分析,并附主要参考文献及出处)研究意义、现状分析:水稻是主要的粮食作物之一,全世界近一半的人口以大米为主食。
随着水稻全基因组测序的完成,水稻已经成为遗传学和生物学研究的模式植物。
对于育种工作来讲,理想株型是他们的目标。
早在20世纪30年代,Heath和Boysen Jenson等指出叶片的姿态和数量是决定物质生产差异的重要因素,实际上提出了作物的株型问题,(Boysen-Jenson, 1932; Heath, 1938)。
水稻株型是指在群体条件下,个体植株的茎、桑、叶、穗的整体形态性状的配置。
理想株型是育种家建立的优化配置,指在群体条件下,使植株的形态尤其是叶片始终处于最佳姿势,能充分利用特定生态条件下的光能,从而使生物学产量和经济系数均达到尽可能高的水平。
水稻的株型涉及到叶片形态、株高、分蘖情况、穗部形态等(陈温福与徐正进, 1989; 晏静, 2010)。
稻的叶是由叶片和叶鞘组成的,在其交界的部位有叶耳和叶舌。
叶鞘紧紧包裹着茎秆,一方面承受着穗子的重量,使茎秆更加强壮。
另一方面在孕穗过程中如果叶鞘包裹不紧,有可能致使病害的发生,(曹慧娟, 1992)。
叶鞘包裹茎秆是否紧密,对水稻的产量有直接重要的影响。
对于水稻产量而言,最上节间的形态尤为重要,其长度直接决定了穗子的建成。
(Zhu et al., 2006)本研究诣在克隆到一个引起水稻叶鞘和最上节间畸形基因YJS,将有助于水稻株体形态建成机理的探明以及围绕有关性状展开的一系列生理生态学和产量性状等研究的进行,从而有助于水稻育种家在育种过程中通过生物设计对叶型和株型进行改良,从而实现优化高效的育种目的。
水稻谷蛋白突变体的分类及其分子生物学研究进展
,
Z A ig , Z A igyn H 0 Ln H O Qn— g, o
Ab t a t R c l tl t n sa e n t n y i ot n e ei tr l frsu yn is n h ssa d g n x r s sr c : i e gu ei mu a t r o l mp r tg n t mae a s o t d ig b o y t e i n e e e p e — n o a c i so e uai n o tr g r ti n e k oe, u loa e e c l n e mp a m e o r e n r ef n t n l re i g n r — in rg l t fs a ep oen i u my t b t s r x el t r l s r s u c si i c i a e d n .I e o o a e g c u o b c n e r ,ag e t r g e sh sb e d n g n t a a in me h n s a d b e d n f ie gu ei tn s n t i p — e ty a s r a p o r s a e n ma e i e ei v r t c a im n r e ig o c l t l mu a t.I s a c i o r n h
水稻簇生穗突变体基因研究进展
福 州 3 5 0 0 0 3 )
Sc i e n c e s ,2 0 1 3, 2 8( 9 ): 9 3 1 —9 3 7.
水 稻 簇 生 穗 突 变 体 基 因 研 究 进 展
苏德 文
~,郑 燕梅 。
,何 炜
, 张 建福 。 ~,谢 华 安。
( 1 .福 建 师 范 大 学 生命 科 学 学 院 ,福 建
种 上 都 具 有 重 要 的 理 论 意 义 和 实 际 应 用 价 值 。本 文 介 绍 了 当前 花 器 官 研 究 状 况 ,从 簇 生 穗 的 性 状 ,形 成 机 制 及
遗传 学分 析等方面的出发 ,阐述了簇生穗基 因的研究进展 ,并展望基 因在未来水 稻遗传育种 中的应用 。
关键 词 :簇 生 穗 ;遗 传 分 析 ;基 因 定 位 ;进 展
苏 德 文 ,郑 燕 梅 ,何 炜 . 水 稻 簇 生 穗 突 变 体 基 因研 究 进 展 E J 3 . 福 建 农 业 学 报 ,2 0 1 3 ,2 8( 9 ) :9 3 1 —9 3 7 .
S U D - W 。Z HE NG Y — M ,HE W ,e t a 1 .P r o g r e s s o n t h e Ge n e o f Ri c e C l u s t e r e d S p i k e l e t s( c z ) Mu t a n t E J ] .F u j i a n J o u r n a l o fAg r i c u l t u r a l